

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Функциональные свойства соматосенсорных нейронов - с точки зрения физиологии человека
Оглавление статьи:- Обзор
- Первый нейрон: спинальный ганглий
- Второй нейрон: ядра заднего столба и задний рог спинного мозга
- Соматотопия и дерматомы
- Спинальные рефлекторные пути
- Ствол мозга
- Третий нейрон: соматосенсорный таламус
- Четвертый нейрон: соматосенсорная кора
- Особенности системы тройничного нерва
- Список использованной литературы
а) Обзор. Как лемнискальная, так и спиноталамическая системы состоят из четырех групп нейронов.
Тело первого нейрона находится в ипсилатеральном спинальном или гассеровом ганглии V пары черепных нервов (тройничный нерв), тело второго нейрона тоже находится ипсилатерально в ядрах заднего столба (лемнискальная система) или в спинном мозге (спиноталамическая система). В обоих случаях аксон второго нейрона переходит на противоположную сторону и иннервирует третий нейрон в контралатеральном соматосенсорном таламусе. Четвертый нейрон лежит в контралатеральной соматосенсорной коре.
б) Первый нейрон: спинальный ганглий. Спинальные ганглии содержат чувствительные соматосенсорные клетки.
1. Строение первого нейрона. Спинальный ганглий содержит псевдоуниполярные нейроны и глиальные клетки, называемые здесь клетками-спутниками. Аксоны псевдоуниполярных нейронов почти сразу разделяются внутри ганглия на периферическую ветвь, иннервирующую орган, и центральную ветвь, которая доходит до второго нейрона и образует там пресинаптическую часть первого синапса соматосенсорного пути.
Периферическая ветвь заканчивается в ткани корпускулярными окончаниями (механорецепция, проприоцепция) или свободными нервными окончаниями (терморецепция, ноцицепция, висцероцепция).
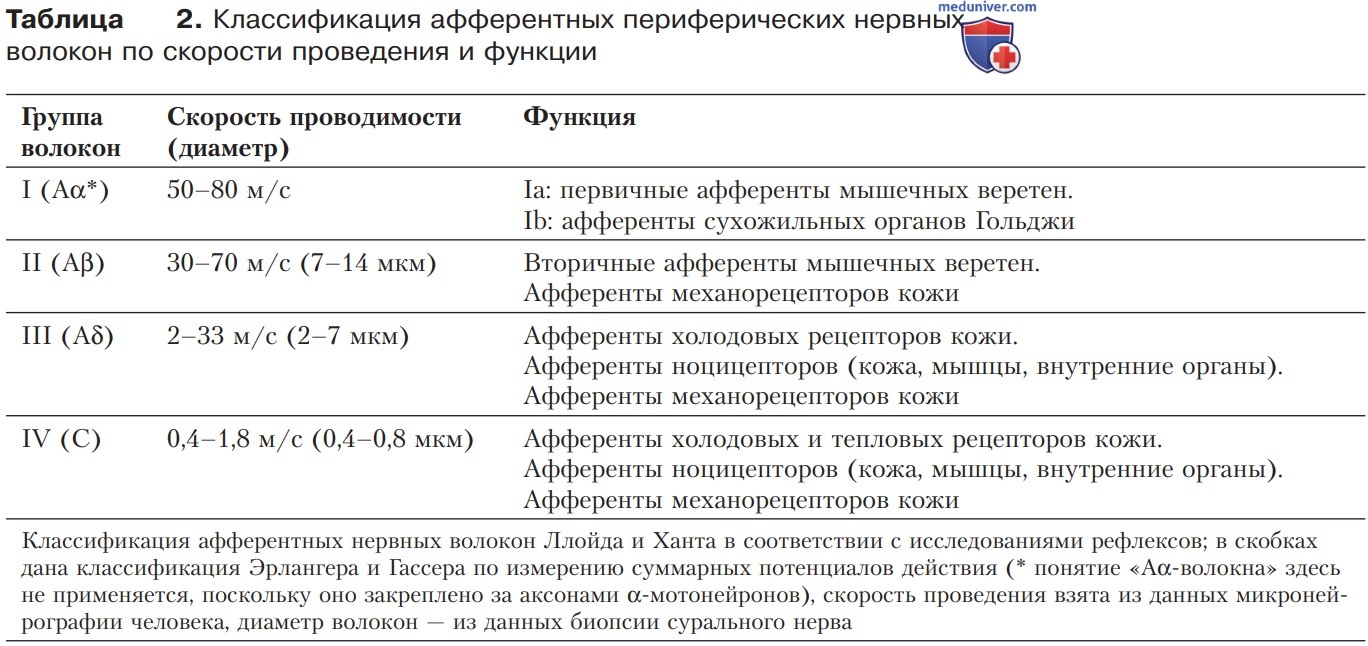
2. Группы афферентных нервных волокон. По толщине и скорости проведения возбуждения афферентные периферические нервные волокна подразделяются на четыре группы (табл. 2). Миелинизированные нервные волокна (группы IIII) особенно чувствительны к давлению и поэтому селективно блокируются при компрессии (защемлении) нерва. Немиелинизированные нервные волокна (группа IV), напротив, более чувствительны к местным анестетикам, что используется в клинике при местной спинномозговой анестезии.
3. Трансдукция. Трансдукция сенсорных стимулов в генераторные потенциалы осуществляется как в свободных нервных окончаниях, так и в корпускулярных окончаниях аксона, но не в окружающих вспомогательных клетках (рис. 1). Таким образом, нейроны спинального ганглия являются первично чувствующими клетками, которые синтезируют все необходимые для трансдукции белки и посредством быстрого аксонного транспорта передают в периферические терминали аксона. Трансдукция механических стимулов осуществляется благодаря наличию ионных каналов, реагирующих на растяжение мембраны.
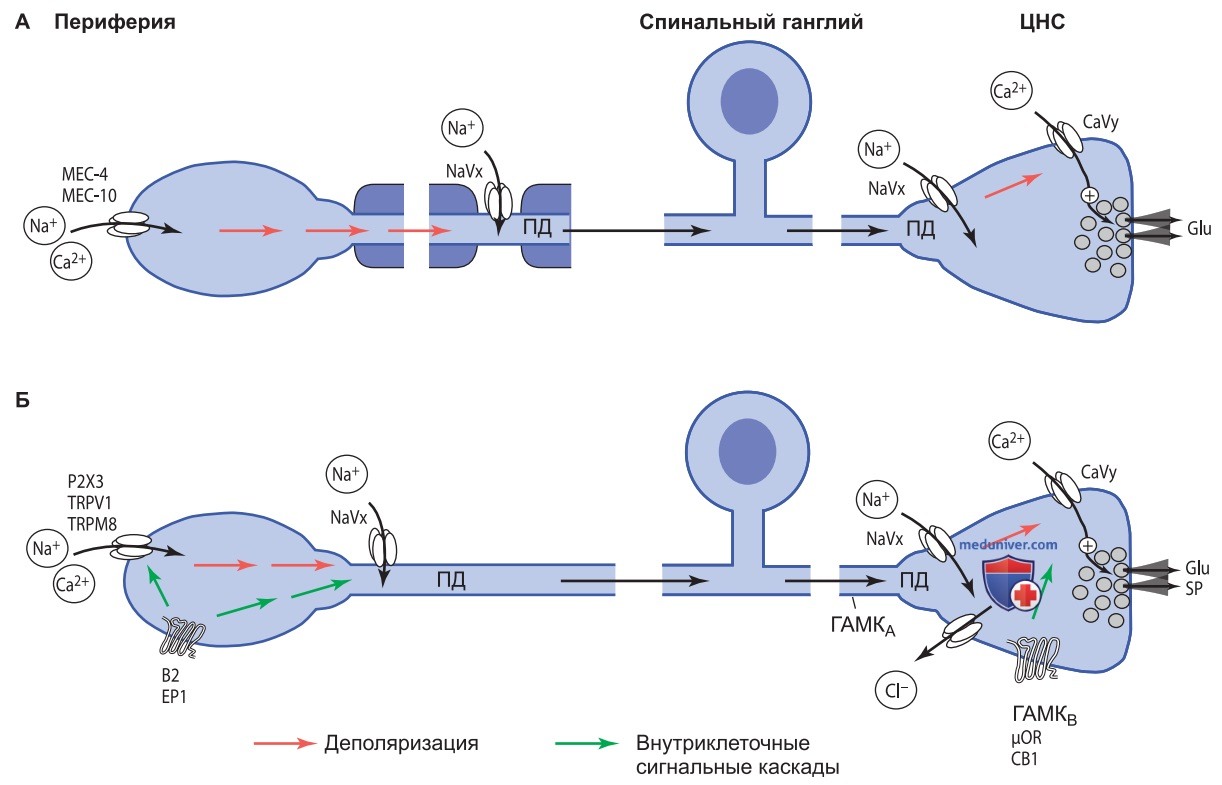
У нематод это, к примеру, МЕС-4 и МЕС-10 из класса эпителиальных натриевых каналов/дегенеринов, у позвоночных животных аналогичные каналы не были найдены. Трансдукция термических стимулов опосредуется термочувствительными ионными каналами (например, TRPV1 как прототип каналов ноцицептивной передачи). Химические стимулы трансдуцируются через лигандзависимые ионные каналы или через рецепторы, связанные с G-белком.
4. Трансформация. Трансформация генераторных потенциалов в серию потенциалов действия осуществляется через потенциалзависимые натриевые каналы, которые в миелинизированных афферентах встроены в мембрану аксона только в области перехватов Ранвье, а в немиелинизированных волокнах — по всей длине аксона. В мембране периферического конца аксона содержатся помимо этого различные потенциалзависимые калиевые каналы. Они участвуют в трансформации тонического генераторного потенциала в серию потенциалов действия, так как снимают инактивацию натриевых каналов посредством реполяризации и последующей гиперполяризации мембраны.
5. Пресинаптическое окончание. Центральный конец аксона содержит потенциалзависимые кальциевые каналы, которые связывают входящее возбуждение с экзоцитозом синаптических везикул. В качестве медиатора они содержат глутамат, а также модуляторные нейропептиды (субстанция Р, или СGRР — calcitonin gene related peptide). В первом синаптическом переключении соматосенсорных путей локальные и нисходящие тормозные процессы действуют через пресинаптическое торможение.
Поэтому центральные окончания аксонов нейронов спинальных ганглиев также содержат рецепторы к нейромедиаторам и нейромодуляторам, таким как γ-аминомасляная кислота (ГАМК), серотонин, норадреналин, эндогенные опиоиды и эндогенные каннабиноиды.
в) Второй нейрон: ядра заднего столба и задний рог спинного мозга. В ядрах заднего столба осуществляется первое синаптическое переключение путей механорецепции и проприоцепции. В заднем роге спинного мозга расположен первый синапс путей терморецепции, ноцицепции и висцерорецепции.
1. Лемнискальная система. Центральные аксонные ветви нейронов спинальных ганглиев, проецирующих в лемнискальную систему, входят в спинной мозг через задний корешок и без синаптического переключения идут в ипсилатеральном заднем столбе мозга к ядрам заднего столба продолговатого мозга (клиновидному и тонкому ядрам). Они часто образуют там синапсы с большими нейронами, аксоны которых в составе медиального лемниска переходят на противоположную сторону и идут к контралатеральному соматосенсорному таламусу.
Нейроны ядер заднего столба имеют мелкие рецептивные поля и расположены соматотопически, т.е. соседние области кожи отображаются рядом друг с другом в определенном порядке (нога медиально, рука латерально). Имеется небольшая конвергенция разных соматосенсорных входов (механорецепция, проприоцепция). Точное пространственное отображение улучшается за счет латерального торможения. Нисходящий контроль из соматосенсорной коры достигает ядер заднего столба через ветвь пирамидного тракта.
2. Спиноталамическая система. Центральные аксоны нейронов спинальных ганглиев, проецирующих в спиноталамическую систему, входят в спинной мозг через задний корешок, однако непосредственно внутри сегмента входа или после короткого перехода в соседний сегмент сверху или снизу формируют возбуждающий синапс на 2-м нейроне в заднем роге спинного мозга (рис. 2). Проекционные нейроны спиноталамического тракта лежат в поверхностном и глубоком слоях заднего рога (пластины I и V по Рекседу), но не в средних слоях.
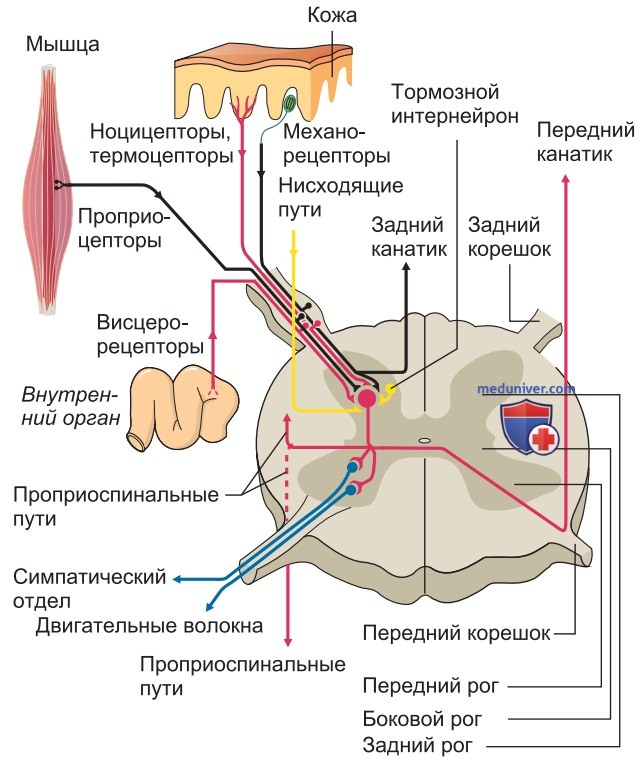
Их аксоны пересекают срединную плоскость вентрально по отношению к центральному каналу и затем идут в контралатеральный соматосенсорный таламус. В то время как тонкие миелинизированные афференты (группа III) могут напрямую достигать проекционных нейронов, тонкие немиелинизированные афференты (группа IV) предварительно переключаются в пластине II на мелкие интернейроны, которые в свою очередь иннервируют проекционные нейроны в пластинах I и V. Только несколько нейронов, прежде всего в пластине I, получают входы от единой популяции рецепторов; они часто характеризуются мелкими рецептивными полями.
Особенно в пластине V наблюдается большая степень конвергенции: не только афферентов группы III и IV, но и механорецепторных афферентов группы II и ноцицепторных афферентов группы IV. Висцеральные афференты и афференты кожи также могут конвергировать на одном и том же проекционном нейроне; эта конвергенция объясняет феномен отраженной боли. Конвергентные нейроны в пластине V могут иметь очень крупные рецептивные поля.
г) Соматотопия и дерматомы. Представительство кожи, мышц и внутренних органов в соматосенсорной системе демонстрирует точное пространственное расположение (дерматомы, миотомы, висцеротомы).
Афферентная иннервация кожи, двигательного аппарата и внутренних органов демонстрирует пространственное расположение в соответствии с сегментной организацией спинальных нервов, которые через межпозвоночные отверстия проникают в позвоночный столб. Эта сегментная организация сохраняется при обработке сигнала в задних рогах спинного мозга. В пределах сегмента проксимальные области представлены медиально, а дистальные — латерально. Кожные афференты каждого спинального нерва иннервируют определенную область кожи, дерматом (рис. 3А).
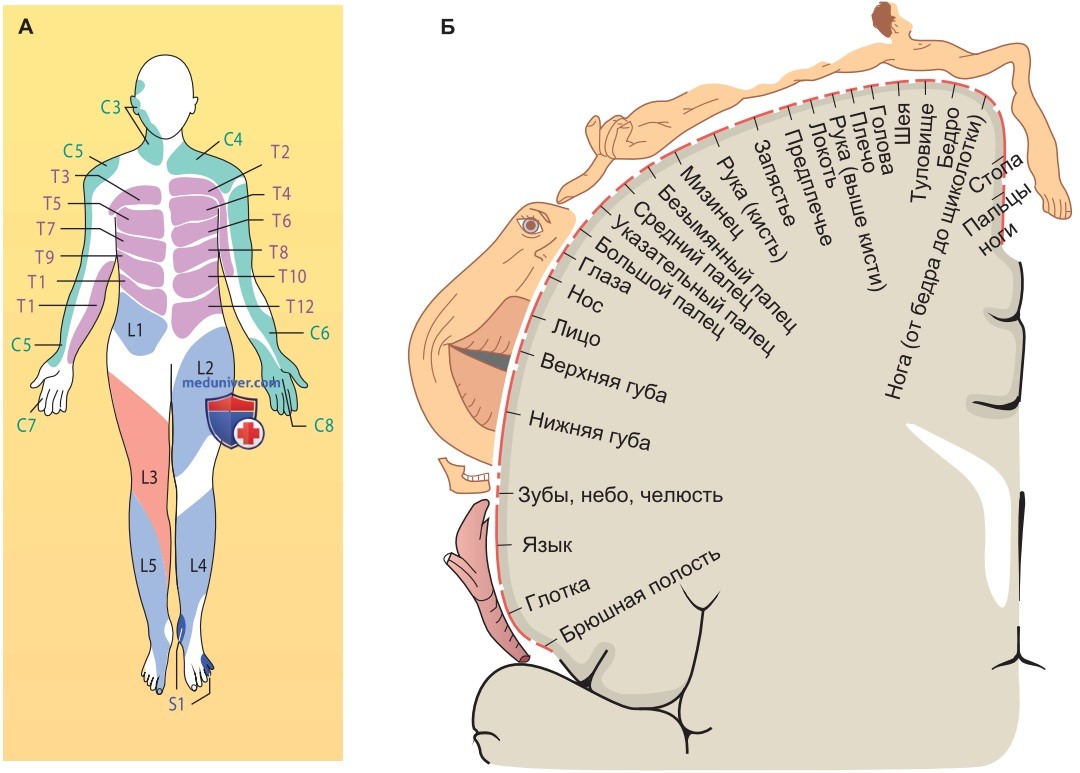
Дерматомы механорецепции перекрываются друг с другом, поэтому повреждение отдельного спинального нерва не приводит к ощутимой потере осязания. Перекрытие дерматомов ноцицепции выражено слабее, так что повреждение отдельного спинального нерва может быть обнаружено при клинической проверке чувствительности. Аналогично дерматомам существуют миотомы (сегментарное расположение мышц) и висцеротомы (сегментарное расположение внутренних органов).
д) Спинальные рефлекторные пути. Моторные рефлексы берут начало в переднем роге спинного мозга, вегетативные рефлексы — в боковом роге.
1. Моторные рефлексы начинаются в переднем роге спинного мозга (рис. 2). Проприоцептивные афференты (волокна групп I и II) без переключения в заднем роге напрямую идут в передний рог, где формируют возбуждающие синапсы на интернейронах. Ia-афференты также напрямую возбуждают α-мотонейроны. Механо-рецептивные и ноцицептивные афференты кожи групп II и III по полисинаптическим путям идут в передний рог; немиелинизированные афференты (группа IV) оказывают на эти рефлекторные пути модулирующее воздействие.
2. Вегетативные рефлексы берут свое начало в боковом роге спинного мозга (рис. 2). Именно сюда приходят тонкие афференты (группы III и IV) терморецепции, ноцицепции и висцероре-цепции. В грудопоясничной области эфферентные нейроны бокового рога принадлежат к симпатическому отделу вегетативной нервной системы, в крестцовой области — к ее парасимпатическому отделу.
е) Ствол мозга. Соматосенсорная обработка сигнала в стволе мозга служит для поддержания состояния бодрствования, запуска дальнейших моторных и вегетативных рефлексов и является отправной точкой нисходящего контроля спинного мозга.
1. Супраспинальные рефлексы. Многие вегетативные и моторные рефлексы включаются не в спинном мозге, а в ядрах ствола мозга. К моторным ядрам ствола мозга относятся красное ядро, латеральное вестибулярное ядро и частично ретикулярная формация. К вегетативным ядрам ствола мозга относятся многочисленные части ретикулярной формации и парабрахиальное ядро. Здесь восходящие пути спинного мозга встречают второй сигнальный путь висцерорецепции (ядра блуждающего и языкоглоточного нервов). Тела афферентов блуждающего нерва лежат в узловатом ганглии, а их первое переключение — в ядре одиночного пути. Оттуда идут проекции к таламусу и гипоталамусу.
2. Неспецифическая сенсорная система. Ретикулярная формация ствола мозга тоже содержит восходящую ретикулярную активирующую систему (ВРАС). Эти ядерные области относятся к неспецифической сенсорной системе, в которую приходят проекции от различных сенсорных путей, в т.ч. слуховой тракт и придаточный путь спиноталамической системы (спиноретикулярный тракт). Неспецифическая сенсорная система опосредует реакцию пробуждения (arousal) и управляет ритмом сна и бодрствования. Эти функции реализуются через восходящие пути к таламусу, в основном к неспецифическим интраламинарным ядрам таламуса.
3. Нисходящий контроль. Ретикулярная формация содержит также норадренергические (locus coeruleus) и серотонинергирческие ядра (ядро шва), которые служат отправными точками нисходящих путей к задним рогам спинного мозга. Эти ядра получают ноцицептивные входы через спиноретикулярный тракт. Они опосредуют как нисходящее торможение, так и нисходящую фасилитацию ноцицептивной системы.
4. Резюме:
- Функциональные характеристики первого и второго нейронов. Как лемнискальная, так и спиноталамическая системы состоят из четырех групп нейронов. В обеих системах тело первого нейрона лежит в ипсилатеральном спинальном или гассеровом ганглии. Периферические аксоны представляют собой либо толстые миелинизированные волокна групп I и II с корпускулярными нервными окончаниями (проприоцепция, механорецепция), либо тонкие миелинизированные или немиелинизированные волокна групп III и IV со свободными нервными окончаниями (терморецепция, ноцицепция, висцерорецепция).
Будучи первично чувствующей клеткой, первый нейрон кодирует соматосенсорный стимул вначале в виде генераторных потенциалов (трансдукция), а затем — потенциалов действия (трансформация) для передачи возбуждения в ЦНС. Там центральные отростки первого нейрона в качестве пресинаптических нервных окончаний высвобождают медиатор глутамат, который в свою очередь подвергается модуляции посредством пресинаптического торможения.
- Тело второго нейрона тоже лежит ипсилатерально либо в ядрах заднего столба (лемнискальная система) либо в заднем роге спинного мозга (спиноталамическая система). Здесь синаптические входы от первого нейрона интегрируются с сигналами из нисходящих путей. Аксоны второго нейрона переходят на контралатеральную раздражителю сторону и передают возбуждение к третьему нейрону в таламусе (специфическая сенсорная система). Через спиноретикулярный тракт и восходящую ретикулярную активирующую систему они также могут запускать реакцию пробуждения (неспецифическая сенсорная система).
Первый и второй нейроны являются также элементами моторных и вегетативных рефлекторных дуг, которые активируются в спинном мозге или стволе мозга.
ж) Третий нейрон: соматосенсорный таламус. Соматосенсорные таламические ядра располагаются между моторными ядрами таламуса и слуховыми и зрительными ядрами таламуса и образуют его вентробазальную часть.
1. Латеральный таламус. Специфические таламические ядра обладают реципрокными возбуждающими связями с топографически точно расположенными частями коры головного мозга (рис. 4А). В зависимости от расположения соответствующих зон коры соматосенсорный таламус находится между моторными и слуховыми и зрительными таламическими ядрами и образует вентробазальную часть таламуса. У приматов соматосенсорный таламус подразделяют на вентральное заднелатеральное ядро (VPL), вентральное заднемедиальное ядро (VPM) и заднее нижнее вентральное ядро (VPI).
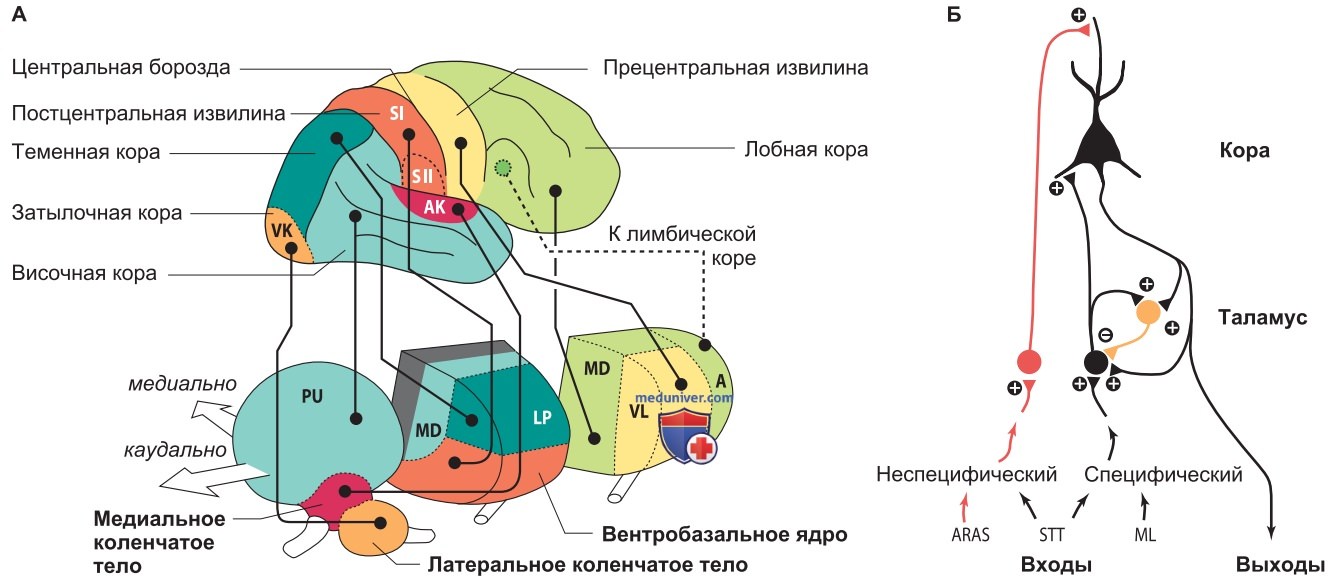
VPL и VPM проецируют к первичной соматосенсорной коре в постцентральной извилине (SI). VPI проецирует ко вторичной соматосенсорной коре в теменной покрышке.
Эти ядра принимают возбуждающие входные сигналы как из лемнискальной системы (проприоцепция, механорецепция), так и из спиноталамической системы (терморецепция и ноцицепция). Ноцицептивные и терморецептивные нейроны находятся в вентробазальном таламусе, в основном в его вентральной и каудальной областях. Эта область называется VMpo (вентральное медиальное ядро, задняя часть). VMpo проецирует в дорсальные части островковой коры и опосредует функции терморецепции, ноцицепции и висцероцепции.
2. Медиальный таламус. Ноцицептивные пути, кроме того, иннервируют так называемые медиальные таламические ядра. К ним относится, с одной стороны, проекция в относящуюся к лимбической коре поясную извилину через специфическое MD-ядро таламуса (медиальное дорсальное ядро), с другой стороны, проекция в рамках ВРАС к неспецифическим интраламинарным ядрам таламуса CL (центральное латеральное ядро) и Pf (парафасцикулярное ядро).
3. Соматотопия таламуса. Нейроны в VPL и VPM имеют небольшие рецептивные поля, которые отображают кожу соматотопически. Зона лица расположена медиально (в VPM), туловище и конечности — латеральнее (в VPL), а наиболее латерально лежит зона, соответствующая ногам. Нейроны в VPI и VMpo также демонстрируют соматотопическое расположение.
4. Реципрокное таламокортикальное включение. Глутаматергические проекционные нейроны специфических соматосенсорных таламических ядер проецируют информацию соматотопически в 4-й слой ассоциированной с ними соматосенсорной коры (фокально возбуждая и дивергентно затормаживая). На своем пути они, кроме того, возбуждают тормозные нейроны ретикулярного таламического ядра через коллатерали аксонов (рис. 4Б). Обратная проекция от ретикулярного таламического ядра к специфическим таламическим ядрам пространственно менее специфична и потому приводит к латеральному торможению, что используется для усиления контраста.
Помимо этого специфические ядра таламуса подвергаются нисходящему контролю со стороны соответствующих областей коры. Обратная проекция от соматосенсорной коры к специфическому таламусу, с одной стороны, напрямую возбуждает его, с другой стороны, косвенно затормаживает через ретикулярное таламическое ядро. Неспецифические таламические ядра проецируют в поверхностные слои коры.
5. Сон и бодрствование. Как и во всех специфических таламических ядрах, соматосенсорные нейроны имеют два функциональных состояния: в относительно деполяризованном состоянии они демонстрируют тонический паттерн возбуждения, который модулируется входящими сигналами и передает сенсорную информацию в кору головного мозга (бодрствование). В состоянии относительной гиперполяризации для них характерен ритмический паттерн возбуждения, который не модулируется входящими сигналами (функциональная деафферентация коры головного мозга во сне).
з) Четвертый нейрон: соматосенсорная кора. Соматосенсорные области коры расположены в постцентральной извилине, задней теменной коре, теменной покрышке над сильвиевой щелью и островковой коре. Здесь происходит идентификация, распознавание формы и локализация соматосенсорных стимулов. Области играют решающую роль в осознанном восприятии раздражения.
1. Первичная соматосенсорная кора (SI). Первичная соматосенсорная кора расположена в постцентральной извилине (рис. 5). Рецептивные поля нейронов в первичной соматосенсорной коре малы и расположены соматотопически (нога медиально, лицо латерально). Отображение контралатеральной половины туловища сильно искажено (гомункулус), с преобладанием представительства рта, пальцев рук и ног (рис. 3). Величина представительства в первичной соматосенсорной коре пропорциональна не реальному размеру соответствующей области кожи, а пространственному разрешению осязания в этой области (рис. 6).
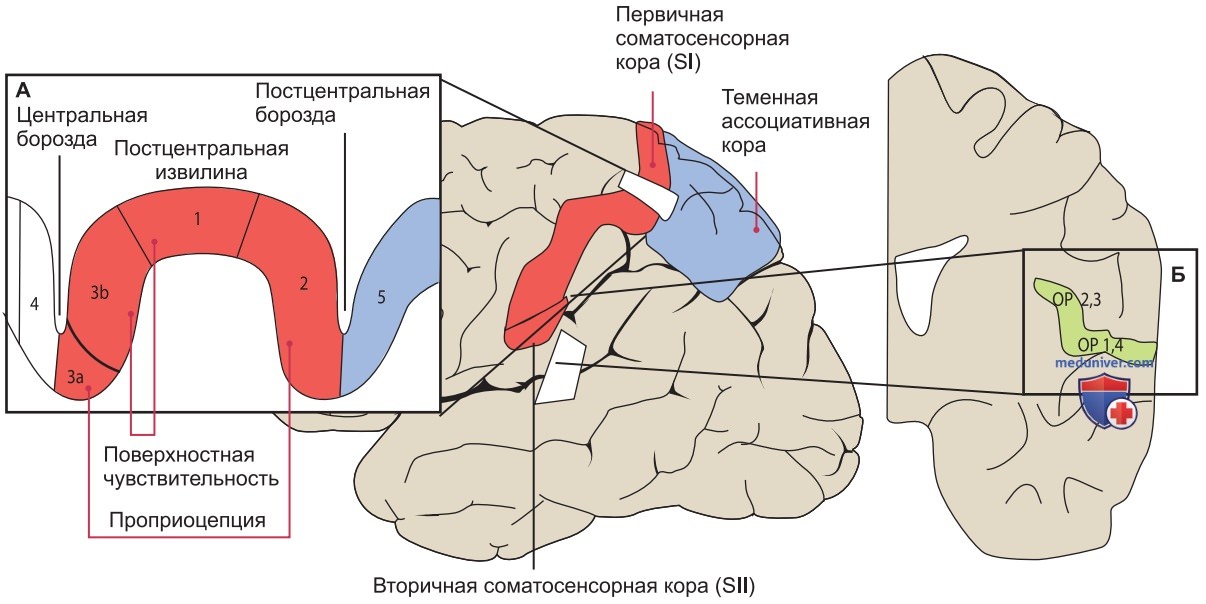
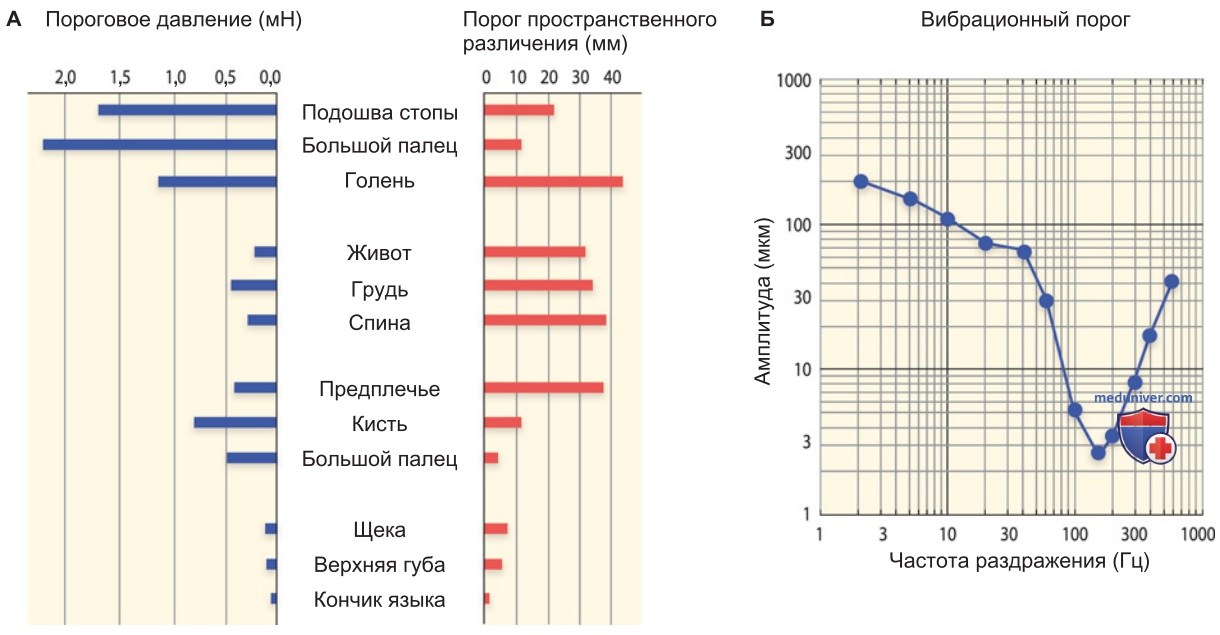
Нейроны группируются в колонки, расположенные вертикально по отношению к поверхности мозга. Внутри кортикальной колонки обнаруживаются однородные рецептивные поля и однородные реакции на раздражение. Первичная соматосенсорная кора состоит из четырех цитоархитектонически различимых областей (зона 1, 2, 3, 3а и 3b по Бродманну; рис. 3А). Зоны 3b и 1 в основном принимают сигналы от механорецепторов кожи. Области 3а и 2 в основном получают проприоцептивные входные сигналы. В рамках первичной соматосенсорной коры осуществляются простые этапы распознавания предмета, такие как детекция ориентации контура объекта или направление его движения по поверхности кожи.
Эфферентные волокна идут к первичной соматосенсорной коре противоположной стороны, вторичной соматосенсорной коре, ассоциативной теменной коре, моторной коре, а также в нисходящем направлении к таламусу, ядрам заднего столба и задним рогам спинного мозга. Если нервные сигналы блокируются на пути к первичной соматосенсорной коре, то возникающее раздражение воспринимается неосознанно. И наоборот, нейронная активность в первичной соматосенсорной коре приводит к соматосенсорному восприятию, например при эпилепсии в основе ощущения нет периферического входного стимула.
P.S. Фокальные сенсорные приступы. Сенсорные впечатления возникают в мозге, а не в органах чувств. Как показывает следующий случай, мозг может вырабатывать сенсорные впечатления даже без внешнего стимула.
Мальчик 6 лет вечером во время засыпания почувствовал в левой руке покалывающие ощущения, которые вскоре распространились от руки к лицу. В течение некоторого времени рука оставалась онемевшей. На обследовании у педиатра было выявлено нормальное неврологическое состояние с нормальными рефлексами, нормальной чувствительностью и соответствующим возрасту умственным развитием. На ЭЭГ были обнаружены спайки и резкие волны в правой центральной области, рядом с зоной соматосенсорной коры, соответствующей руке. При лечении карбамацепином (блокатором натриевых каналов) неприятные ощущения исчезли.
В этом случае речь идет о фокальном церебральном нарушении со спонтанными синхронными разрядами пирамидных клеток в соматосенсорной коре, так называемых приступах Джексона (названных в честь Хьюлингса Джексона, 1835-1911). Прогноз при такой форме эпилепсии благоприятен; часто после полового созревания никакого лечения не требуется.
2. Вторичная соматосенсорная кора (SII). Вторичная соматосенсорная кора расположена в теменной покрышке (рис. 5Б) над сильвиевой щелью. У большинства людей она полностью скрыта в глубине извилины и поэтому не может быть представлена при изображении мозга сбоку. Рецептивные поля нейронов во вторичной соматосенсорной коре имеют соматотопическую структуру, причем ноги отображаются медиально вблизи островковой коры, а лицо — латерально вблизи поверхности мозга. Таким образом, лицевые области первичной и вторичной соматосенсорной коры оказываются расположенными непосредственно вблизи друг от друга.
В окружении вторичной соматосенсорной коры различают несколько других полных соматотопиче-ских представительств тела. Число и функции этих многочисленных зон до сих пор однозначно не определены. Некоторые нейроны обладают двусторонними рецептивными полями. Многие нейроны во вторичной соматосенсорной коре кодируют форму осязаемых объектов.
3. Задняя теменная кора. Задняя теменная кора (зоны 5 и 7 по Бродману) относится к ассоциативным соматосенсорным областям. Многие нейроны этой зоны реагируют как на раздражение кожи, так и на зрительные стимулы. Наряду с идентификацией местоположения стимула предоставляется информация для управления моторикой. Эта область важна для коркового представительства схемы тела, т. е. субъективной картины свойственной телу формы и его принадлежности себе. Повреждения в этой области приводят к геминеглекту контралатеральной стороны, т. е. к отсутствию ее восприятия в пространстве; это касается как контралатеральной половины тела, так и внешних стимулов с контралатеральной стороны внешнего пространства.
4. Островковая кора. Островковая кора — самостоятельная доля коры головного мозга, которая полностью спрятана в его глубине. В средней дорсальной части островка обнаружены проекционные клетки многочисленных соматосенсорных путей, в основном терморецепции, ноцицепции и висцероцепции. Это интерпретируется как центральное представительство внутреннего состояния организма. У островковой коры есть нейронные проекции в лимбическую систему.
и) Особенности системы тройничного нерва. В области головы (исключение: верхний шейный дерматом на затылке) соматосенсорные функции опосредуются V парой черепных нервов (тройничный нерв).
1. Механорецепция, терморецепция и ноцицепция. Ганглий тройничного нерва, аналогично спинальным ганглиям, содержит псевдоуниполярные нейроны, которые являются первыми нейронами соматосенсорного тракта. Синапс со вторым нейроном для механорецептивных путей расположен в ипсилатеральном ядре глубокой чувствительности тройничного нерва в варолиевом мосту, для путей терморецепции и ноцицепции — в ипсилатеральном каудальном подъядре спинального ядра тройничного нерва (в верхней части шейного отдела спинного мозга). От обоих ядер идут проекции к контралатеральному соматосенсорному таламусу в вентральное заднемедиальное ядро (VPM), где находится третий нейрон.
Спинальное ядро тройничного нерва функционально соответствует заднему рогу спинного мозга и проецирует в таламус, а оттуда — в ретикулярную формацию. Четвертый нейрон лежит в коре головного мозга, в наиболее латеральной части постцентральной извилины (рис. 3).
2. Проприоцепция и висцерорецепция. Проприоцепция жевательной мускулатуры опосредуется необычным сигнальным путем: первый нейрон расположен внутри ЦНС, в ядре тройничного нерва, лежащем глубоко внутри черепа (в среднем мозге). В качестве аналога висцерорецепции в системе тройничного нерва можно привести иннервацию мозговых оболочек. Она представлена в спинальном тройничном ядре, что имеет значение при головных болях. Поскольку система тройничного нерва простирается от шейного отдела спинного мозга до среднего мозга, это может приводить к очень тяжелым функциональным нарушениям при инфарктах или других повреждениях в данной области.
3. Резюме. Функциональные свойства третьего и четвертого нейронов:
- Тело третьего нейрона как в лемнискальной, так и в спиноталамической системе находится в контралатеральном вентробазальном таламусе. Здесь передача сигнала в зависимости от состояния сна или бодрствования может блокироваться восходящей ретикулярной активирующей системой (ВРАС). За счет тормозного ГАМКергического влияния ретикулярного ядра таламуса происходит контрастирование (латеральное торможение).
- Четвертый нейрон лежит в контралатеральных соматосенсорных областях коры (первичная и вторичная соматосенсорная, задняя теменная и островковая кора). В первичной соматосенсорной коре осуществляются первые этапы распознавания предмета (ориентация контура, направление движения).
- Вторичная соматосенсорная кора принимает участие в тактильном распознавании объекта. Локализация стимула осуществляется задней теменной корой. Для осознанного восприятия стимула предположительно требуется распределенная активность во всей соматосенсорной сети. Через нисходящие пути кора головного мозга может модулировать обработку входных стимулов, например в рамках избирательного внимания.
- Рекомендуем ознакомиться далее "Механорецепция - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 10.2.2025