

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Механорецепция - с точки зрения физиологии человека
Оглавление статьи:- Сенсорные функции механорецепции
- Нейронная основа механорецепции
- Резюме
- Список использованной литературы
а) Сенсорные функции механорецепции. С помощью подушечек пальцев, губ и языка мы распознаем предметы, ощущая их с высоким пространственным разрешением (0,5-1 мм). На всей поверхности тела мы можем детектировать легкие касания и их направление. Ладони рук и стопы ног особенно чувствительны к вибрациям около 100200 Гц; при этом достаточно амплитуды колебаний менее 1 мкм.
1. Свойства механорецепции. Механорецепция передает такие виды ощущений, как давление, касание и вибрация.
2. Локальное давление. При стимуляции с помощью статистического давления можно определить порог интенсивности и порог пространственного различения (рис. 1). Порог интенсивности особенно низок на лице, проксимальных отделах конечностей и туловище.
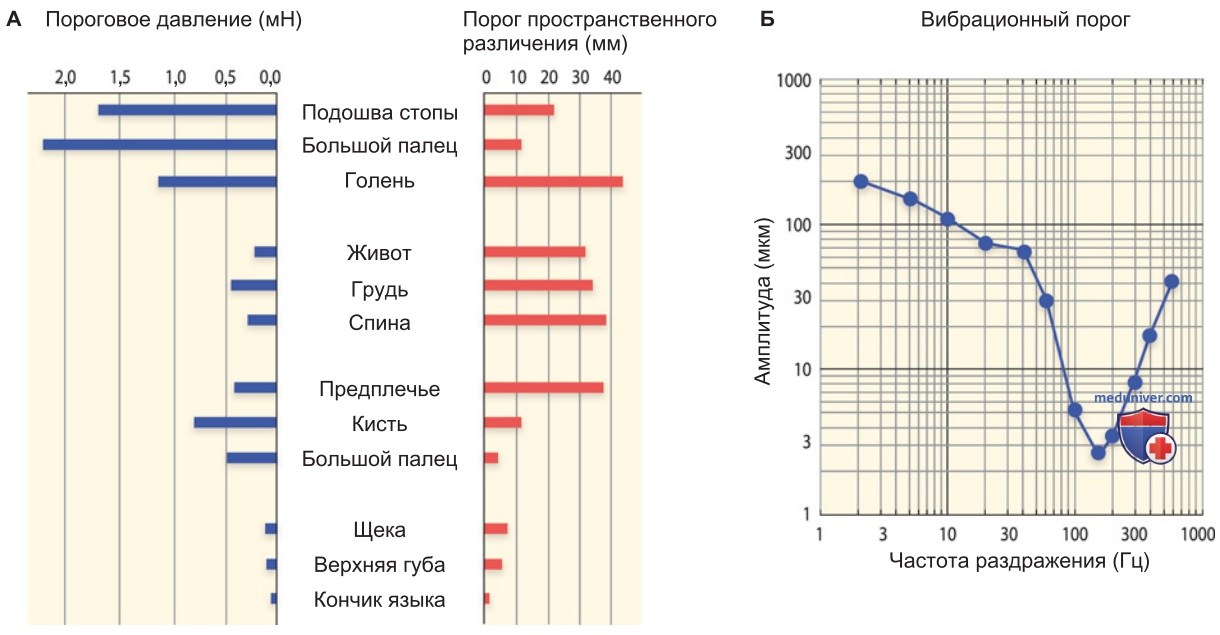
Наиболее высокие значения порога на подушечках пальцев и особенно стоп обуславливаются сильным ороговением кожи. Для порога пространственного различения характерно другое распределение: здесь наиболее низкие значения порога свойственны коже языка, губ и подушечек пальцев (0,5-1 мм), тогда как в области туловища они особенно высоки (40 мм).
Несмотря на сильное огрубление подушечек пальцев ног порог пространственного различения там ниже, чем на туловище. Области с особенно низким порогом пространственного различения (язык, губы и подушечки пальцев рук) называют по аналогии со зрительной системой тактильной «центральной ямкой» из-за высокого пространственного разрешения; благодаря этому мы можем распознавать форму предметов посредством осязания.
Другие области кожи не выполняют эту функцию, за исключением рудиментарной осязательной функции подушечек пальцев ног. У новорожденных на первом месте стоит осязание языком и губами. Маленькие дети исследуют окружающий мир одновременно пальцами и глазами. Таким образом, зрительная и соматосенсорная системы способствуют изучению общего масштаба окружающего мира, что необходимо и для управления моторикой.
Из-за более высокого пространственного разрешения языка по сравнению с пальцами рук объекты во рту кажутся нам вдвое больше, чем они есть на самом деле.
3. Касание подвижными раздражителями. Плохое пространственное разрешение туловища имеет значение только при одновременном применении статических стимулов, разнесенных в пространстве (симультанный пространственный порог). При разнесенном во времени касании в двух местах (сукцессивный пространственный порог) или при поглаживании кожи пространственное разрешение лучше, и может распознаваться даже направление движения (ползающая по коже муха точно локализуется). Благодаря осязанию можно даже узнать число, написанное ватной палочкой на тыльной стороне руки (стереогнозия).
4. Вибрации. Способность кожи ощущать вибрации поражает своей высокой чувствительностью: тренированные испытуемые распознают колебания амплитудой менее 1 мкм. Порог ощущения вибрации, однако, является таким низким только при частотах 100-200 Гц; ниже и особенно выше этого диапазона он резко возрастает в несколько раз. Вибрационные стимулы локализуются слабо.
Предполагается, что колебания земли, ощущаемые подошвами ног, могут предупреждать о приближении крупного и потенциально опасного существа; при лазании нечто похожее происходит при ощущении колебаний ладонями. Чувство вибрации важно для распознавания текстуры ощупываемых поверхностей.
б) Нейронная основа механорецепции. Четыре гистологически идентифицируемых типа корпускулярных нервных окончаний в коже соответствуют четырем типам механорецепторов, различимым функционально по скорости адаптации и величине рецептивных полей. Соматосенсорные области коры выполняют различные задачи при распознавании тактильных образов.
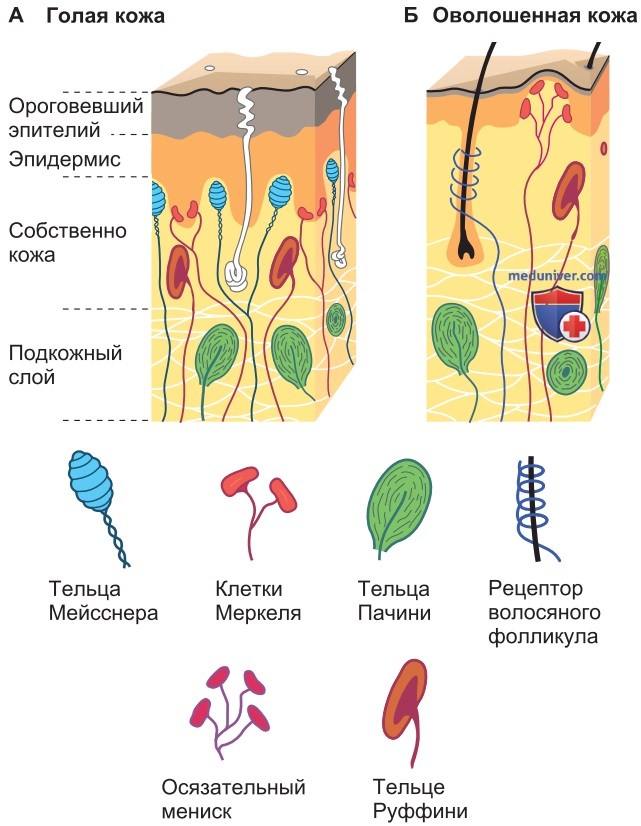
1. Гистология механорецепторов. В коже подушечек пальцев, лишенной волосяного покрова, можно функционально различить четыре типа механорецепторов, каждый из которых имеет свои корпускулярные нервные окончания (табл. 3, рис. 2). Они различаются по двум свойствам: скорости адаптации при постоянном давлении и величине рецептивных полей (рис. 10).
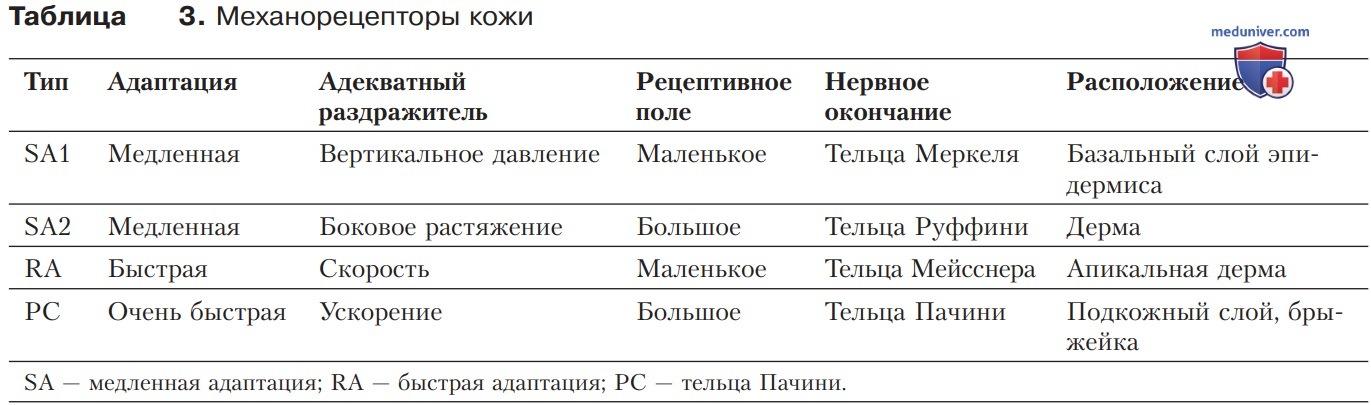
2. Скорость адаптации. Оба медленно адаптирующихся типа механорецепторов SA1 и SA2 проявляют статическую реакцию после адаптации; при прекращении стимуляции прекращается и их активность (рис. 3А). Они функционируют как пропорционально-дифференциальные датчики; только пропорциональные датчики в кожной механорецепции не встречаются. Поэтому наше ощущение давления адаптируется, и ношение одежды, например, воспринимается только при движении.
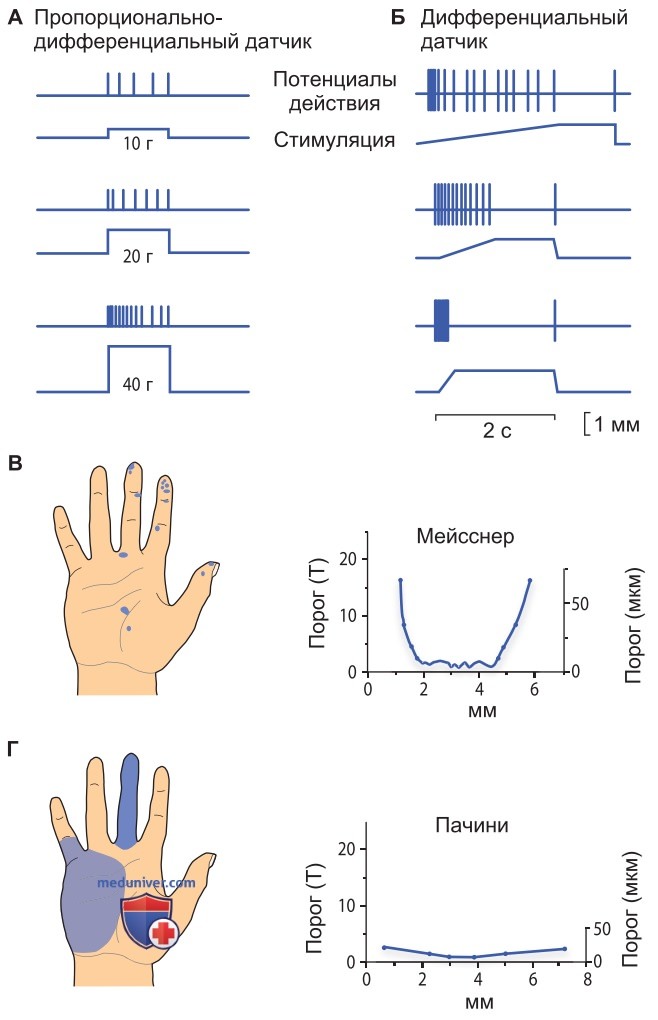
Оба быстро адаптирующихся механорецептора RA и РС не способны генерировать статический ответ, поэтому являются исключительно дифференциальными датчиками (рис. 3Б). Интересно, что каждое изменение давления, независимо от направления изменения, приводит к активации, которая, например, различается по компоненте дифференциального ответа рецепторов. RA-рецепторы служат сенсорами скорости, а РС-рецепторы — ускорения; потому они различаются по скорости адаптации.
3. Величина рецептивных полей. SA1-рецепторы имеют маленькие рецептивные поля (диаметром 3 мм), поэтому они реагируют только на стимулы давления, действующие перпендикулярно к коже. Поскольку SA2-рецепторы реагируют на поперечное растяжение кожи, их рецептивные поля большие (диаметром 3 см). Рецептивные поля RA-рецепторов так же малы, как и поля SA1-рецепторов (рис. 3В). РС-рецепторы расположены в подкожном слое, однако они крайне чувствительны; из этого следует вывод, что их рецептивные поля очень велики (рис. 3Г).
Механорецепторы кожи не демонстрируют спонтанную активность без внешних раздражителей. Только в случае SA2-рецепторов может наблюдаться кажущаяся спонтанная активность, если положение сустава приводит к растяжению кожи в пределах рецептивного поля.
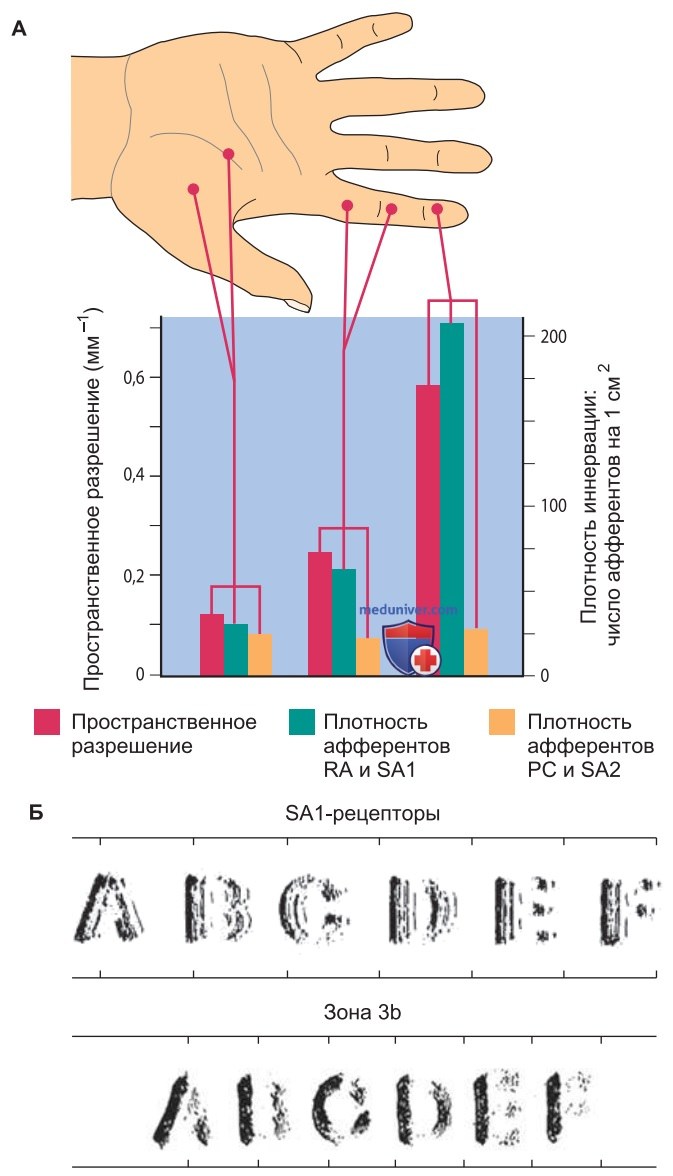
4. Пространственное разрешение осязания. SA1-рецепторы и RA-рецепторы благодаря небольшим размерам рецептивных полей обеспечивают наиболее точную информацию для пространственной дискриминации механорецепции. Их плотность иннервации особенно высока на подушечках пальцев рук (рис. 4А), тогда как SA2-рецеп-торы и РС-рецепторы распределены равномерно по всей руке. SA1-рецепторы реагируют сильнее, когда край предмета находится в пределах их рецептивного поля, чем при контакте только с ровной поверхностью. Благодаря этой особенности SA1-рецепторы важны для распознавания объектов.
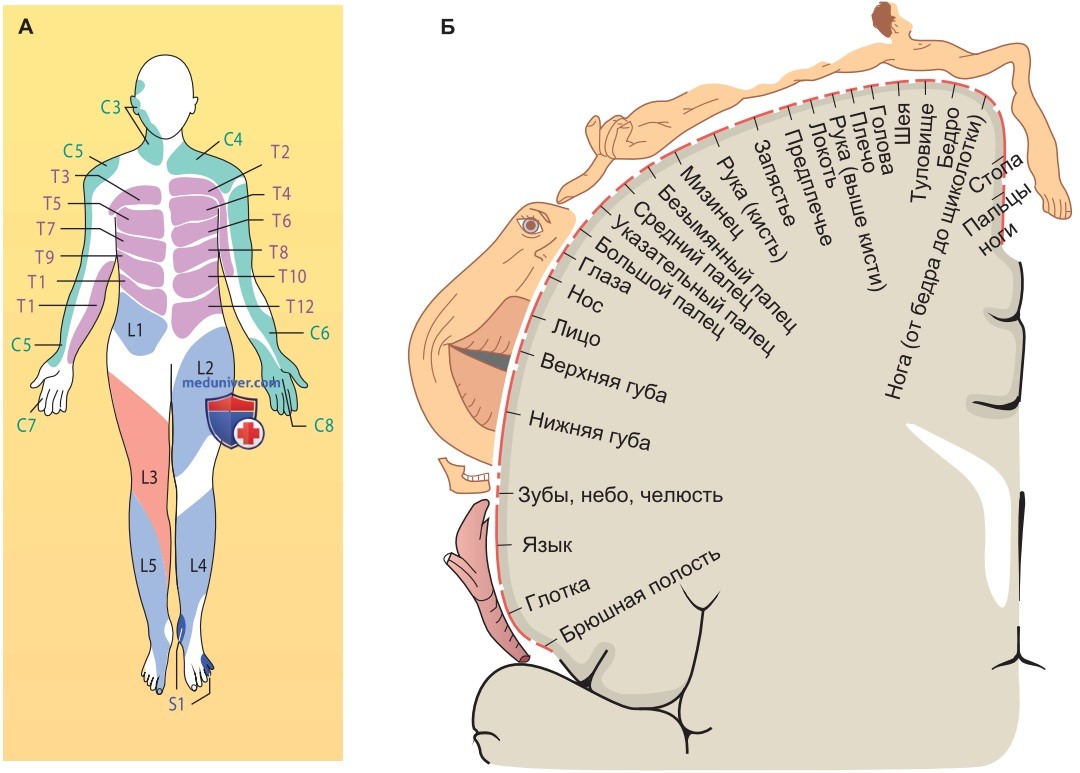
Наряду с плотностью периферической иннервации величина коркового представительства в первичной соматосенсорной коре тоже играет роль в различиях в пространственном разрешении механорецепции областей кожи (рис. ниже).
5. Форма кодирования при осязании. От периферических SA1-рецепторов до кортикальных нейронов в SI (область 3b) сохраняется представительство поверхности кожи «от точки к точке» и точное представление осязаемого объекта (рис. 4Б). Внутри субрегионов первичной соматосенсорной коры свойства рецептивных полей становятся сложнее; некоторые нейроны, например, избирательно реагируют на определенную ориентацию контура, независимо от его положения в рецептивном поле.
Таким образом, кортикальные нейроны в большей степени представляют абстрактные признаки объекта, но не отдельный участок на поверхности ладони. С выделения отдельных признаков объекта начинается распознавание предмета. Дальнейшие этапы тактильного распознавания объектов («что?») осуществляются во вторичной соматосенсорной коре как часть вентрального пути обработки сигнала. Это распознавание предмета происходит аналогично распознаванию в зрительной системе, о которой известно уже больше деталей.
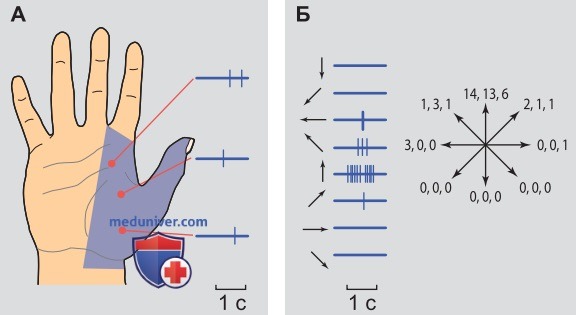
6. Кодирование движения при осязании. Соответствующую информацию для этих целей в ЦНС поставляют прежде всего RA-рецепторы. В зоне 1 первичной соматосенсорной коры находятся чувствительные к движениям нейроны (рис. 5). Они слабо реагируют на статическую стимуляцию давлением в пределах их рецептивного поля. Однако, если стимул перемещается по поверхности кожи, нейроны избирательно реагируют на определенное направление движения, вне зависимости от того, к какой части рецептивного поля прикладывается этот подвижный стимул.
Дальнейшая обработка информации для локализации тактильных раздражителей («где?») происходит в задней теменной коре (зоны 5 и 7). Эта область является частью дорсального пути обработки сигнала, в котором также происходит конвергенция соматосенсорных и зрительных входов.
7. Периферическое кодирование вибрационных стимулов. РС-рецепторы реагируют особенно сильно на вибрационные раздражители частотой 100-200 Гц. За порог принимают амплитуду колебаний, при которой афферентное нервное волокно генерирует только один потенциал действия за колебательный период; при более низкой амплитуде ответ может отсутствовать, при более высокой за период колебаний генерируется несколько потенциалов действия. В области максимальной чувствительности РС-рецепторы точно кодируют те амплитуды колебаний, которые воспринимаются как вибрация (рис. 6).
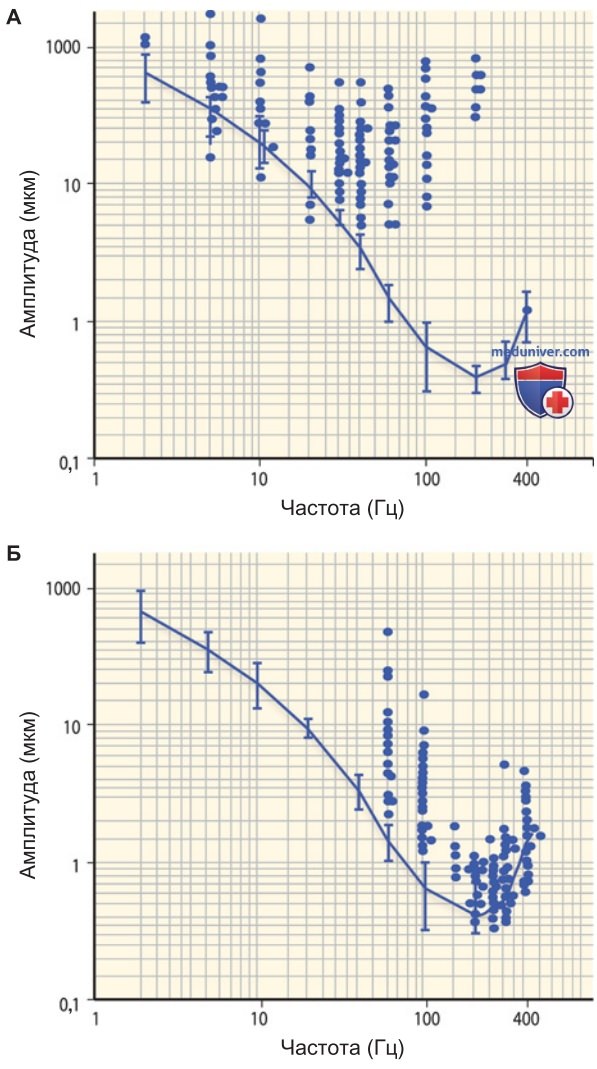
Ниже 40 Гц порог возбуждения РС-рецепторов, однако, выше соответствующих порогов ощущения вибрации (рис. 1Б). В этом диапазоне частот афферентные сигналы чувства вибрации обеспечивают RA-рецепторы.
в) Резюме. Сенсорные функции и нейронная основа механорецепции. С помощью кожной механорецепции мы узнаем пространственные характеристики осязаемых предметов, локализуем место и направление касаний и воспринимаем вибрацию. Четыре функциональных типа периферических механорецепторов соответствуют каждый своему гистологическому типу корпускулярного нервного окончания. SAl-рецепторы адаптируются медленно и обладают маленькими рецептивными полями; они позволяют распознавать пространственные детали осязаемых объектов.
Эта способность особенно сильно выражена во рту и на подушечках пальцев в силу высокой плотности иннервации и большого кортикального представительства. SA2-рецепторы адаптируются медленно и обладают большими рецептивными полями; они избирательно реагируют на тангенциальное напряжение при растяжении кожи и принимают участие в пространственном ощущении положения сустава. RA-рецепторы быстро адаптируются и обладают маленькими рецептивными полями; они реагируют только на подвижные раздражители. РС-рецепто-ры адаптируются еще быстрее и имеют большие рецептивные поля; они избирательно реагируют на ускорение, например, при вибрации частотой 100-200 Гц.
В первичной соматосенсорной коре форма тактильных объектов представлена в зоне 3b, движущиеся стимулы — в зоне 1. Дальнейшая обработка сигналов распознавания объекта осуществляется во вторичной соматосенсорной коре (вентральный путь), в то время как локализация стимула осуществляется в задней теменной коре (дорсальный путь).
- Рекомендуем ознакомиться далее "Проприоцепция - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 10.2.2025