

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Восприятие цвета (цветовое зрение) - с точки зрения физиологии человека
Оглавление статьи:- Основы восприятия цвета
- Законы цветового зрения
- Физическое и физиологическое смешение цветов
- Сенсорно-физиологические законы смешения цветов
- Физиология цветного зрения
- Нарушения цветового восприятия
- Резюме
- Список использованной литературы
а) Основы восприятия цвета. Восприятие цвета выходит за рамки физического определения длины волн светового стимула.
1. Типы восприятия цвета. При восприятии цвета различают цвета источников света, светящихся самостоятельно, и цвета поверхностей предметов, видимых в отраженном свете. Различают яркие цвета (красный, оранжевый, синий и т.д.) и ахроматические, шкала которых проходит от глубокого черного через различные оттенки серого до ярко-белого цвета.
Часть ярких цветов содержится в видимом спектре солнечного света (радуга). Непрерывный переход цветового восприятия от фиолетового через синий, зеленый, желтый, оранжевый к красному позволил предположить, что длина волны монохроматического светового раздражителя определяет цветовое ощущение. Это верно лишь отчасти. Пурпурные цвета между синим и красным в спектре солнечного света вообще не встречаются.
Кроме того, почти все цветовые ощущения спектра видимого света могут возникать посредством смешения других спектральных цветов. Отражающийся от поверхности свет одной и той же длины волны тоже может вызвать совершенно разные цветовые ощущения, в зависимости от распределения цветных поверхностей в окружении.
Эти наблюдения показывают, что физического объяснения цветового зрения недостаточно (речь идет не о физиологической системе измерения длины волн). Цветовое восприятие в конечном счете возникает благодаря нейронным процессам в мозге.
б) Законы цветового зрения. Законы цветового зрения описывают цветовое пространство.
1. Цветовое пространство. Чистые яркие цвета (цветовые тоны) образуют континуум; при смешении с оттенками серого (насыщенность) и яркостью он формирует трехмерное цветовое пространство, которое описывает все цветовые валентности. Цветность описывается тоном цвета и его насыщенностью. Чистый красный при смешении с белым дает розовый цвет, с черным — коричневый. Для каждого цвета существует множество различных значений яркости.
Число различимых цветовых валентностей можно получить, умножив число различимых цветовых тонов (примерно 200-400) на степени насыщенности (примерно 20-25) и степени яркости (примерно 500-700). При нормальном цветовом восприятии цветовое пространство состоит из 2-7 млн различных цветовых валентностей.
P.S. Постоянство цвета. В естественных условиях освещения восприятие цветов поверхности в определенных границах не зависит от спектрального состава света. Постоянство цвета означает не что иное, как нашу интерпретацию относительной спектральной отражательной способности поверхностей по отношению к другим объектам в видимом пространстве. Постоянство цвета важно для распознавания объектов в естественной среде в различных условиях освещения (например, голубоватый свет в полдень, красноватый свет на закате).
При спектрально ограниченном искусственном свете можно увидеть границы постоянства цвета: цвет образцов ткани часто кажется нам при искусственном свете другим, нежели при дневном свете.
в) Физическое и физиологическое смешение цветов. Субтрактивное смешение цветов — физический феномен, аддитивное смешение цветов — физиологический.
1. Субтрактивное смешение цветов. Смешивание красок художником называется субтрактивным смешением цветов. Это чисто физический процесс, при котором каждая частичка пигмента краски представляет собой широкополосный цветной фильтр, поглощающий некоторые части спектрального состава света и отражающий остальные компоненты. Если смешать желтый пигмент, который поглощает коротковолновые компоненты белого света, с синим пигментом, поглощающим длинноволновые компоненты, то оставшиеся компоненты из средневолновой области спектра достигают глаза, и результат смешивания воспринимается как зеленый цвет (рис. 1).
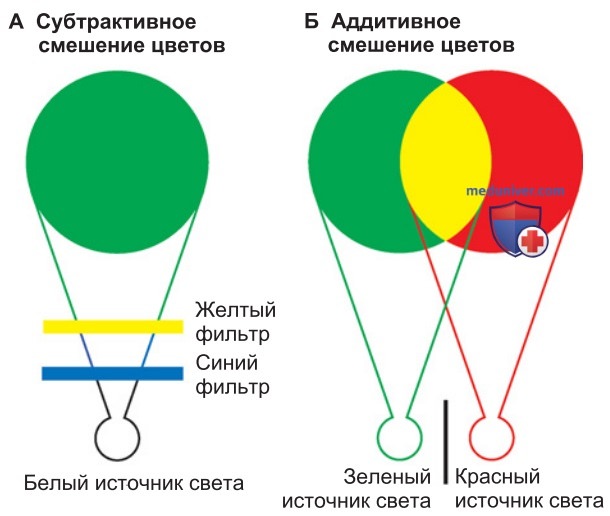
2. Аддитивное смешение цветов. Аддитивное смешение цветов возникает, если на участок сетчатки падает свет с различными длинами волн. Смешение зеленого и красного при этом дает желтый (рис. 1), при смешении желтого и синего цветов можно, в отличие от субтрактивного смешения, получить белый. Аддитивное смешение цветов представляет собой физиологический (нейронный) механизм. Если смешанные цвета монохроматичны, то при аддитивном смешении можно получить оттенки, соответствующие другой области спектра или неспектральной области между красным и синим (пурпурный).
В цветном телевизоре, а также в изобразительном искусстве при созерцании картин пуантилистов (художники Синьяк, Сёра, Моне) играет роль аддитивное смешение цветов, если при наблюдении с достаточного расстояния две и более цветовые точки попадают на один участок сетчатки и там одновременно возбуждают два или три типа колбочек.
г) Сенсорно-физиологические законы смешения цветов. При нормальном цветовосприятии (примерно 95% населения) любой цвет может быть создан аддитивным смешением цветов двух или трех подходящих оттенков цвета.
1. Стандартная цветовая диаграмма. Стандартная цветовая диаграмма («цветовой треугольник»; рис. 2) используется для геометрического представления физиологического смешения цветов. Если два цвета из стандартной цветовой диаграммы аддитивно смешиваются друг с другом, воспринимается цвет, который лежит на прямой линии между двумя смешиваемыми цветами.
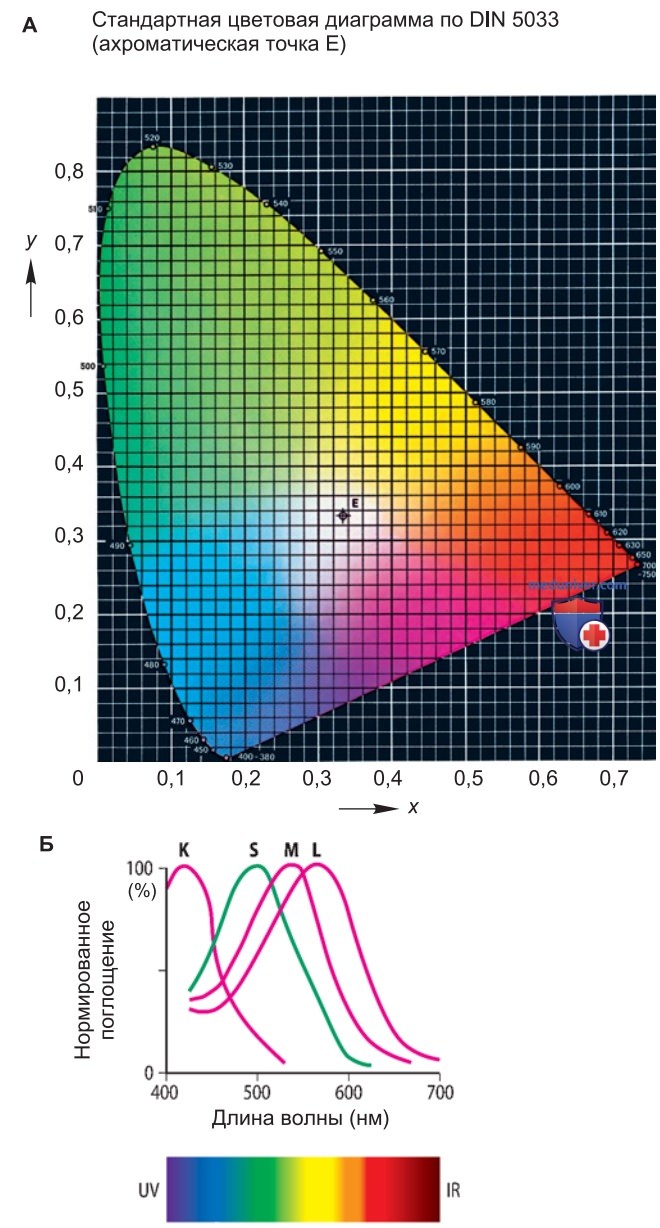
2. Белый и пурпурный. Белый цвет создается аддитивным смешением дополнительных цветов, которые в стандартной цветовой диаграмме (рис. 2) лежат на прямых линиях, проходящих через белую точку Е. Пурпурный цвет получается при аддитивном смешении монохроматического света с обоих концов спектра.
Для любого цвета F* считается, что он может быть получен при аддитивном смешении трех цветов спектра:
d{F *} = a{F1} + b{F2} + с{F3}. (6)
На основе международного соглашения для построения современной метрической цветовой системы используют монохроматические первичные цвета F1 (700 нм, красный), F2 (546 нм, зеленый) и F3 (435 нм, синий). Для аддитивной смеси белого цвета используют весовые коэффициенты а, b и с в уравнении (6):
а + b + с = d = 1. (7)
P.S. Проверка цветового ощущения с помощью аномалоскопа. Результаты систематических исследований аддитивного смешения цветов формируют основу для разработки законов цветного зрения и метрических цветовых систем. Аддитивное смешение цветов, кроме того, используется для выявления нарушений восприятия цвета. Например, в аномалоскопе Нагеля на одну половину круга проецируется спектральный желтый (λ = 589 нм), на другую половину — смесь спектрального красного (λ = 671 нм) со спектральным зеленым (λ = 546 нм).
Испытуемый должен отрегулировать смешение красного и зеленого так, чтобы полученный в результате смешения желтый цвет нельзя было отличить от спектрального желтого. Здесь применяется уравнение смешивания цветов:
а (красный, 671 нм) + b (зеленый, 546 нм) ~ с (желтый, 589 нм). (8)
Знак ~ показывает приблизительное равенство и не имеет математического значения. Человек с нормальным цветовым зрением в таком уравнении устанавливает коэффициенты для красного примерно 40, для зеленого — примерно 33 относительных единицы.
д) Физиология цветного зрения. Трихроматическая обработка трех различных систем колбочек сетчатки вытесняется в центральной зрительной системе антагонистическими процессами (контрастные цвета).
1. Кривые спектров поглощения и абсолютная чувствительность. Кривые спектров поглощения отдельных палочек и колбочек были измерены с помощью микроспектрофотометрии (рис. 2). Кривая поглощения для палочек соответствует кривой для родопсина и согласуется с хорошей аппроксимацией со спектральной чувствительностью скотопического зрения (рис. ниже).
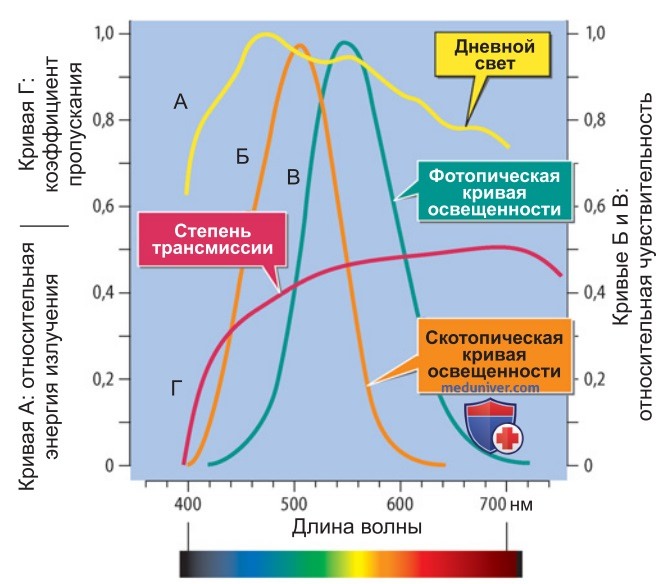
Три типа колбочек с различными зрительными пигментами (йодопсины или опсины колбочек) соответственно имеют совершенно разные спектральные максимумы поглощения: К-колбочки наиболее эффективно поглощают в коротковолновой области при 420 нм («синий»), М-колбочки — в средневолновой области при 535 нм («зеленый») и L-колбочки — в длинноволновой области при 565 нм («красный»). При сопоставлении L-колбочек с «красным» можно обратить внимание, что его максимум поглощения у человека находится не в красной, а в желтой области спектра.
При нормировании кривых поглощения абсолютная чувствительность палочек и колбочек теряется. В действительности абсолютная чувствительность палочек примерно на 2 порядка выше, а чувствительность К-системы примерно на 1,5 порядка ниже, чем чувствительность систем L и М. Вторичные максимумы поглощения палочек, а также средне- и длинноволновых колбочек в ультрафиолетовой области при 350 нм (см. выше) функционально могут быть устранены УФ-блокирующим фильтром оптических сред глаза и поэтому не представлены на рис. 2.
2. Обработка сигнала в сетчатке. Три различные системы колбочек (К, L, М) функционируют как независимые сенсоры фотопического зрения. Первичный прием сигнала в сетчатке осуществляется, как правило, трихроматически (трихроматическая теория цвета Юнга, Максвелла и Гельмгольца гласит: любой цвет может быть получен смешением трех монохроматических цветов). Свет данной длины волн, однако, поглощается двумя или тремя разными зрительными пигментами с различной эффективностью, и только посредством расчета этой характерной картины поглощения зрительная система получает информацию о длине волн.
Сигналы колбочек переключаются на следующие нейроны так, что возникают нейроны противоположных цветов (согласно теории противоположных цветов Геринга, посредством смешения пар противоположных цветов — красного—зеленого, синего—желтого и черного—белого — можно также получить любой цвет). В парвоцеллюлярных ганглиозных клетках сетчатки происходит переключение либо сигналов L-колбочек с сигналами М-колбочек на красно-зеленые нейроны, либо антагонистическое переключение сигналов К-колбочек с сигналами L- и М-колбочек вместе на сине-желтые нейроны (рис. 3).
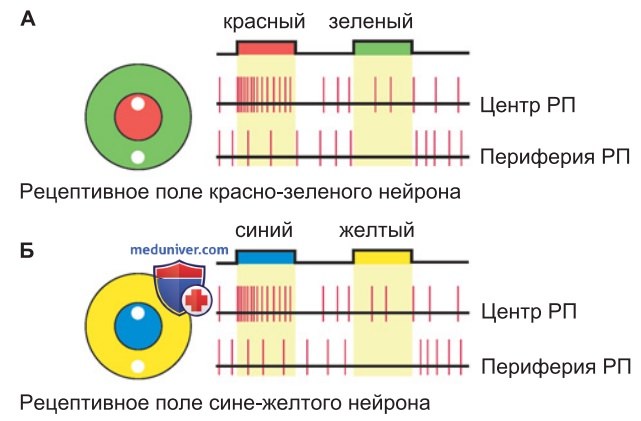
В то же время среди широко распространенных красно-зеленых (рис. 3) и зелено-красных нейронов встречаются on- и of-нейроны, среди сине-желтых нейронов — синие off-клетки с чувствительной к желтому антагонистической периферией (K+/(L - М-) (рис. 3).
3. Рецептивные поля цветочувствительных центральных нейронов. Рецептивные поля цветочувствительных парвоцеллюлярных нейронов в латеральном коленчатом теле соответствуют РП для ганглиозных клеток сетчатки. Они не цветоспецифичны, поскольку реагируют аналогично на различия в цвете и освещенности. Только в цветочувствительных нейронах первичной зрительной коры (в богатых цитохромоксидазой областях) обнаруживаются действительно цветоспецифичные клетки, двойные нейроны противоположных цветов.
Они возникают в результате синаптического переключения на них двух полярных нейронов противоположных цветов и независимо от освещенности реагируют на цветовой контраст между центром и периферией рецептивного поля.
P.S. Нейроны противоположных цветов, например красного и зеленого, характеризуются следующими свойствами в центре и на периферии рецептивного поля: в центре = L+, М-, на периферии = L-, М+. Они реагируют не на увеличение доли красного в освещении, а на контрасты красный—зеленый между центром и периферией.
4. Феномены цветовых контрастов. Если ярко-зеленое кольцо окружает серое пространство, то из-за одновременного цветового контраста оно будет казаться немного красноватым. Когда кольцо исчезает, наблюдатель видит на белом фоне цветной последовательный контраст: красное кольцо, окружающее зеленоватую внутреннюю структуру. Цветные следовые образы появляются в каждом случае в цветовом тоне противоположного цвета.
е) Нарушения цветового восприятия. Существуют различные «периферические» нарушения восприятия цвета, которые часто наследуются рецессивно и сцеплены с Х-хромосомой.
1. Виды нарушений восприятия цвета. Нарушения восприятия цвета обусловлены либо патологическим изменением зрительного пигмента, а также обработки сигнала в фоторецепторах и в следующих за ними нервных клетках, либо изменением спектрального коэффициента пропускания диоптрического аппарата. Редко встречаются «центральные» нарушения восприятия цвета в результате повреждения экстрастриарной зрительной коры мозга.
Различают два больших класса генетически обусловленных периферических нарушений восприятия цвета, трихроматические и дихроматические нарушения цветного зрения.
2. Аномалии трихроматического зрения. Наиболее мягкой формой нарушения восприятия цвета является цветовая аномалия, которая, как правило, наследуется рецессивно и сцеплена с Х-хромосомой. Исходя из этого, мужчины с цветовой аномалией встречаются намного чаще, чем женщины. У таких людей число цветовых валентностей, различаемых трихроматами с цветовой аномалией, уменьшено по сравнению с нормальным восприятием цвета. Коэффициенты а, b и c в уравнениях (6) и (8) (см. выше) различны для нормальных и аномальных трихроматов.
3. Классификация. Существует три класса цветовых аномалий: нарушения восприятия красного и зеленого статистически играют наибольшую роль: протаномалия (слабое восприятие красного у 1,6% мужчин) и дейтераномалия (слабое восприятие зеленого у 4,2% мужчин). При выравнивании цветовых ощущений в аномалоскопе (уравн. (8) человек с протаномалией использует при смешивании цветов больше красного, чем человек с нормальным цветовым восприятием; человек с дейтераномалией, напротив, больше зеленого.
Тританомалия (слабое восприятие синего) встречается крайне редко (вместе с тританопией 0,0001%), это нарушение в работе «синих» колбочек или системы желтого—синего.
4. Дихроматы. В этом случае наблюдается не просто слабое различение цвета, а отсутствие одного из трех цветовых рецепторов. Наиболее часто встречающиеся формы дихромазии тоже наследуются рецессивно и сцеплены с Х-хромосомой. Цветовое пространство дихроматов благодаря уравн. (6) можно полностью описать через смешение двух первичных цветов. Количество различаемых цветовых валентностей у дихроматов намного меньше, чем у трихроматов.
У протанопов (не воспринимающих красный цвет, 0,7% мужчин) и у дейтеранопов (не воспринимающих зеленый цвет, 1,5% мужчин) нарушена система красного—зеленого. Помимо дисфункции пигмента в «красных» или «зеленых» колбочках проявляется также нарушение нейронного переключения в нервных клетках сетчатки. При крайне редко встречающейся рецессивной аутосомной тританопии (отсутствие восприятия синего) путают желтый и синий цвета. Сине-фиолетовая область спектра, как и область между 565 и 550 нм, видится тританопами в зеленых тонах.
Скотопическое зрение при описанных нарушениях цветового восприятия, как правило, оказывается нормальным.
5. Полная цветовая слепота. Менее 1 миллионной части населения абсолютно не воспринимают цвета и видят мир примерно так, как человек с нормальным цветовым зрением воспринимает черно-белый фильм. Люди с цветовой слепотой (монохроматы) также часто страдают от нарушения световой адаптации в фотопической области. Порог их ослепления очень низок (нарушение торможения амакринов палочек колбочковыми сигналами), и нормальный дневной свет для них неприятен, поэтому они избегают дневного света и часто носят солнечные очки (фотофобия).
Поскольку у людей с цветовой слепотой спектральная кривая яркости нормального человека находится в скотопической области адаптации (рис. выше), можно предположить, что палочки и колбочки в качестве единственного зрительного пигмента содержат родопсин (рис. 2 и ниже).
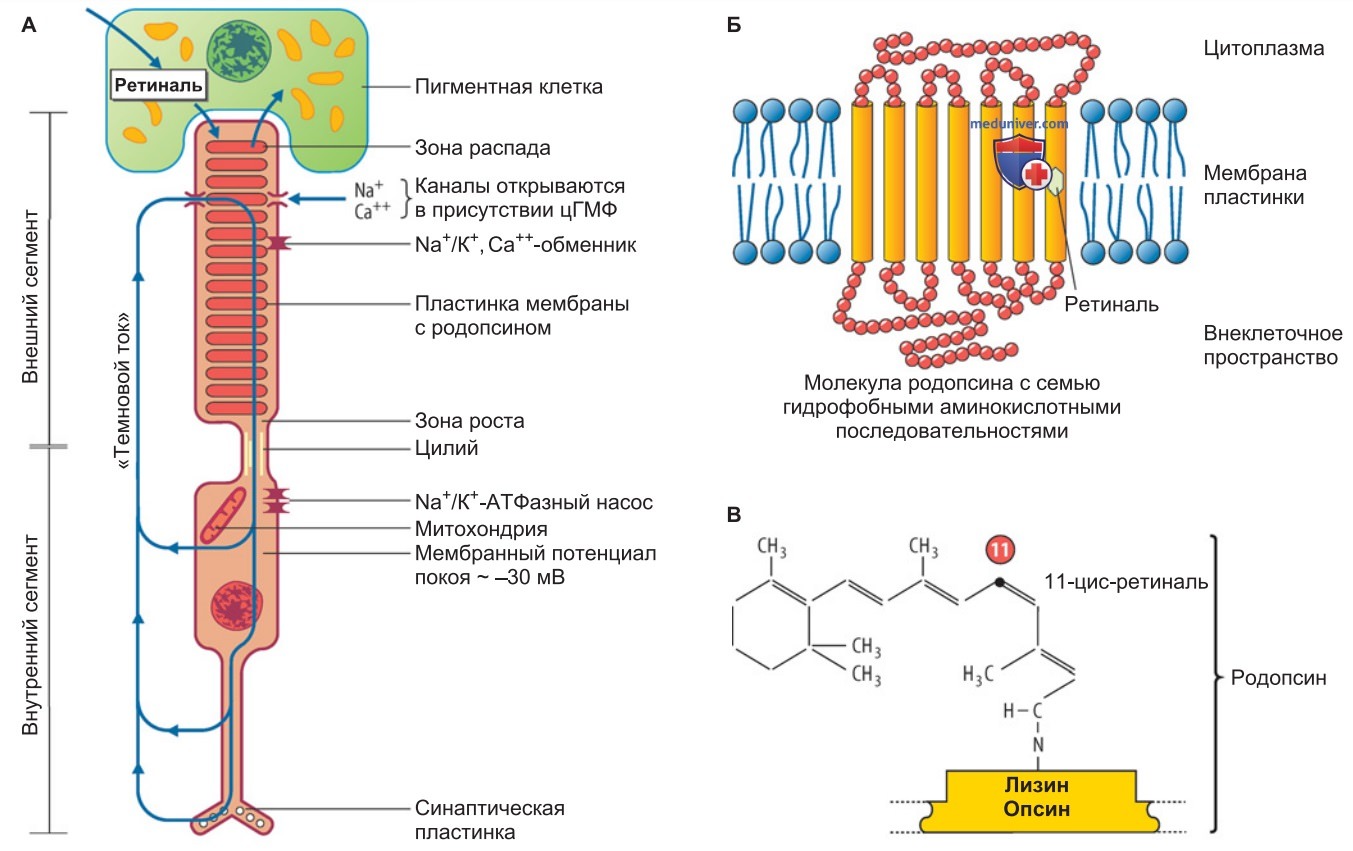
6. Нарушения системы палочек. Люди с функциональными нарушениями работы палочек не имеют дисфункций цветового восприятия, однако у них ограничена темновая адаптация. Причиной этого нарушения, называемого «куриной» слепотой, может быть недостаток в питании витамина А1, который является предшественником ретиналя, компонента зрительного пигмента.
1. Цветное зрение. Наша зрительная система не является физической системой измерения длин световых волн. Цвета и восприятие цвета с самого начала возникают в результате дифференциального расчета сигналов от трех типов колбочек, каждый из которых предпочтительно реагирует на короткие, средние или длинные волны. Отсюда происходят вначале подкорковые нейроны противоположных цветов, а затем — двойные нейроны противоположных цветов в зрительной коре, которые на основе своего антагонистического взаимодействия действительно цветоспецифичны и могут способствовать постоянству восприятия цвета независимо от разных условий освещения.
В цветоспецифичной зоне V4 цветовые валентности цветового пространства представлены в разных системах нервных клеток. В мозге цветовая информация рассчитывается и корректируется снова и снова путем сравнения цветов всех объектов в пространстве относительно друг друга. С помощью параметров цветового тона, насыщенности и яркости мы можем воспринимать примерно 2-7 млн различных оттенков цветов. При этом наша зрительная система использует аддитивное смешение цветов, которое как физиологический процесс следует принципиально другим правилам, нежели физическое смешение.
При аддитивном смешении цветов белый цвет может возникать, к примеру, путем смешения двух дополнительных цветов и любой желаемый оттенок может быть получен при аддитивном смешении двух или трех цветов.
2. Нарушения восприятия цвета. Существуют различные «периферические» нарушения восприятия цвета. При цветовых аномалиях присутствуют все три типа рецепторов (трихроматизм), но одна из систем работает относительно слабее других (например, длинноволновой тип рецептора при протаномалии, т. е. слабом восприятии красного цвета). При неразличении цветов отсутствует один из типов рецепторов, цветное зрение при этом является дихроматическим, например при цветовой слепоте на красный цвет, называемой протанопией.
Полная цветовая слепота проявляется при наличии монохроматических палочек и отсутствии всех типов колбочек. Пациенты гиперчувствительны к дневному свету, поскольку днем они также видят с помощью высокочувствительных палочек. Генетическая информация о средне- и длинноволновых зрительных пигментах находится в Х-хромосоме. Поэтому слабое восприятие и цветовая слепота на красный и зеленый цвета встречаются значительно чаще среди мужчин, чем среди женщин.
- Рекомендуем ознакомиться далее "Нейрофизиология когнитивных зрительных функций - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 6.5.2025