

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Нейрофизиология когнитивных зрительных функций - с точки зрения физиологии человека
Оглавление статьи:- Значение высших зрительных областей
- «Что» и «где», «куда» и «зачем»?
- Анализ движений
- Распознавание объектов
- Восприятие цвета
- Эмоциональные компоненты зрения
- Центральные нарушения восприятия цвета
- Резюме
- Список использованной литературы
а) Значение высших зрительных областей. Ассоциативные и интегративные зрительные области коры головного мозга особенно сильно дифференцировались в филогенезе приматов и человека.
1. Зрительные области теменной и височной долей. Экстрастриарные зрительные области простираются на другие области коры головного мозга (рис. ниже). Сигналы из ретинотопически организованных элементарных зрительных областей затылочной доли (зоны V2, V3, V3а, V4) передаются в ассоциативные и интегративные зрительные области теменной и височной долей.
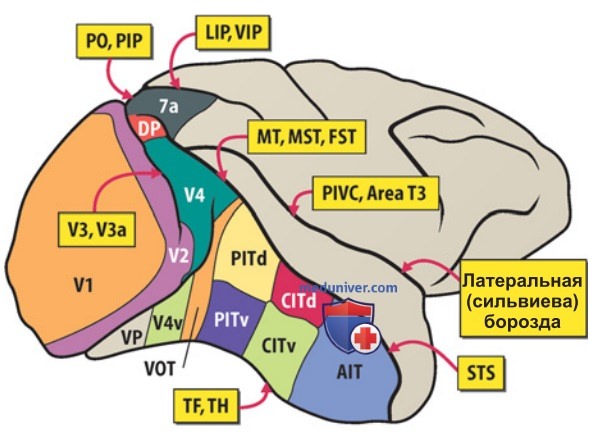
С каждым нейронным этапом обработки ретинотопическая организация становится все более «свободной», до тех пор пока отдельные рецептивные поля нервных клеток в некоторых ассоциативных и интегративных зрительных областях не займут значительные части фовеального и периферического зрительного поля.
2. Специфика ассоциативных зрительных полей. Зрительные ассоциативные поля отличаются друг от друга по цитоархитектоническому расположению кортикальных клеточных слоев, а также по метаболическим характеристикам и по распределению реакции цитохромоксидазы. Критериями разграничения зрительных полей коры головного мозга служат их связи между собой и с подкорковыми областями мозга, а также специализация нервных клеток, которые только реагируют на определенные признаки зрительного стимула.
Для понимания функции зрительных ассоциативных областей важно, что незначительная часть их аксонов проецирует в первичные и вторичные зрительные области коры головного мозга в затылочной доле, что обусловливает постоянную обратную связь и делает возможной эфферентную селекцию потока возбуждения.
P.S. Филогенетическое развитие зрительных областей. У нечеловекообразных приматов зрительные и глазодвигательные области занимают больше 60% поверхности головного мозга. За последние 2,5 млн лет в филогенезе, т. е. в развитии от Homo habilis к Homo sapiens sapiens, появились некоторые специфические для человека интегративные зрительные области и, что особенно важно, структуры, которые отвечают за визуально-конструктивные функции (живопись, рисование, черчение трехмерных объектов), пространственное планирование, сложное зрительное распознавание лиц и за восприятие многочисленных невербальных социальных признаков.
Новые связи между этими областями неокортекса и лимбической системой (парагиппокампальная извилина, гиппокамп, энторинальная кора и миндалина) участвуют в формировании зрительной памяти и эмоциональной оценке сложных визуальных признаков и визуальной эстетики.
б) «Что» и «где», «куда» и «зачем»? За узнавание объектов отвечают ассоциативные поля в нижней части височной доли, за локализацию объектов — ассоциативные области в теменной доле и в префронтальной коре мозга.
1. Параллельная обработка. На рис. 1 представлен принцип «разделения труда» различных областей коры для «высших» зрительных функций (параллельная обработка зрительного сигнала): визуальная идентификация объекта («Что это за предмет?») прежде всего является функцией ассоциативных областей нижней части височной доли. Пространственная локализация предметов и зрительная ориентация («Где находятся или в каком направлении двигаются объекты?»), напротив, являются функцией теменной и лобной ассоциативных областей.
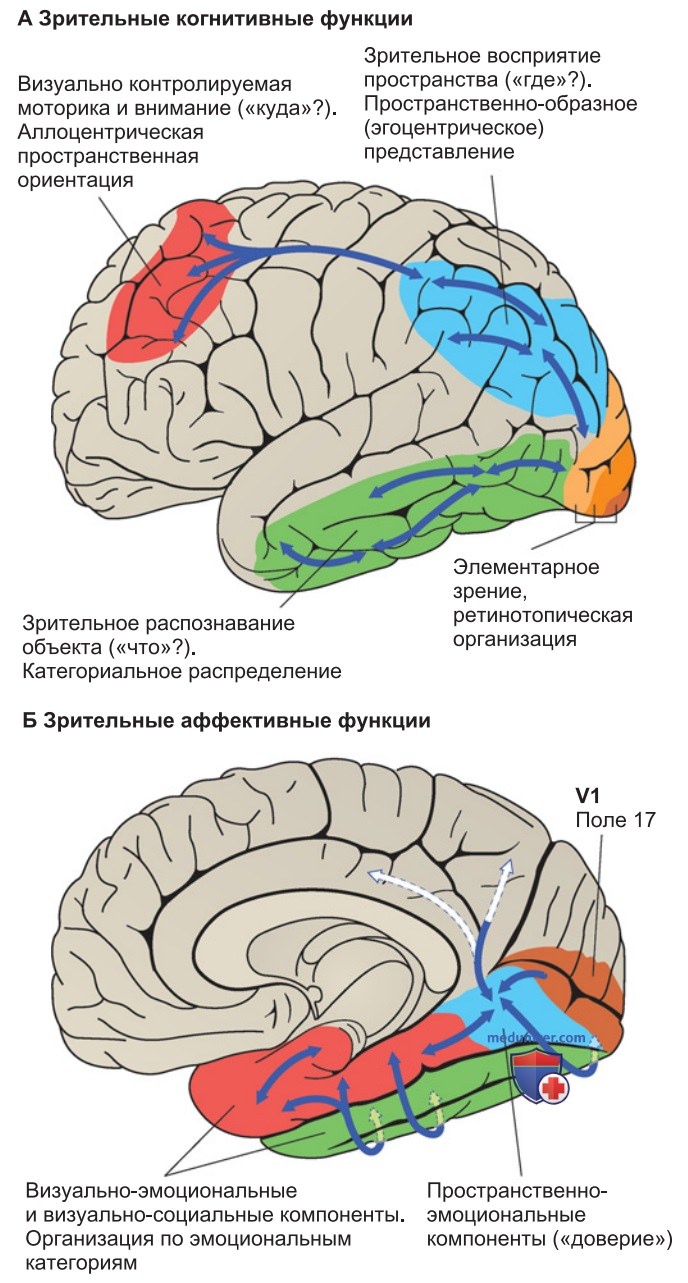
Последние осуществляют зрительный контроль произвольных движений («Куда направляется взгляд или хватательное движение?»). Наконец, эмоциональная оценка визуально воспринимаемого предмета («Для чего нужен этот предмет?») преимущественно является функцией вышеупомянутых структур лимбической системы.
2. Представление внешнего пространства. В каждое мгновение, т. е. во время каждого нового периода фиксации, объекты внешнего пространства отображаются в разных участках поля зрения, причем сдвиг изображения на сетчатке зависит от амплитуды саккад и их направления. Несмотря на сдвиги изображений на сетчатке, возникающие между периодами фиксации, мы воспринимаем внешнее пространство и его направления неподвижными. Это постоянство восприятия является преимущественно функцией нижней и задней частей теменной доли. Там зрительные сигналы сравниваются с эфферентными копиями моторных команд взора.
Многие нервные клетки теменной зоны 7 у макаки-резус возбуждаются только тогда, когда зрительные образы двигаются в определенных участках внешнего пространства в определенном направлении. Эти нейроны также часто реагируют на движения глаз и визуально контролируемые хватательные движения. Направления внешнего пространства, по-видимому, представлены в таких нейронных сетях в виде векторного изображения. Ретинотопическое отображение поля зрения заменяется при этом пространственно-образным представлением внешнего пространства, которое связано с координатами головы.
Это гарантирует постоянство восприятия направления пространства и расстояния до объектов, несмотря на сдвиг изображения на сетчатке.
в) Анализ движений. Часть ассоциативных зрительных затылочно-теменных областей коры головного мозга специализируется на обработке сигналов движущихся образов.
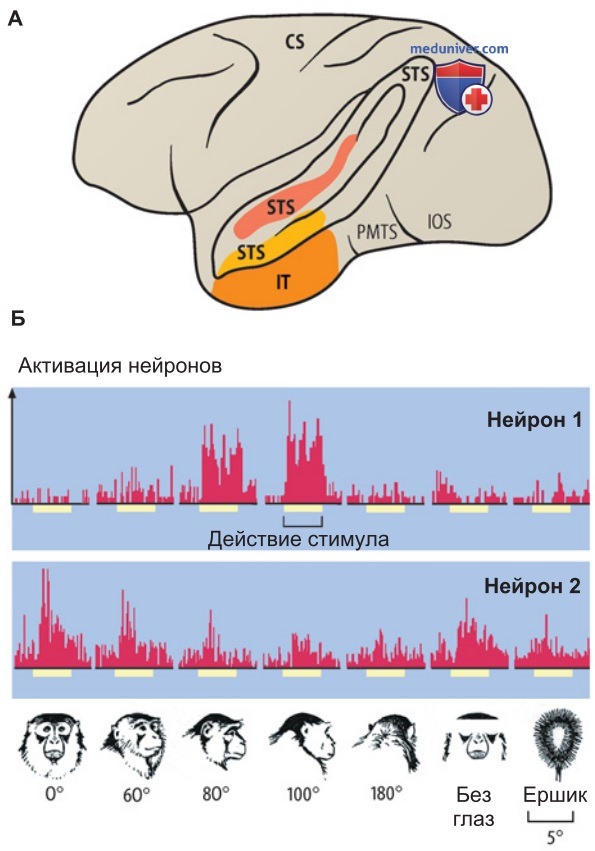
1. Локализация и связи. В коре головного мозга в области верхней теменной извилины (sulcus temporalis superior) макаки-резуса есть области коры (зоны МТ, MST, FST и AST; рис. 2), в которых многочисленные нейроны особенно сильно реагируют на подвижные зрительные стимулы специфично к направлению. Зона МТ (область V5) получает свой основной поток зрительного возбуждения от чувствительных к движению нервных клеток областей V1 (слой 4В), V2 (богатые цитохромодазой широкие полосы) и V3.
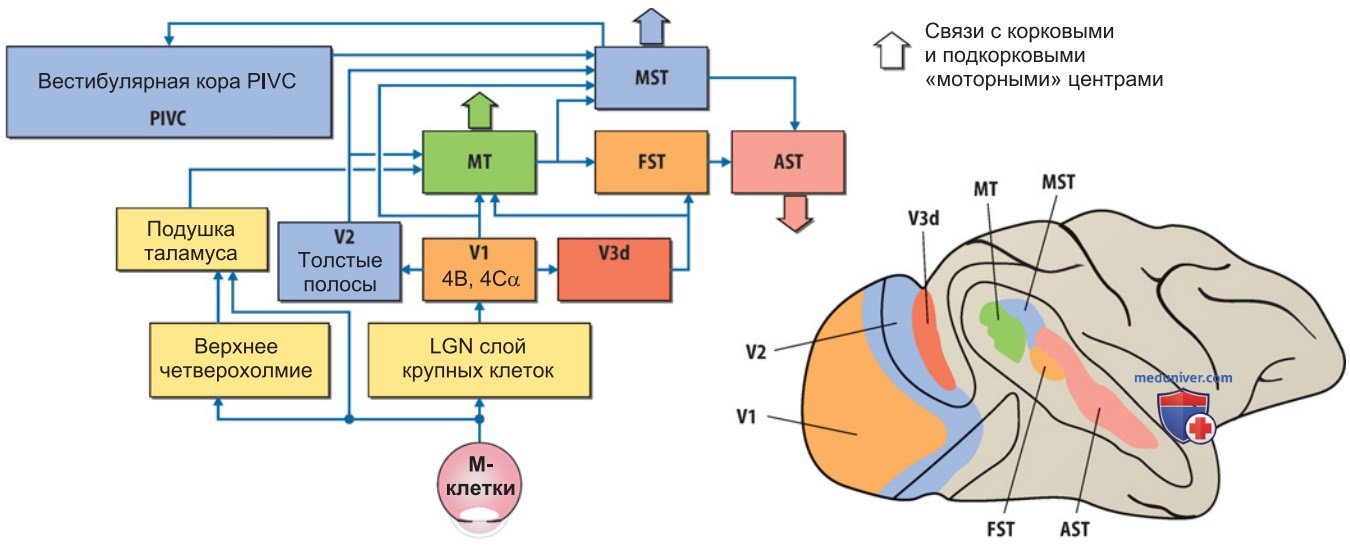
Кроме того, связи из глубоких слоев верхнего двухолмия передают глазодвигательные сигналы зоне МТ через подушку таламуса. Этот экстрастриарный зрительный тракт лежит в основе бессознательного зрительного восприятия (blindsight), которое можно обнаружить у пациентов в слепых областях поля зрения.
P.S. Геминеглект. У человека наряду с зоной 7 за восприятие пространства отвечает прежде всего верхняя часть теменной области. Если пациент страдает от одностороннего повреждения мозга в этой области, то он не воспринимает сигналы в контралатеральной повреждению половине окружающего пространства. Этот зрительный геминеглект при повреждениях в области правой теменной доли выражен сильнее, чем в области левой. У человека правая половина коры головного мозга важнее для пространственной ориентации, чем левая, в которой доминируют интегративные области, связанные с языковыми функциями.
Зрительный геминеглект относится не только к окружающему пространству, но и к отдельным объектам. От каждого объекта воспринимается только одна сторона. Изображения воспринимаются так, будто присутствует только правая или левая половина объекта. Пациенты с пространственным геминеглектом считают свой видимый мир полноценным, хотя объективно они воспринимают только часть предмета. Пациенты мужского пола, например, во время бритья не замечают отсутствия левой половины лица в зеркале. Они бреют только ту половину лица, которая ипсилатеральна месту повреждения мозга.
Художник в автопортрете не рисует контралатеральную по отношению к повреждению мозга сторону или рисует ее очень смутно, однако считает портрет полноценным.
2. Функциональная специфичность. Многие нейроны зоны МТ предпочтительно реагируют на небольшие подвижные объекты, двигающиеся на неподвижном фоне. По-видимому, зона МТ контролирует и следящие движения глаз. Об этом также свидетельствуют проекции Т и МSТ в мостовой центр взора и в ядро зрительного тракта в стволе мозга (NОТ; рис. ниже). Нервные клетки зон МSТ и FST предпочтительно активируются крупными подвижными зрительными стимулами, например теми, которые используются для запуска оптокинетического нистагма (рис. ниже). Крупный подвижный стимул возникает на сетчатке и при активных движениях тела или головы.
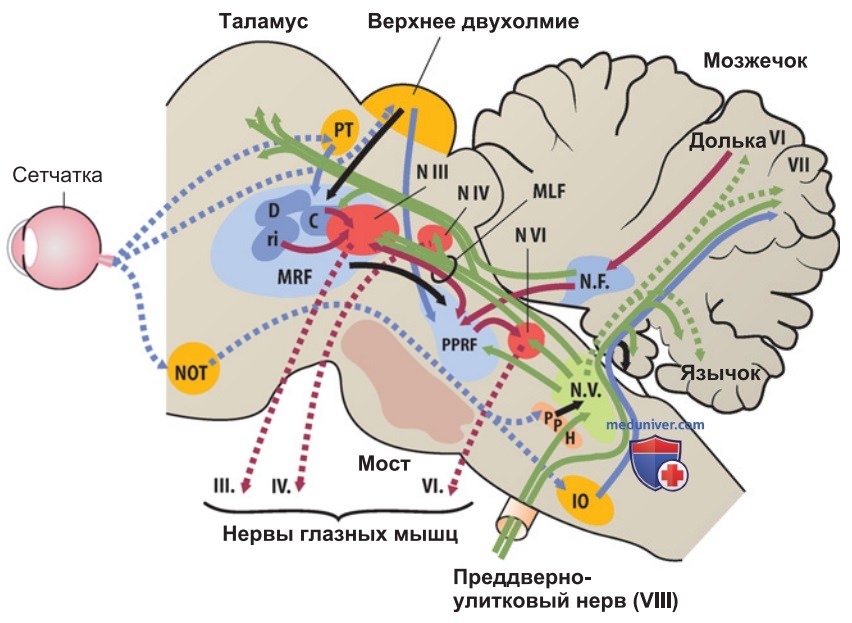
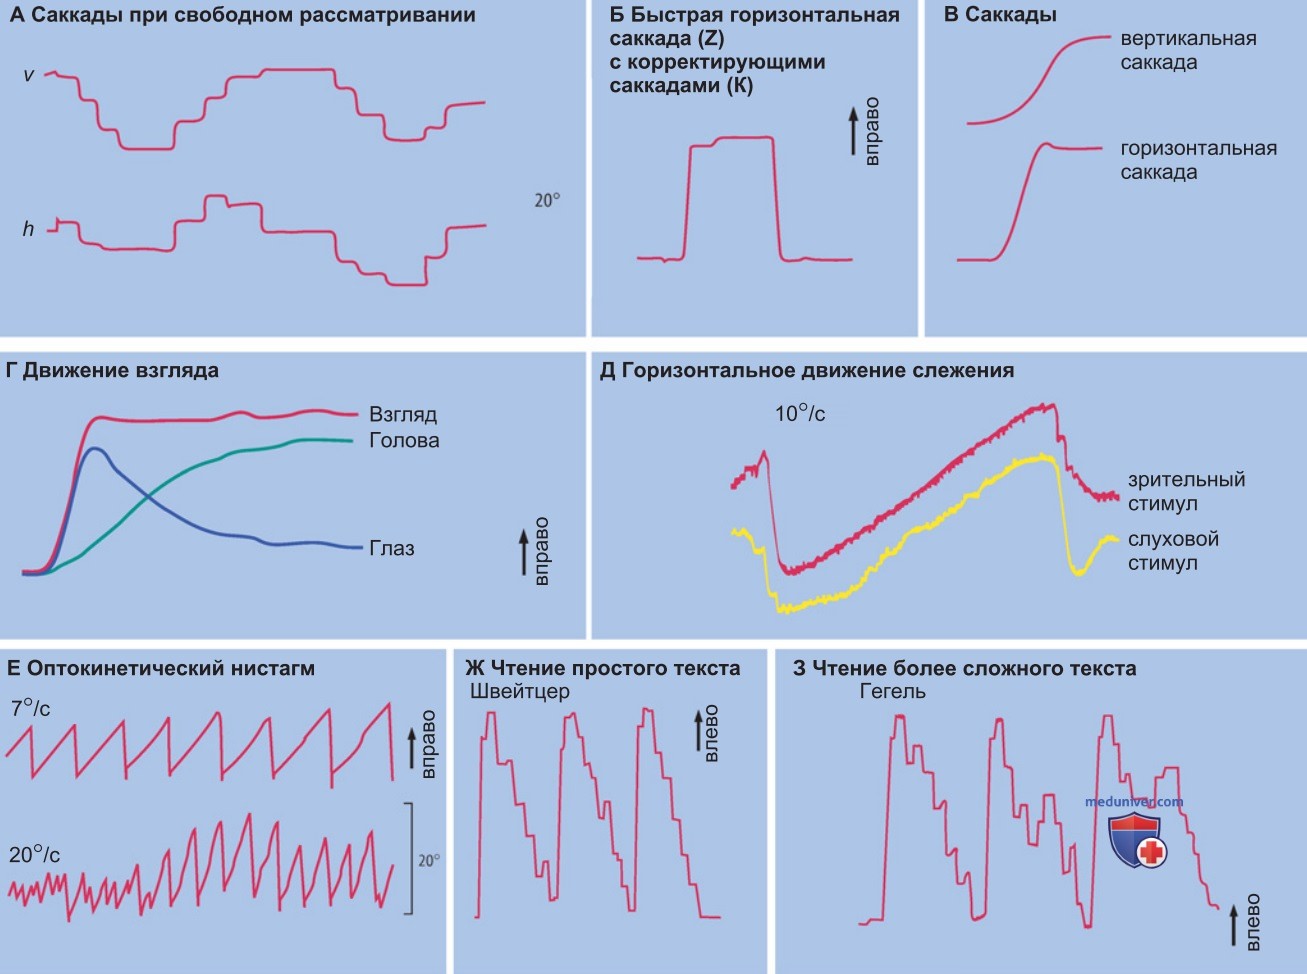
В этом случае часть нервных клеток в зонах МSТ и FST также активируется такими подвижными стимулами, если они отслеживаются взглядом и их изображение на сетчатке остается стабильным. Между зоной МSТ и вестибулярными областями коры головного мозга, которые необходимы для восприятия движений головы в пространстве, существуют двусторонние нейронные связи. Части зоны АST (anterior superior temporal) получают мультимодальные зрительные, слуховые и соматосенсорные входы (рис. 3).
P.S. Акинетопсия, агнозия движения. У пациентов, страдающих от описанных двусторонних повреждений зон МТ и МSТ, ухудшена способность воспринимать движения в окружающем пространстве (акинетопсия, агнозия движения). Пациенты также сообщают о снижении стабильности видимого мира при самостоятельных движениях, что указывает на нарушение «расчета» между сигналами эфферентных копий моторных команд взора и тела и афферентными зрительными сигналами о движении.
P.S. Расположение МТ и MST у человека. У человека зоны MT (V5) и MST расположены в переходной области между затылочной и теменной долями в коре головного мозга. Увеличение регионального церебрального кровотока в этих областях при зрительной стимуляции движущимся раздражителем указывает на увеличение нейронной активности. Блокада этой области посредством транскраниальной магнитной стимуляции коры головного мозга прерывает восприятие движений.
г) Распознавание объектов. В нижней части височной доли имеются обширные ассоциативные зрительные области, которые участвуют в распознавании объектов.
1. Нейронная специфичность. Интегративные зрительные области (зоны PIT, CIT и AIT; рис. выше) в нижней части височной доли (IT; рис. 3) приматов функционально подразделяются на небольшие блочные зоны. Тысячи нервных клеток в небольшом блоке реагируют относительно едино на определенные компоненты формы (сложные углы, звездчатые структуры, цветные полосы, контуры определенных кривых и формирующие контуры множественные контрасты), а также на элементарные формы, наподобие лица или рук.
Активный процесс распознавания объектов соответствует когерентной активации обширных нейронных сетей из нервных клеток, каждая из которых представляет различные элементарные визуальные свойства видимого объекта. Эти реакции подвержены также влиянию процессов обучения, т. е. предшествующего опыта распознавания видимых объектов. Нижняя часть височной доли поэтому является структурой, в которой осуществляется распознавание объекта в контексте предшествующего зрительного опыта.
P.S. Агнозия объекта. У человека области, отвечающие за зрительное распознавание объекта, расположены в нижней части затылочно-височной переходной области и в задней части височной доли. Двусторонние повреждения в этих областях приводят к зрительной агнозии объекта: пациент распознает положение объекта в пространстве, но не идентифицирует сам объект, как стул, стол, кружку или сложный аппарат. Пациенты не могут узнавать объекты только зрительно, тактильное или слуховое узнавание объекта, как правило, возможно.
2. Узнавание лиц. Особенно важным классом зрительных сигналов являются лица себе подобных, поскольку они позволяют наиболее просто идентифицировать друг друга. Мимика и жесты представляют собой важные компоненты невербальной визуальной коммуникации. У человека и, вероятно, у других высших приматов должна быть изучена большая часть этих функций. Визуальное распознавание социальных сигналов, таких как выражение лица, мимические движения или жесты, осуществляется специализированной нейронной сетью нижней части височной доли (рис. 3). Клетки избирательно реагируют на лица или мимические движения (рис. 3).
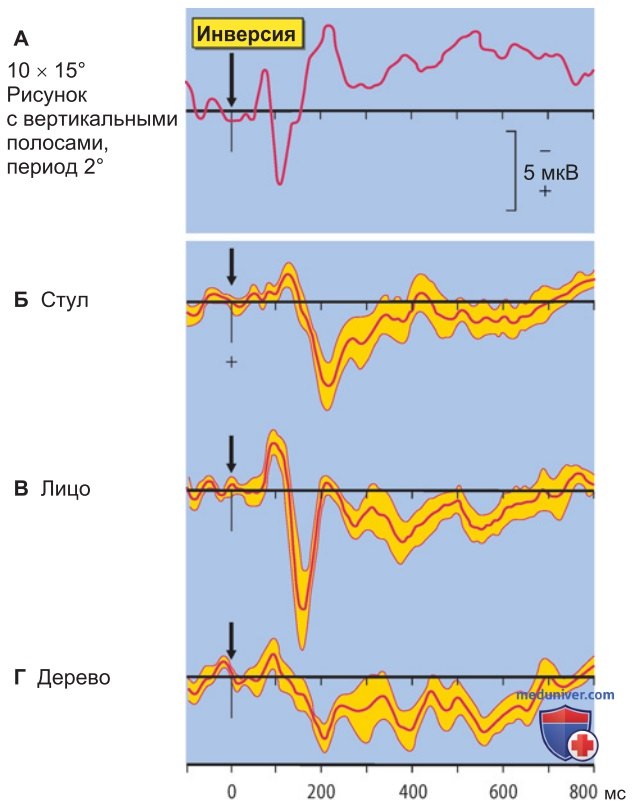
У макаки-резус были обнаружены нервные клетки, которые лучше реагировали на человеческие лица, чем на лица обезьян, и в частности сильнее на лица людей, которые были знакомы животным, чем на незнакомые лица. В электроэнцефалограмме человека могут регистрироваться связанные с событиями потенциалы, содержащие компоненты, которые можно рассматривать как специфические для лица (рис. ниже).
P.S. Прозопагнозия. В человеческом мозге сигналы, необходимые для невербальной социальной коммуникации, из нижней части височной доли проводятся в веретеновидную извилину, расположенную на медиальной поверхности мозга в височно-затылочной переходной области, и в относящуюся к лимбической системе парагиппокампальной извилине. Если пациент страдает от двустороннего повреждения этих областей мозга в мезиальной височно-затылочной переходной области, то возникает прозопагнозия: пациент все еще может распознавать лица как комбинацию глаз, носа, рта и ушей, однако не может отличить людей друг от друга.
Все лица кажутся ему похожими, их индивидуальность для него отсутствует. Пациент узнает ранее знакомого ему человека по голосу. В зависимости от степени поражения прозопагнозия может включать нарушение понимания мимики и жестов других. Пациенты, страдающие от прозопагнозии, иногда испытывают странное изменение восприятия лиц других людей, которые видятся им совершенно искаженными или измененными.
3. Чтение. Чтение, специфичная для человека высшая зрительная функция мозга, может быть нарушено описанными выше повреждениями. Поскольку чтение в узком смысле относится к изобретениям ранней ступени человеческой культуры, но не старше 6000 лет (протошумерская клинопись), следует предположить, что чтение и письмо задействовали те области мозга, которые филогенетически оказались намного старше и служили нашим неграмотным предшественникам для других целей.
Когнитивной функцией, связанной с чтением, является визуальное распознавание объектов pars pro toto (как части вместо целого), т. е. способность из части выводить целый предмет. Это узнавание части вместо целого играло у людей важную роль на ранних ступенях развития культуры при распознавании природных символов, например чтении следов или визуальной оценке съедобности фруктов.
P.S. Расстройства чтения. После повреждения во внутренней области левой угловой извилины пациенты больше не могут читать слова (вербальная алексия) или даже распознавать буквы (литеральная алексия). При чистой алексии пациент все еще может писать, однако не способен прочитать написанное им самим (алексия без аграфии). Если повреждение мозга затрагивает угловую или огибающую извилину, то алексия, как правило, сопровождается неспособностью писать (аграфия). Повреждение в области премоторной коры головного мозга в левой лобной доле может выборочно приводить к аграфии без алексии.
Способность читать идеографическое письмо (например, китайские иероглифы или кандзи в японском языке) незначительно затрагивается при описанном повреждении левой угловой извилины. Алексия для этих типов письменности возникает при повреждении правой угловой извилины. Такое наблюдение указывает на то, что эти специфичные для человека функции неокортекса в значительной степени зависят от обучения в детстве и подростковом возрасте.
Способность к чтению и письму также нарушена при различных видах афазий. Однако в этом случае алексия обусловлена не нарушением зрительно-когнитивных механизмов, а нарушением понимания речи в более узком смысле.
5. Кортикальная локализация. С помощью измерения регионального церебрального кровотока можно было бы показать, что при чтении происходит особенно сильная активация в области угловой извилины (gyrus angularis) и огибающей извилины (gyrus cicumflexus) в левом полушарии мозга.
д) Восприятие цвета. В веретеновидной извилине (gyrus fusiformis) затылочной коры человека, гомологичной области V4 мозга обезьяны, в большом количестве локализованы цветоспецифичные нервные клетки.
1. Цветоспецифичная зона V4. Предположительно, цветовое пространство представлено в паттернах возбуждения нейронов экстрастриарной зрительной зоны V4, где находятся многие цветоспецифичные клетки, реакции которых указывают и на описанное в отдельной статье на сайте (просим Вас пользоваться формой поиска по сайту выше) постоянство восприятия цвета. Цветоспецифичные клетки могут интегрировать реакции двойных нейронов противоположных цветов на широких областях поля зрения и, таким образом, обеспечивают независимость цветового восприятия от изменения условий освещения во всем поле зрения.
Повреждение зоны V4 у макаки-резус приводит к потере цветового постоянства при сохранении способности различать свет различных длин волн. Часть нервных клеток в зоне V4 макаки-резус очень специфично реагирует на небольшую часть цветового пространства или на определенные цветные контуры. Зона V4 выполняет важную функцию при восприятии объекта, используя характерные для определенных объектов цвета.
2. Расположение V4 у человека. Область коры головного мозга человека, гомологичная зоне V4 коры головного мозга макаки-резус, расположена на медиальной затылочной поверхности в области фузиформной извилины (gyrus fusiformis), которая снабжается ветвями задней мозговой артерии. Область фузиформной извилины, важная для восприятия цветов поверхностей, связана с левой угловой извилиной (обозначение цветов) и с лимбической системой через парагиппокампальную извилину (эмоциональное значение цветов).
е) Эмоциональные компоненты зрения. Эмоциональные компоненты зрительного восприятия преимущественно связаны с функциями структур лимбической системы.
1. Зрение и эмоции. Как почти все ощущения и восприятия, визуальная среда тоже влияет на наше мгновенное настроение. Социальное поведение человека управляется невербальными сигналами (распознавание мимики и жестов). Некоторые зрительные образы (например, эротические сигналы, схема детского лица) часто напрямую вызывают эмоциональные реакции. То же самое касается зрительного восприятия пищи и напитков. У голодного человека при рассматривании пищи текут слюнки. Даже стимулирующее аппетит действие красиво оформленного и сервированного стола указывает на сопутствующую эмоциональную реакцию зрительного восприятия.
P.S. Эмоциональное значение пространства. Влияние пространства на субъективное настроение тоже указывает на визуально-эмоциональную связь: чувство угрозы при прохождении через узкий овраг (а также через образованные многоэтажными домами «ущелья» в больших городах) или головокружение при нахождении на большой высоте у многих людей связаны с чувством страха. У некоторых людей ощущение страха обусловлено большими открытыми пространствами (агорафобия), у других, напротив, очень тесные пространства вызывают симптомы клаустрафобии.
ж) Центральные нарушения восприятия цвета. Повреждения затылочной коры головного мозга приводят к нарушениям цветного зрения, которые связаны с полем зрения; при повреждениях теменной доли коры мозга, напротив, происходят изменения в категориальном порядке восприятия цветов. Изолированное нарушение в области веретеновидной извилины при окклюзии определенных ветвей задней мозговой артерии приводит к кортикальной гемиахроматопсии: контралатеральная повреждению половина поля зрения воспринимается только в черно-белых тонах, тогда как в ипсилатеральной половине сохраняется цветное зрение.
Двустороннее повреждение вызывает кортикальную ахроматопсию. Пациенты видят весь мир только в серых тонах. Согласно сказанному выше, зачастую они страдают и от прозопагнозии.
Зона V4 человека связана с угловой извилиной левой половины мозга. Пациенты с повреждениями этих связей или угловой извилины с трудом соотносят друг с другом цвета и объекты. Нарушается категориальный порядок цветового пространства, и нередко утрачиваются правильные наименования цветов (цветовая аномалия). У этих пациентов нельзя выявить ни одно из вышеописанных «периферических» нарушений цветового восприятия. Они, например, правильно настраивают уравнения смешения цветов в аномалоскопе. Тем не менее такие люди страдают от тяжелого нарушения узнавания цветов и соотнесения объектов с типичными для них цветами (помидор красный, банан желтый).
1. Нейронные связи. Эмоциональные компоненты зрительного восприятия опосредуются нейронными связями между ассоциативными и интегративными зрительными областями и структурами лимбической системы. В таких лимбических структурах, как миндалина, гиппокамп и энторинальная кора, обрабатываются зрительные сигналы, служащие для социальной координации, потребления пищи и ее распознавания, пространственного мышления, а также общей зрительной памяти (рис. 1).
з) Резюме. Нейрофизиологические основы когнитивных зрительных функций. Около 60% площади коры головного мозга занято зрительными и глазодвигательными полями, высшие зрительные области расположены в затылочной и нижней височной коре. Высшие зрительные функции осуществляются различными областями коры по принципу разделения труда: в специализированных зонах происходит параллельная обработка распознавания пространства, движений и объектов.
Анализ пространства и движений осуществляется в основном в теменных зрительных и глазодвигательных зонах. Здесь формируется ответ на вопрос «Где?» и обрабатывается зрительная информация для выполнения целенаправленных действий. Внешнее пространство представлено в затылочной коре. Специфическое восприятие движения осуществляется затылочно-теменными областями коры головного мозга МТ/V5, MST и FST Эти области связаны с центрами моторики взора в стволе мозга для сознательного управления произвольными движениями глаз, а также проецируют в области, которые участвуют в подготовке движений рук.
Распознавание объектов у человека и других высших приматов осуществляется в затылочно-теменной переходной области и в нижней части затылочной доли. Здесь на первом плане стоит восприятие и формируется ответ на вопрос «Что?». Специфическое узнавание лиц происходит в нижней части височной доли (фузиформная и парагиппокампальная извилины) и в лимбических структурах мозга. Идентификацию абстрактных зрительных символов при чтении осуществляет угловая извилина. Левая угловая извилина отвечает за алфавитные письменные системы, правая — за идеографические письменные системы (например, китайские иероглифы).
Соотнесение цветов с объектами обусловлено связями зоны V4 с угловой извилиной в затылочно-теменной переходной области. Нейронные механизмы этих областей в значительной степени зависят от процессов обучения, и обработка в конечном счете приводит к областям, которые занимаются процессами обучения и памяти (энторинальная кора, парагиппокампальные и гиппокампальные структуры, лимбическая система). Здесь мы также обнаруживаем связи для эмоциональных компонентов зрения (схема детского лица и др.).
- Рекомендуем ознакомиться далее "Строение органов вкуса - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 6.5.2025