

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Распознавание запахов и его нейрофизиологические основы - с точки зрения физиологии человека
Оглавление статьи:- Классы запахов
- Трансдукция сигнала
- Электрические сигналы клеток
- Резюме
- Список использованной литературы
а) Классы запахов. На основе различных критериев запахи можно разделить на классы; их различение в большинстве случаев является функцией центральной нервной системы.
1. Свойства запахов. Человек может различить около 10 000 запахов. Однако существует чрезвычайный дефицит названий запахов в языке. До сих пор не удавалось приемлемо разграничить классы запахов друг от друга ни с помощью физиологических или биохимических, ни с помощью психофизических методов.
2. Классы запахов. На сегодняшний день действует предложенная в 1952 г. Эймуром схема 7 типичных классов запахов: цветочный, эфирный, мускусный, камфарный, каприловый, гнилостный, едкий (табл. 3). Все природные запахи — это ароматические смеси, в которых имеются характерные «ведущие ароматы» (например, для цветочного запаха это гераниол).
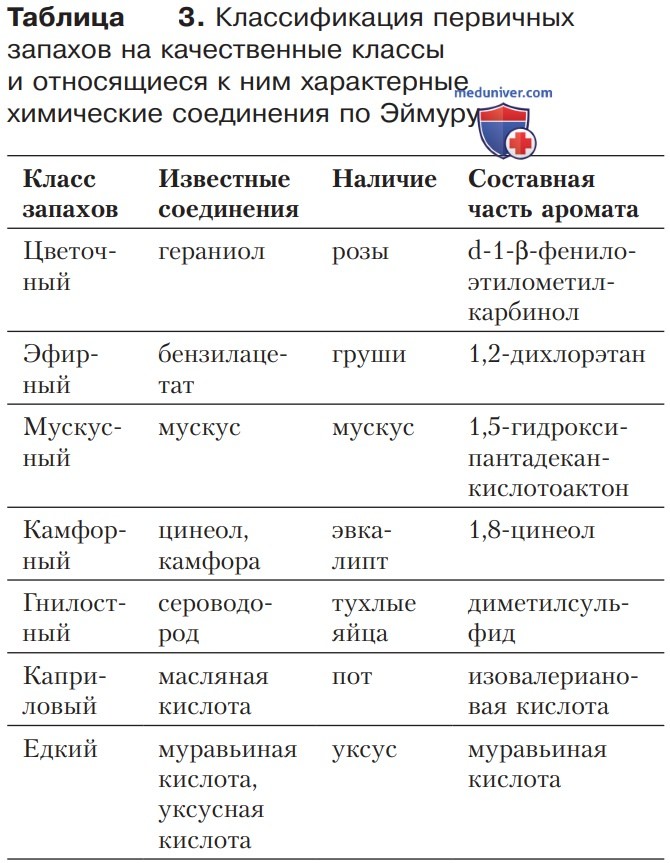
3. Перекрестная адаптация. Перекрестная адаптация представляет собой еще одну возможность для классификации. Все мы знаем, что через определенное время запах в комнате (например, сигаретного дыма) больше не ощущается. Обонятельная система адаптируется. Этот процесс основывается на периферических (рецепторный уровень) и центральных (митральные клетки, кора) механизмах.
В каждом случае адаптация ограничивается определенной воспроизводимой группой запахов. Если вы привыкаете к сигаретному дыму, то несмотря на это сможете все-таки ощутить аромат кофе. Благодаря исследованиям перекрестной адаптации удалось выделить десять различных классов запахов, которые частично пересекаются с теми, что описал Эймур.
4. Аносмии. В третьем подходе, больше подходящем для клинических исследований, используется тот факт, что у человека есть врожденное нарушение восприятия определенных групп запахов (частичные аносмии). По всей видимости, у этих людей нет рецепторных молекул для распознавания таких запахов. На сегодняшний день описаны семь различных типов аносмий (табл. 4).
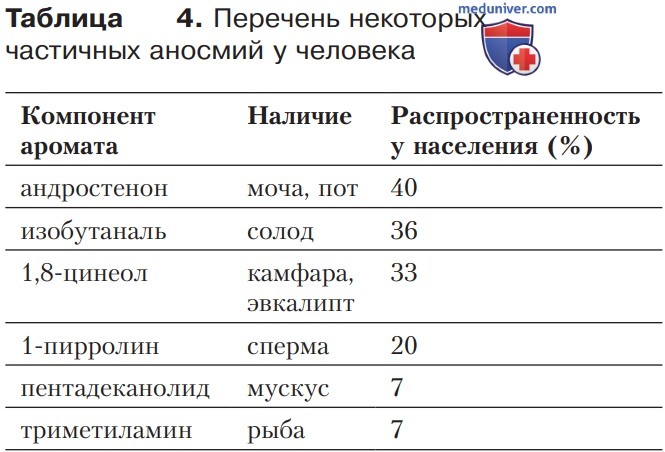
Все описанные подходы указывают на существование примерно десяти возможных классов запахов. Однако точно на этот вопрос ответит только функциональная характеристика всех 350 типов обонятельных рецепторов человека.
P.S. Нарушение обоняния:
- Формы протекания. Говоря о нарушениях обоняния, можно выделить различные по тяжести формы:
• аносмия характеризуется абсолютной утратой обоняния;
• частичной аносмией называется утрата восприятия некоторых классов запахов;
• гипосмия — ослабление обонятельных ощущений.
- Причина. Нередко частичные нарушения обоняния генетически обусловлены, причем обычно причиной являются дефекты рецепторных белков, реже нарушения центральных механизмов. Врожденная абсолютная аносмия — очень редкое заболевание. Чаще всего оно описывается при синдроме Кальмана, а также при синдроме Тернера (ХО). Большинство нарушений обоняния связано с нарушением респираторной функции или проведения сигнала.
Наряду с гриппозными гипосмиями и аносмиями сюда относятся инородные тела в носу, опухоли, полипы и фармакохимические и промышленные загрязнители (соединения свинца, цианида и хлора). Нарушения обоняния, причина которых находится в центральных структурах, обычно обусловлены травматическими, дегенеративными или органическими процессами в мозге. Важную роль здесь играют тяжелые черепно-мозговые травмы, а также субдуральные кровоизлияния и опухоли передней части черепа.
При некоторых видах шизофрении и эпилепсии встречаются обонятельные галлюцинации, а ранним симптомом нейродегенеративных заболеваний, таких как болезнь Альцгеймера или Паркинсона, служит выраженная гипосмия.
б) Трансдукция сигнала. В трансдукции химического стимула (запаха) в электрический сигнал клетки принимают участие системы вторичных посредников (например, цАМФ).
1. Человеческие обонятельные рецепторы. Все молекулы, принимающие участие в процессе трансдукции, а именно молекула рецептора, G-белок и ионный канал в настоящий момент выделены и секвенированы. Для рецепторных белков существует семейство генов, включающее примерно 350 членов (предположительно, самая крупная группа в человеческом геноме), которые обычно расположены кластерами на всех хромосомах (кроме хромосомы 20 и хромосомы Y).
Они очень похожи друг на друга по своей молекулярной структуре и принадлежат к суперсемейству рецепторов, связанных с G-белками (β-адренергические рецепторы, родопсин, М-холинорецепторы). Все рецепторы данной группы имеют семь трансмембранных доменов (рис. 1). Каждая обонятельная клетка экспрессирует, предположительно, лишь один или несколько типов рецепторных белков, так что среди обонятельных сенсорных клеток есть примерно 350 групп с разной специализацией (рис. 1).
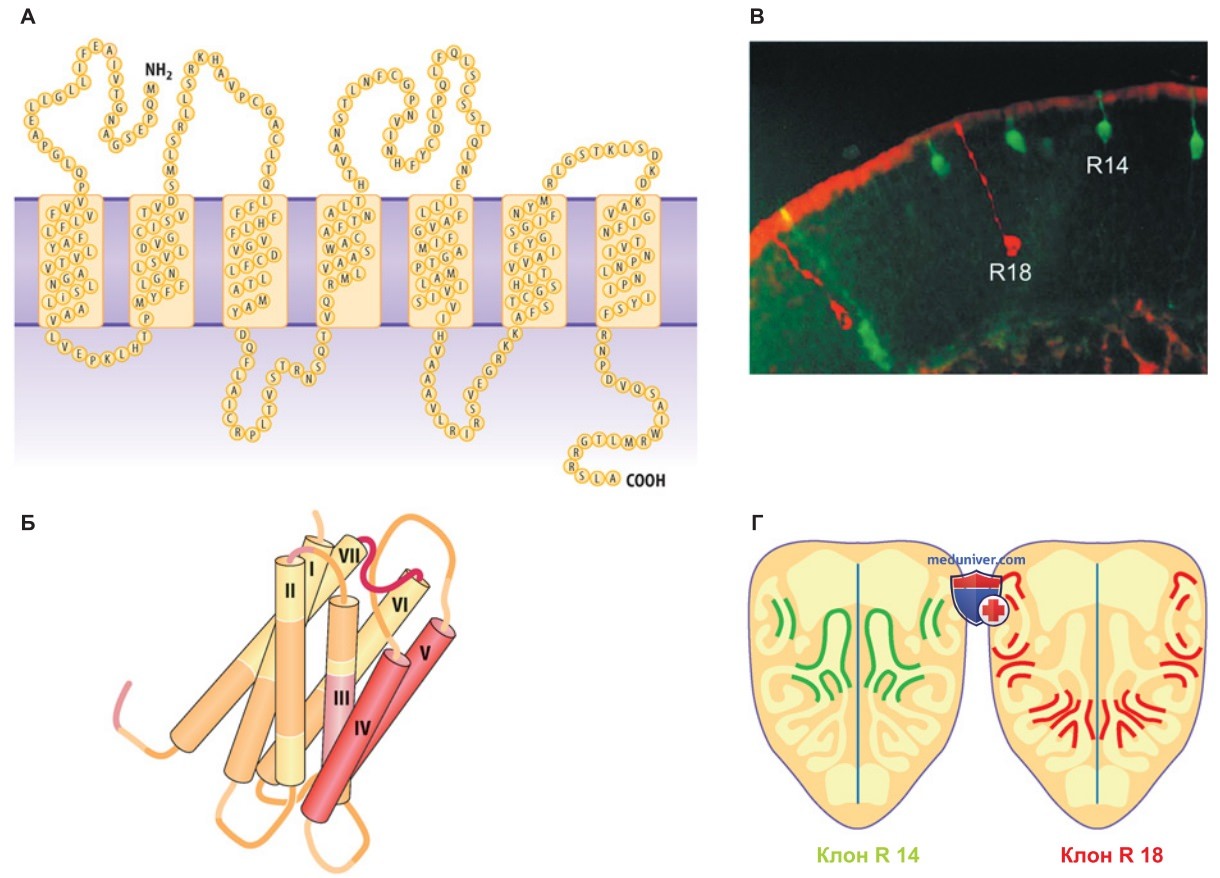
С помощью техники гибридизации in situ было доказано такое расположение специфических рецепторных нейронов в четырех зонах экспрессии — симметрично для обеих сторон носа (рис. 1). Это основа хемотопии обонятельной системы.
2. Трансдукция сигнала. Контакт между ароматическим веществом и рецептором активирует внутриклеточный механизм усиления сигнала (каскад вторичных посредников) (рис. 2). Биохимические исследования показали, что связывание обусловливающей запах молекулы со специфическим рецептором активирует Golf-протеин и, в свою очередь, фермент аденилатциклазу. Это приводит к тому, что концентрация цАМФ в клетке быстро растет и затем снова снижается.
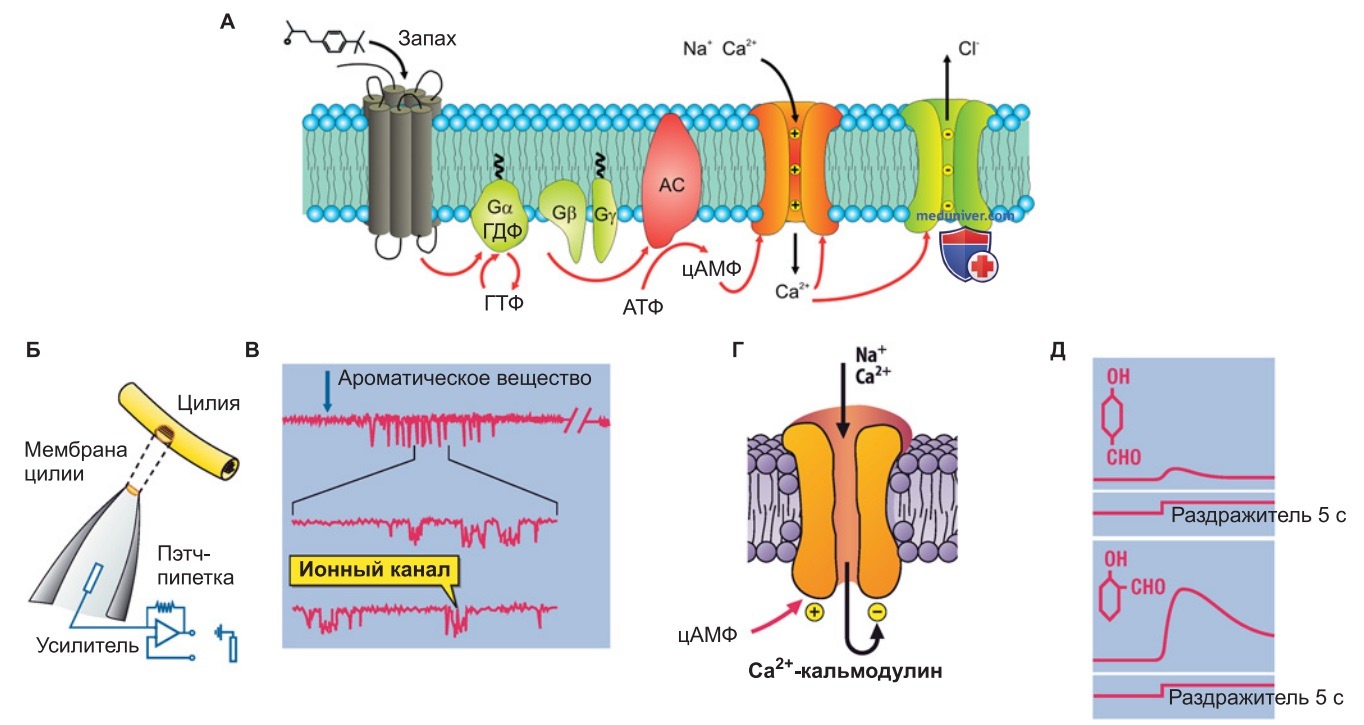
С помощью техники пэтч-кламп (patch clamp) стало возможно извлечь из очень тонких структур, например ресничек обонятельных рецепторов (<0,5 мкм), маленькие участки мембраны (рис. 2). Эксперименты показали при этом, что с цитозольной стороны клеточной мембраны можно с помощью цАМФ напрямую открыть ионные каналы, проницаемые для одно- и двухвалентных катионов (рис. 2). Они принадлежат к подгруппе ионных CNG-каналов, активируемых циклическими нуклеотидами (цАМФ/цГМФ).
Активация единственного рецептора ароматической молекулой может привести к образованию 1000-2000 молекул цАМФ и открыванию соответствующего числа ионных каналов. Это объясняет существование очень низких пороговых концентраций для определенных ароматических веществ. Входящие в клетку катионы (Na+, Ca2+) деполяризуют клетку, что приводит к генерации рецепторного потенциала.
Входящий в клетку Са2+ может дополнительно активировать Са2+-зависимые хлорные каналы (ТМЕМ16b) и благодаря увеличению выхода ионов Cl- из клетки способствовать усилению ее возбуждения. При переходе к аксону эти локальные потенциалы приводят к увеличению частоты генерации потенциалов действия.
P.S. Адаптация. Для CNG-каналов была обнаружена функционально важная чувствительность к кальцию. Чем меньше ионов кальция на внутренней стороне мембраны, тем выше вероятность открывания канала. Поскольку канал проницаем для Са2+, через некоторое время после его открывания повышается внутриклеточная концентрация кальция, что при содействии кальмодулина приводит к закрыванию канала (рис. 2). Данный процесс способствует адаптации на клеточном уровне.
в) Электрические сигналы клеток. Реакции сенсорных клеток на обонятельные стимулы можно зарегистрировать даже на молекулярном уровне с помощью электрофизиологических методов.
1. Электрофизиологические методы (электроольфактограмма, регистрация рецепторных потенциалов и потенциалов действия) позволяют регистрировать реакцию сенсорных клеток на обонятельные стимулы. Амплитуда клеточного потенциала или частота генерации потенциалов действия зависит от раздражающего вещества и его концентрации (рис. 2). В зависимости от типа ароматического вещества клетка может реагировать увеличением частоты импульсов или снижением уровня спонтанной разрядки.
Уже в течение долгого времени известен метод регистрации суммарного возбуждения крупных областей слизистой оболочки носовой полости у позвоночных, электроольфактограмма (ЭОЛГ). Технически она эквивалентна ЭЭГ и аналогичным методам. ЭОЛГ позволяет зарегистрировать увеличение амплитуды клеточного ответа после предъявления ароматического вещества. При увеличении интенсивности стимула амплитуда ответа линейно повышается. При этом равные концентрации веществ со сходной молекулярной структурой могут вызывать ответы разной амплитуды.
1. Классы запахов. Разделение тысяч различных известных запахов на классы принято осуществлять произвольно на основе имеющихся у нас знаний о схожести запахов, аносмии и перекрестной адаптации. На сегодняшний день выделяют семь основных классов запахов; молекулярная основа для этого выделения до сих пор неизвестна.
2. Обонятельные рецепторы у человека кодируются семейством генов, состоящим из 350 членов, весьма схожих по молекулярной структуре. Это количество позволяет нам охватить весь спектр запахов. Рецепторы, специфичные для своего класса пахучих веществ, распределяются в эпителии носа по нескольким зонам экспрессии, что отчасти лежит в основе хемотопии обонятельной системы.
3. Трансдукция сигнала. Трансдукция сигнала осуществляется путем повышения концентрации цАМФ в клетке; цАМФ способен напрямую открывать канал, через который катионы (Na+ и Са2+) могут проникать в клетку. При участии Са2+-зависимого хлорного канала это приводит к возбуждению клетки.
Данный внутриклеточный механизм усиления сигнала объясняет, как при очень низкой предельной концентрации какого-либо вещества возможно обнаружить запах.
Видео причины нарушения вкуса и обоняния при вирусных инфекциях, профессор С.В. Савельев, 2021 год
- Рекомендуем ознакомиться далее "Функционально важные качества обоняния - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 6.5.2025