

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Спинальные рефлексы - с точки зрения физиологии человека
Оглавление статьи:Тот, кто наблюдает за целеустремленными грациозными движениями прыгающей кошки или за беглостью пальцев пианиста-виртуоза, мало задумывается о том, что механизмы, обеспечивающие точную моторику, основаны на взаимодействиях отдельных нейронов.
Более наглядной работа этих механизмов становится при возникновении патологических образований или повреждений в нервной системе, местоположение которых может быть установлено при помощи образной диагностики, а внешне могут быть распознаны нарушения тех движений, за осуществление которых в норме отвечают пораженные структуры.
Даже несмотря на то, что благодаря разрешающим способностям электрофизиологии и самой современной функциональной томографии уже можно изучать моторные и когнитивные процессы у здоровых людей, пониманием функций отдельных компонентов моторной системы и того, как они согласуются, мы, все же, обязаны преимущественно патофизиологии.
Многие представления о функции участвующих в моторике структур головного мозга еще не сформированы окончательно. До тех пор пока не удастся продемонстрировать наглядную причинно-следственную связь, некоторые положения неизбежно останутся неподтвержденными.
а) Функции и компоненты простых рефлексов. Рефлекс — целенаправленная реакция на определенный раздражитель, проходящая при стабильных условиях. Рефлексы служат для поддержания позы или совершения действия. Рефлекторный центр спинномозговых (спинальных) рефлексов находится в спинном мозге.
1. Определение. Спинальные рефлексы являются безусловными и в отличие от приобретенных условных рефлексов генетически предопределены. Сегментарная рефлекторная дуга состоит из одного или нескольких типов рецепторов (сенсоров), афферентного звена (чувствительных волокон, идущих к ЦНС), рефлекторного центра (вставочных нейронов и участков двигательных нейронов) и эфферентного звена, передающего сигнал к эффектору (исполнительному органу, функционирование которого изменяется в результате рефлекса).
2. Количество вставочных нейронов может сильно варьировать; только при осуществлении моносинаптического рефлекса растяжения афферентное звено непосредственно соединяется с эфферентным звеном. Длительность латентного периода рефлекса зависит от расстояния, по которому нужно провести сигнал от афферентного звена до эфферентного, количества насчитывающихся в них синапсов и числа вставочных нейронов в рефлекторном центре.
Спинальные рефлексы служат для регулирования и стабилизации длины и силы сокращения мышц.
б) Сенсоры спинальной моторики. Мышечные веретена и сухожильные органы являются механорецепторами мышцы. Они измеряют растяжение, степень сокращения и напряжение мышцы.
1. Строение мышечного веретена. В каждой мышце находится некоторое количество мышечных волокон, которые тоньше и короче по сравнению с обычными мышечными волокнами. Часть из них собраны вместе и окружены соединительнотканной капсулой. Эта структура благодаря своей форме называется мышечным веретеном (рис. 1).
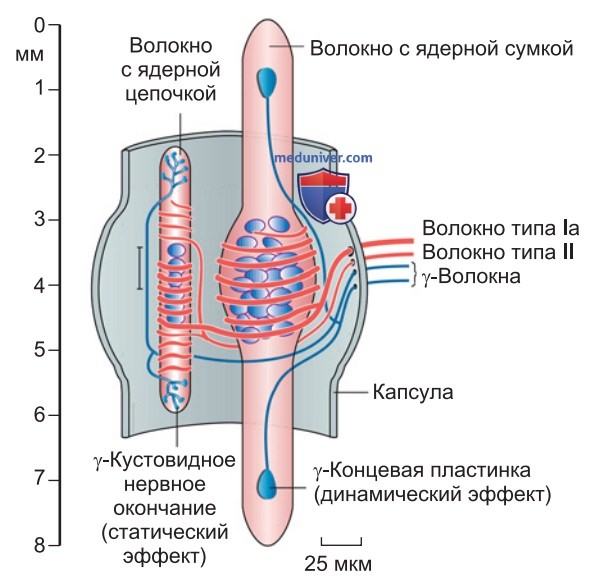
Располагающиеся в капсуле мышечные волокна называются интрафузальными (лат. fusus — веретено), тогда как обычные мышечные волокна, составляющие настоящую рабочую мускулатуру и на которые приходится большая часть мышцы, называются экстрафузальными.
Исходя из расположения клеточных ядер, различают два типа интрафузальных мышечных волокон: волокна с ядерной цепочкой, в которых ядра вдоль оси волокон расположены одно за другим в виде столбика или цепочки, и волокна с ядерной сумкой, в средней части которых находится множество компактно собранных клеточных ядер.
Волокна с ядерной сумкой всегда в два раза длиннее, чем волокна с ядерной цепочкой, а их диаметр в два раза больше. Мышечные веретена прикрепляются к слою соединительной ткани (перимизию) экстрафузального пучка с обоих концов над напоминающими сухожилия соединительнотканными тяжами длиной от 0,5 до 1 мм.
2. Сенсорная иннервация мышечных веретен. Как волокна с ядерными сумками, так и волокна с ядерными цепочками обвиваются посередине анулоспиральными окончаниями, которые растут из мякотного нервного волокна диаметром от 10 до 20 мм.
Анулоспиральное окончание также называют первичным чувствительным (сенсорным) окончанием, а афферентные нервные волокна волокнами Ia типа или Ia-афферентными волокнами (рис. 1, табл. 1). Каждое волокно типа Ia иннервирует только одно мышечное веретено.
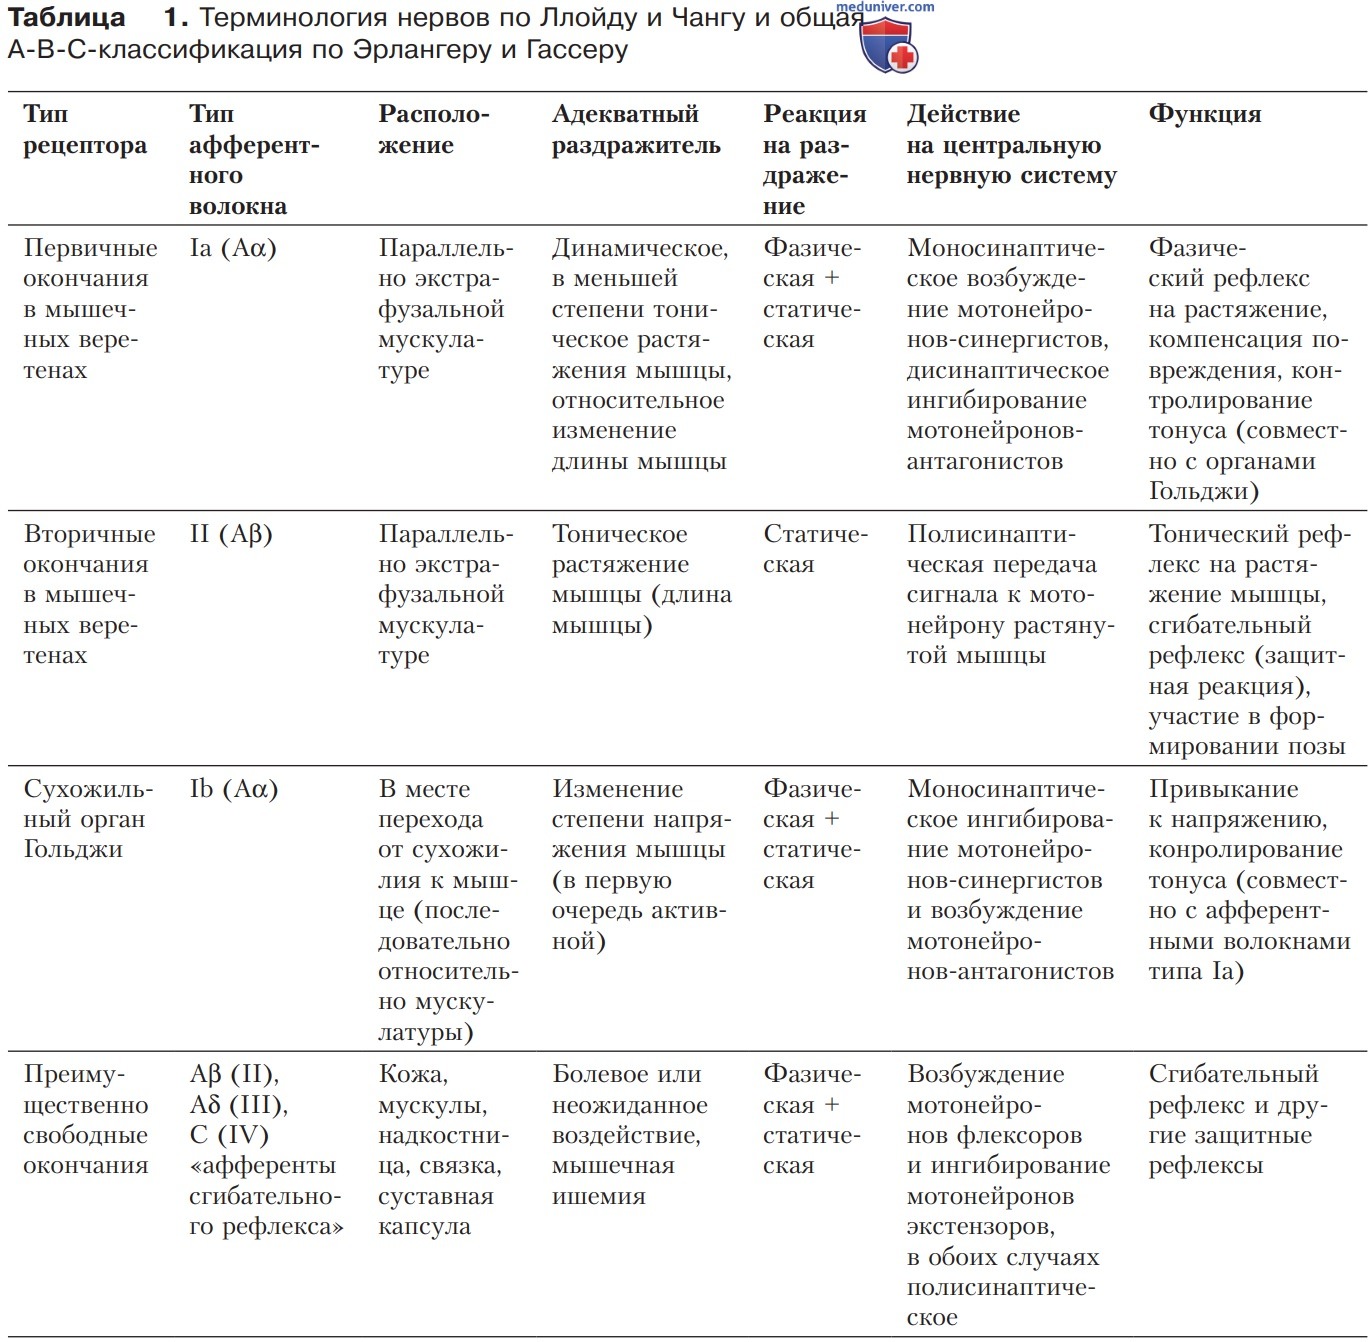
Ia-афферентные волокна фазических веретен в дальнейшем на большом своем протяжении остаются довольно толстыми (диаметром 15 мкм) и миелинизированными, что позволяет проводить по ним потенциалы действия с высокой скоростью (у человека примерно 80 м/с).
Для множества мышечных веретен характерна иннервация чувствительными нервами другого типа, они иннервируются одним или несколькими афферентными волокнами типа II (диаметр 5-6 мкм, скорость проведения примерно 40 м/с). Они начинаются ближе к периферии по отношению к первичным чувствительным окончаниям, и подходят почти исключительно к мышечным веретенам с ядерной цепочкой.
Эти сенсорные структуры называются вторичными чувствительными окончаниями. По форме и величине они похожи на первичные окончания и зачастую описываются как спиралевидные и иногда даже бутоновидные или зонтиковидные. В отличие от волокон Iа типа волокна группы II разветвляются на два или несколько веретен.
3. Эфферентная иннервация мышечных волокон. Интрафузальные мышечные волокна, как и экстрафузальные, обладают моторной иннервацией (рис. 1). Эфферентные фузимоторные γ-мотоаксоны происходят из γ-соматических клеток, которые, как и α-соматические клетки, находятся в передних рогах спинного мозга, однако значительно меньше последних.
Соответственно диаметр γ-мотоаксонов (от 2 до 8 мкм) меньше, чем у α-мотоаксонов (от 12 до 21 мкм) экстрафузальной мускулатуры. γ-Мотоаксоны в пределах мышцы разветвляются и обхватывают несколько мышечных веретен и внутри их несколько интрафузальных мышечных волокон. γ-Мотоаксоны образуют на полярных (периферических) отростках интрафузальных мышечных волокон два типа окончаний: γ-концевые пластинки (преимущественно на волокнах с ядерной цепочкой) и γ-концевые сети (преимущественно на экстрафузальных мышечных волокнах).
4. Влияние активности γ-мотонейронов на работу мышечного веретена. Порог чувствительности мышечных веретен под влиянием эфферентных фузимоторных волокон может быть изменен. В то время как для мышечных веретен, иннервируемых афферентными волокнами типа Ia, характерен динамический ответ, для мышечных веретен, иннервируемых вторичными афферентными волокнами, характерен статический ответ и, кроме того, более высокий порог возбуждения.
Частота разряда γ-мотонейронов определяет в обоих случаях степень растяжения и, таким образом, чувствительность сенсоров. Наряду с ними существуют и другие, более мелкие, мотонейроны, аксоны которых иннервируют как экстрафузальные, так и интрафузальные мышечные волокна: это β-мотонейроны (не показаны на рис. 1 и рис. 2) Под влиянием активности γ-мотонейронов полярные кончики веретен укорачиваются, а центральные их части при этом растягиваются.
В результате частота разряда сигнала, испускаемого мышечным веретеном, повышается.
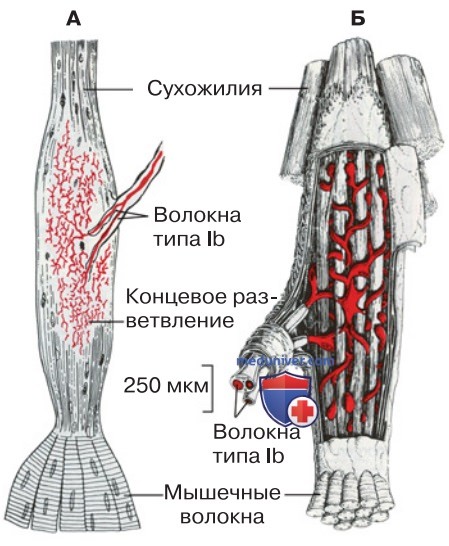
5. Строение сухожильных органов. В сухожилиях у основания мышцы имеются разветвленные безмякотные нервные окончания, которые расположены между коллагеновыми нитями и окружены соединительнотканной капсулой размерами приблизительно 1 мм в длину и 0,1 мм в толщину. Это сухожильные органы (сухожильные органы Гольджи; рис. 2, табл. 1), нити которых образуются из 10-20 экстрафузальных мышечных волокон.
Нервные окончания, связанные с сухожильными нитями, расположены относительно экстрафузальных мышечных волокон последовательно и, таким образом, активируются при совершении усилия, направленного относительно них радиально. Нервные окончания объединяются в несколько толстых миелинизированных нервных волокон диаметром около 10-20 мм, которые называются волокнами Ib типа.
6. Расположение мышечных веретен и сухожильных органов. Мышечные веретена располагаются параллельно экстрафузальной мускулатуре, а сухожильные органы последовательно по отношению к ней. Это служит причиной появления характерных различий в их импульсных разрядах, в первую очередь тех, которые возникают при сокращении мышцы (рис. 3).
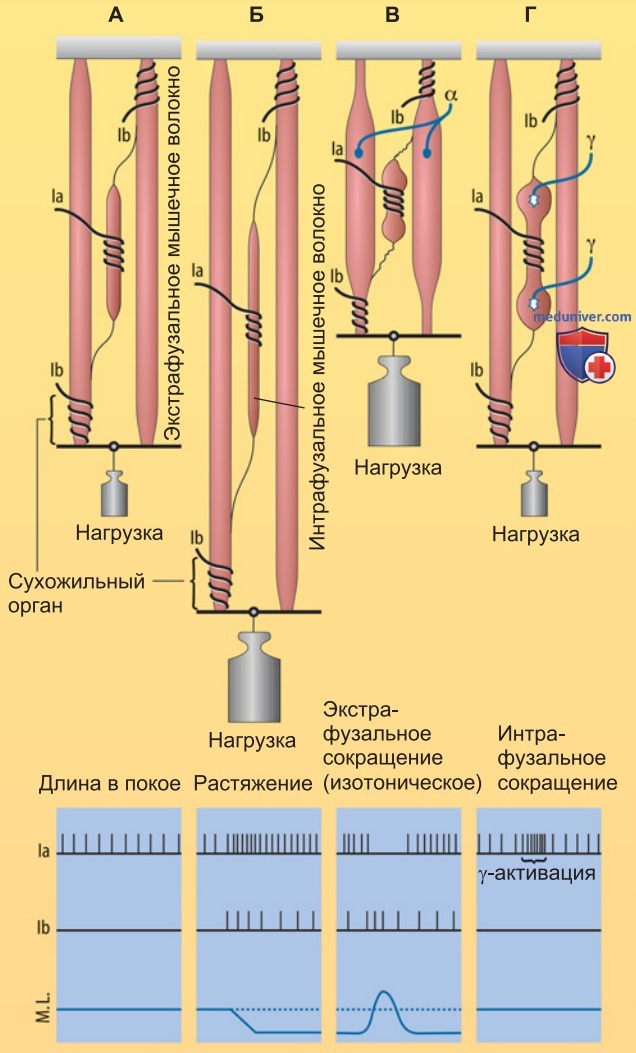
7. Импульсные разряды мышечных веретен и сухожильных органов при растяжении и сокращении экстрафузальной мускулатуры. Если мышца растягивается примерно до той длины, в которой она находится в состоянии покоя (рис. 3), то первичные окончания мышечных веретен разгружаются, при этом испускают импульсы, а сухожильные органы остаются неактивными. При растяжении (рис. 3) частота импульсов волокон Ia отчетливо повышается относительно исходной пропорционально степени растяжения, и сухожильные органы тоже начинают испускать имульсы.
Если за растяжением, например, из-за срабатывания фазического рефлекса на растяжение, следует чисто экстрафузальное сокращение (рис. 3), мышечное веретено расслабляется и испускание разрядов его рецепторами прекращается. Сухожильный орган при этом, напротив, остается растянутым, и частота его разрядов даже увеличивается во время сокращения, так как резкое напряжение вызывает кратковременное дополнительное растяжение сухожильного органа.
Мышечные веретена, таким образом, измеряют длину и изменение длины мышцы, в то время как сухожильные органы фиксируют и регистрируют ее напряжение. В случае изометрического сокращения частота разрядов сухожительных органов значительно увеличивается, а частота разрядов мышечных веретен при этом, казалось, должна была бы оставаться прежней. В действительности же частота разрядов мышечных веретен скорее уменьшается, так как, несмотря на то, что благодаря наличию эластичных элементов общая длина мышцы остается постоянной, сократимые элементы все равно укорачиваются, из-за чего мышечные веретена расслабляются.
8. Активация мышечных веретен при сокращении интрафузальных волокон. Первичные афференты могут возбуждаться не только из-за растяжения мышцы, но и по другой причине: из-за сокращения интрафузальных мышечных волокон при активации фузимоторных γ-мотонейронов. Одно только сокращение интрафузальных мышечных волокон не изменяет длину и напряжение всей мышцы, но его оказывается достаточно, чтобы растянуть центральную часть интрафузальных волокон и спровоцировать этим возникновение потенциала действия в первичных чувствительных окончаниях (рис. 3).
С однорй стороны, обе причины активации мышечных веретен — растяжение мышцы и сокращение интрафузальных волокон — могут действовать одновременно. С другой стороны, сокращение интрафузальных волокон может в некоторой степени компенсировать эффект сокращения экстрафузальных волокон. При этом может увеличиваться потенциальная область регулирования (см. внизу). Из-за этого область чувствительности сенсоров растяжения может уменьшаться.
9. Коротко. Спинальные рефлексы и их сенсоры. Спинальные рефлексы являются безусловными рефлексами. Их рефлекторная дуга построена сегментарно и состоит из сенсора, афферентного звена, спинального рефлекторного центра и эфферентного звена, идущего к эффектору (скелетная мышца). Важнейшими сенсорами являются мышечные веретена и сухожильные органы Гольджи. Мышечные веретена иннервируются как моторными нейронами (подходящими к интрафузальным мышечным волокнам), так и сенсорными окончаниями (первичными и вторичными).
С точки зрения выполняемых функций мышечные веретена регулируют длину и изменение длины мышцы, а сухожильные органы — напряжение мышцы. Мышечные веретена могут активироваться под действием двух факторов: из-за растяжения мышцы и из-за сокращения интрафузальных волокон.
Видео соматическая рефлекторная дуга
- Рекомендуем ознакомиться далее "Мышечные рефлексы на растяжение - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 24.11.2024