

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Механизмы спинального постсинаптического торможения - с точки зрения физиологии человека
Оглавление статьи:- Реципрокное антагонистическое торможение
- Автогенное торможение и регуляторный контур поддержания мышечного напряжения
- Рекуррентное (обратное) торможение
- Коротко
- Список использованной литературы
а) Реципрокное антагонистическое торможение. Афференты типа Iа образуют дисинаптические тормозящие связи с антагонистическими α-мотонейронами.
1. Определение. При активации агонистов одновременно ингибируются ипсилатеральные антагонисты. Афференты типа Iа образуют не только моносинаптические возбуждающие связи с гомонимными α-мотонейронами, но и дисинаптические тормозящие связи с антагонистическими мотонейронами (рис. 1). Подобное торможение называется реципрокным антагонистическим торможением.
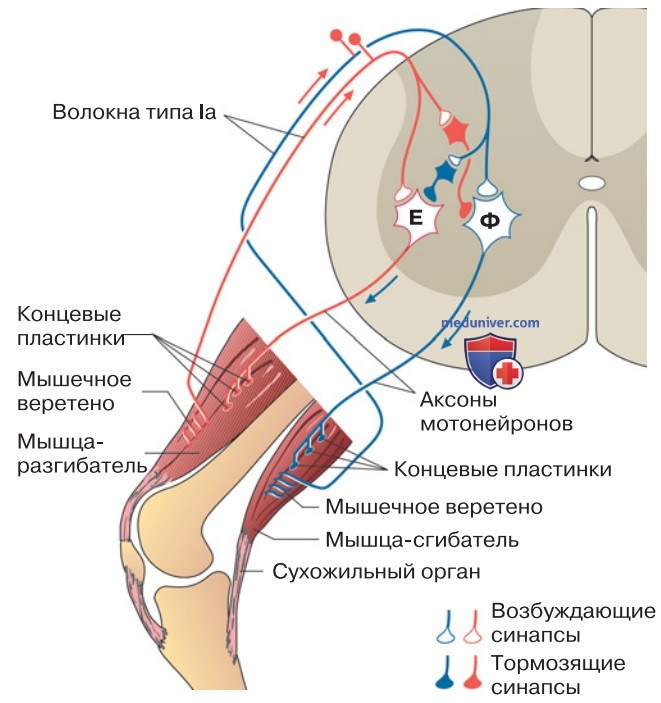
Поскольку волокна типа Iа в мышце-антагонисте образуют аналогичные связи, при пассивных (т.е. вызванных извне) изменениях положения суставов активируются четыре рефлекторные дуги, совместная работа которых служит залогом того, что изменение положения суставов будет обратимым и позволит поддерживать заданную длину мышц.
Если же коленный сустав сгибается под действием силы тяжести (рис. 1), растяжение мышечного веретена в мышце-экстензоре будет способствовать:
1) усиленному возбуждению мотонейронов в экстензорах;
2) усиленному торможению мотонейронов в флексорах.
Растяжение мышечных веретен во флексоре будет:
1) уменьшать гомонимное возбуждение мотонейронов в нем;
2) ослаблять реципрокное торможение мотонейронов в экстензоре. Такое «снятие торможения» называется дезингибированием. При этом возбуждение мотонейронов разгибательной мышцы в целом увеличивается, а возбуждение мотонейронов сгибательной мышцы уменьшается.
Таким образом, все вместе эти четыре рефлекторных дуги образуют систему контроля длины мышц.
б) Автогенное торможение и регуляторный контур поддержания мышечного напряжения. Передавая сигнал через интернейроны, сухожильные органы Гольджи ингибируют гомонимные α-мотонейроны и активируют α-мотонейроны антагонистов. Благодаря этому механизму мышечное напряжение может поддерживаться на постоянном уровне.
Афференты типа Ib сухожильных органов связаны со многими сегментами спинного мозга. Они подходят как к восходящим путям, так и к спинальным интернейронам. Если мышца растягивается, достигая своей длины в состоянии покоя, сухожильные органы Гольджи остаются бездействующими (рис. 2).
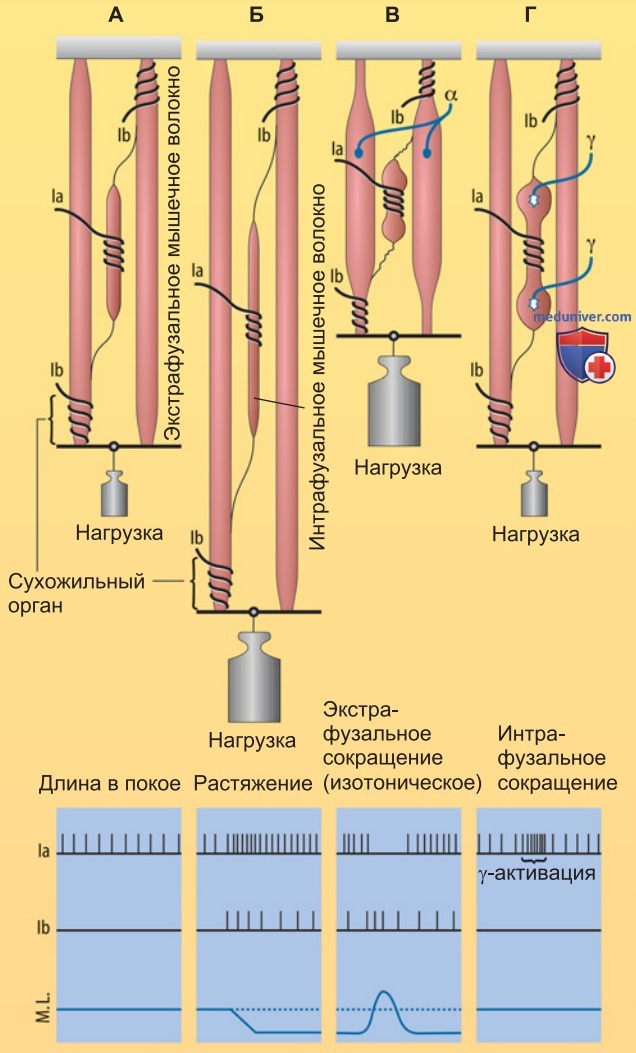
При пассивном повышении напряжения и, главным образом, при развитии активного усилия сухожильные органы начинают посылать потенциалы действия по волокнам типа Ib. Их чувствительность настолько высока, что они улавливают активацию отдельных моторных отделов, подавая об этом сигнал через восходящие пути и способствуя таким образом точному регулированию силы мышечного сокращения (например, при нажатии клавиши фортепиано).
Кроме того, они могут оказывать тормозящее влияние на саму мышцу в месте ее крепления и на ее агонисты (автогенное торможение), а через другие интернейроны типа Ib — активирующее влияние на α-мотонейроны ее антагонистов.
К интернейронам спинного мозга типа Ib подходят и многочисленные залегающие вне мышц афференты от механорецепторов и ноцирецепторов, ими обрабатываются супраспинальная информация, информация о напряжении от волокон типа Ib и информация о длине мышцы, поступающая изнутри нее по афферентам мышечных веретен типа Ia (см. ниже), на основании которой осуществляется мелко градуированное регулирование мышечного напряжения и координации мышц.
1. Автогенное торможение и поддержание силы мышечного напряжения. Снижение мышечного напряжения приводит к дизингибированию гомонимных мотонейронов, что позволяет снова его повысить. Таким образом, нежелательное уменьшение силы сокращения при утомлении мышцы может компенсироваться. Постоянство силы сокращения требуется для изотоническим движениям, например для поднятия руки в начале хватательного движения.
Утомление при этом может быть обусловлено периферическими или центральными причинами (о центральном утомлении, независимом от мотивации).
2. Автогенное торможение и группы интернейронов. Для подавляющего большинства повседневных движений характерно изометрическое сокращение мышц, поддерживающих позу, в сочетании с изотоническим сокращением соседних мышц, осуществляющих собственно движение. Поскольку многие мышцы должны выполнять разные функции в зависимости от той или иной задачи, в мышцах должны присутствовать оба типа рецепторов — мышечные веретена и сухожильные органы Гольджи.
Дополнительное влияние на популяции интернейронов типа Ib в неменьшей степени оказывают рецепторы в коже и суставах. На рис. 3 показана характерная конвергенция трех нисходящих путей и афферентов от четырех различных типов рецепторов. Оказывая возбуждающий или тормозящий эффект, нисходящие пути в зависимости от потребности могут «открыть» или «закрыть» нейронные сети для прохождения сигналов («феномен ворот»). Более того, механизм пресинаптического торможения может подавить эффекты, оказываемые первичными афферентами.
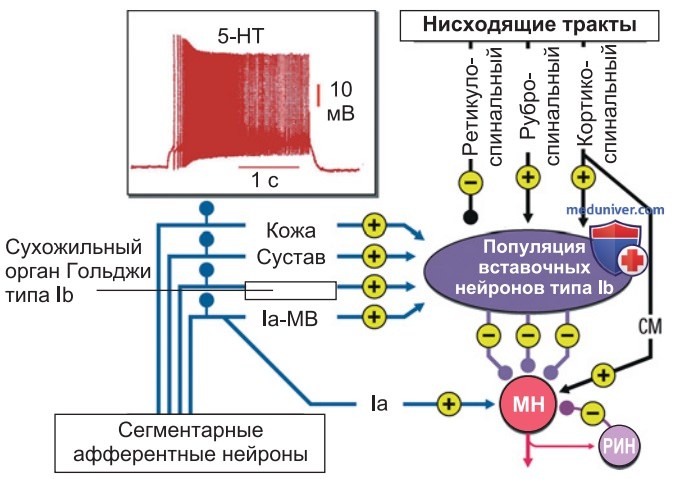
Группы интернейронов находятся под строгим контролем супраспинальных моторных центров. В зависимости от текущей моторной задачи интернейроны могут объединяться в рабочие группы различной конфигурации. Деятельность интернейронов модулируется моторными центрами уже на подготовительной фазе намеренного движения. Генераторы локомоторного ритма в спинном мозге являются примером одной из таких рабочих групп интернейронов, предназначенных для выполнения специфической функции; они обеспечивают активность экстензоров во время фазы опоры, а флексоров — во время фазы переноса.
Непосредственным стимулом для возбуждения интернейронов, которое передается мотонейронам, при этом служат взаимодействующие сигналы, передающиеся по нисходящим и сегментарным сенсорным путям спинного мозга.
В группах интернейронов происходит мультимодальная интеграция различных афферентных сигналов; нисходящие пути способны отбирать при помощи облегчения (фасилитации) или торможения (дисфасилитации) требуемые для исполнения данной программы интернейроны. Результат этой комплексной обработки сигналов в конечном итоге передается на мотонейроны. Афференты типа Iа и кортикоспинальный путь действуют прямо (моносинаптически) на мотонейроны.
в) Рекуррентное (обратное) торможение. Клетки Реншоу ингибируют активность гомонимных α-мотонейронов, а через интернейроны типа Ia влияют на активность антагонистических α-мотонейронов.
1. Рефлекторный путь торможения Реншоу. Другой формой постсинаптического торможения является рекуррентное торможение. В честь своего первооткрывателя, Бирдси Реншоу, рекуррентное торможение также называется торможением Реншоу, а задействованные в нем нейроны — клетками Реншоу (рис. 3; РИН). α-Мотонейроны имеют интраспинальные обратные коллатерали, которые посредством возбуждения клеток Реншоу оказывают обратное тормозящее воздействие на эти мотонейроны.
В синаптическом контакте между коллатералями и интернейронами, как и в моторных концевых пластинках, высвобождается ацетилхолин. Тормозными медиаторами собственно клеток Реншоу служат аминокислоты глицин или ГАМК. Высвобождение глицина или ГАМК приводит к гиперполяризации субсинаптической мембраны мотонейрона и, таким образом, к его торможению.
2. Функция торможения Реншоу. Интернейроны Реншоу испытывают дополнительное влияние ряда афферентов и нисходящих путей. Простая отрицательная обратная связь, замыкающаяся на том же самом мотонейроне, если рассматривать ее отдельно, имеет задачу ограничивать активность мотонейрона. Одновременно клетки Реншоу тормозят и те интернейроны, через которые афференты Ia типа должны ингибировать α-мотонейроны мышц-антагонистов (не отмечено на рис. 3).
Торможение Реншоу, таким образом, приводит к тому, что при срабатывании мышечного рефлекса на растяжение сокращение мышцы ограничивается, а мышца-антагонист (с короткой задержкой) затормаживается в меньшей степени.
Торможение Реншоу, таким образом, служит, прежде всего для ограничения вызываемых возбуждением афферентов типа Iа рефлексов.
3. Спазмы, возникающие из-за дезингибирования мышц, представляют угрозу для жизни. Растительный алкалоид стрихнин препятствует связыванию глицина с глициновым рецептором, функционирующим как хлоридный канал, из-за чего тот остается закрытым. При изготовлении нелегальных психоактивных веществ, таких как героин или кокаин, стрихнин образуется в виде примеси. Он также был обнаружен в некоторых таблетках, распространяемых под названием «экстази»; из-за своего возбуждающего (аналептического) эффекта при употреблении в малых дозах внесен в список допингов.
В высоких дозах вызывает дезингибирование ограничительных механизмов, управляющих мышцами, что способствует одновременному тетаническому сокращению агонистов и антагонистов. Возникающая из-за этого неподвижность (рефлекторная судорога) сопровождается сохранением совершенно ясного сознания, а происходящие при этом разрывы сухожилий и суставных капсул оказываются чрезвычайно болезненными.
Высшие центры головного мозга также легко возбуждаются под воздействием стрихнина. Судороги вызываются и усиливаются акустическими, оптическими и тактильными раздражителями.
В качестве лекарства против конвульсий (антидота) используется такое средство, как бензодиазепин. Последний активирует хлоридный канал, управляемый ГАМК, компенсируя тем самым блокирующее действие стрихнина на хлоридный канал, управляемый глицином.
Аналогично стрихнину действует токсин бактерии Chlostridium tetani при заболевании столбняком.
г) Коротко. Механизмы спинального постсинаптического торможения. Под реципрокным антагонистическим торможением подразумевается ингибирование активированными волокнами типа Iа мышечных веретен в мышцах-агонистах мышц-антагонистов. Под автогенным торможением подразумевается точное регулирование силы мышечного сокращения сухожильными органами Гольджи через волокна типа Ib.
Система мышечных веретен, предназначенных для измерения длины мышцы, таким образом, противопоставляется системе сухожильных органов, предназначенных для измерения силы ее сокращения. Что регулируется в большей степени — длина мышцы или сила ее сокращения, зависит от соответствующей задачи (поддержание текущей позы тела или целенаправленное движение). Торможение Реншоу, служит прежде всего, для ограничения рефлексов, вызываемых возбуждением афферентов типа Ia.
- Рекомендуем ознакомиться далее "Проприоспинальный аппарат спинного мозга - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 24.11.2024