

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Мышечные рефлексы на растяжение - с точки зрения физиологии человека
Оглавление статьи:- Мышечные рефлексы на растяжение
- γ-Система и совместная α-γ-активация
- Модуляция и количественная оценка рефлексов на растяжение (собственных рефлексов)
- Клиническое исследование рефлексов на растяжение путем провоцирования Т-рефлексов и Н-рефлексов
- Список использованной литературы
а) Мышечные рефлексы на растяжение. Мышечными рефлексами на растяжение называются собственные рефлексы мышц, служащие для стабилизации их длины. Мышечные рефлексы на растяжение имеют отчасти фазическую (устроены моносинаптически), а отчасти тоническую природу (устроены в основном ди- или полисинаптически).
1. Формы рефлексов. Мышечные рефлексы на растяжение представляют собой простейшие спинальные рефлексы. Так как сенсор находится в мышце, которая является эффектором, рефлексы на растяжение называют собственными рефлексами. Они проявляются в двух формах: в тонической, которая регулирует длину мышцы, и в фазической, которая служит ответом на внезапное изменение ее длины.
2. Фазический рефлекс на растяжение. Данная форма рефлекса основана на рефлекторной дуге (рис. ниже), которая состоит из сенсорных мышечных волокон (волокон с ядерной сумкой), быстрых афферентов веретена типа Ib, синаптических контактов между нервными окончаниями афферентов типа Ia и крупными телами гомоном-ных α-мотонейронов в передних рогах, а также из крупных моторных объединений мышечных волокон II типа.

Поскольку проходящие через задние рога афференты типа Ia. активируют клеточные тела α-мотонейронов, расположенные в передних рогах, моносинаптически, фазический рефлекс на растяжение считается моносинаптическим, так как моторная концевая пластинка при подсчете количества синапсов, входящих в состав рефлекторной дуги, не учитывается.
Как уже упоминалось выше, из всех афферентов только волокна Ха типа образуют моносинаптические контакты с α-мотонейронами. Но это не означает, что первичные афференты должны быть связаны моносинаптически с веретенами, которые они оплетают. В действительности афференты, образующие моносинаптически контакты с веретенами, составляют меньшинство.
Эффект от срабатывания моносинаптической рефлекторной дуги преобладает только в том случае, если афференты раздражаются синхронно — или электрическими одиночными раздражителями (Н-рефлекс), или кратковременными вынужденными растяжениями мышц (фазический рефлекс на растяжения, называемый также Т-рефлексом от англ. tendon — сухожилие).
3. Рефлекторная дуга как часть регуляторного контура. Если пассивное растяжение мышц сопровождается генерацией импульса, что может случиться, например, вследствие удара молоточком по мышечному сухожилию для проверки рефлексов (рис. выше), интрафузальные мышечные волокна вместе с сенсором оказываются ненадолго растянутыми. Из-за резкого растяжения мембрана окончаний афферентов на мышечных веретенах деполяризуется, что индуцирует серию разрядов, которая, пройдя по афферентам типа Iа, приводит к активации α-мотонейронов и нерегулируемому сокращению мышцы (Т-рефлекс).
Роль фазических афферентов в ходе этого процесса заключается в том, чтобы преобразовать изменение длины (т.е. дифференцирующий сигнал) в сигнал обратной связи в регуляторном контуре. При этом пороговые значения в регуляторном контуре возрастают, за счет чего степень влияния осуществляемой им регуляции может быть настроена пропорционально силе дифференцирующего сигнала.
4. Тонический рефлекс на растяжение. Тонический рефлекс отличается от фазического прежде всего тем, что основан на работе волокон с ядерной цепочкой в мышечных веретенах и связанных с ними вторичных афферентов. Сигналы от них передаются в гомонимные α-мотонейроны через сегментальные вставочные нейроны, поэтому исходно это дисинаптический рефлекс. При регулировании мышц-синергистов дуга рефлекса может быть полисинаптической.
Тонический рефлекс на растяжение срабатывает при плавно нарастающих отклонениях длины мышцы и является важнейшим компонентом регуляторного контура, который ее стабилизирует. Несмотря на свою значимость, тонический рефлекс редко проверяется при диагностике, поскольку такую процедуру сложно стандартизировать; рефлекторный ответ плохо поддается оценке.
5. Роль дуги рефлекса на растяжение в регуляции поддержания позы. Для сохранения позы, в частности для стабилизации суставов как основы для последующих движений дистальных частей конечностей, требуется постоянная длина мышц. Чтобы обеспечить это, мышцы должны не изменять ее в том числе и при изменяющейся нагрузке. Их длина регулируется, а излишнее растяжение предотвращается; в терминологии кибернетики мышцы можно было бы назвать регулируемыми участками.
Если мышца получает нагрузку (например, при переносе тяжести), вызванные изменения в ней должны быть отрегулированы отвечающими за это волокнами с ядерной цепочкой в мышечных веретенах (чувствительных волокнах или сенсорах). В спинной мозг передается информация о ее длине (ее текущем значении) через афферентные волокна типов Ia и II. Спинной мозг сопоставляет это реальное значение с нормальным (которое сообщается головным мозгом) и, используя эфферентное звено, управляет мускулатурой таким образом, чтобы минимизировать это регулируемое отклонение.
б) γ-Система и совместная α-γ-активация. К сокращению экстрафузальной мускулатуры может рефлекторно привести и изолированное возбуждение γ-мотонейрона (γ-петля). Однако при нормальном функционировании нервной системы α- и γ-мотонейроны активируются одновременно.
1. Управление сокращением скелетной мускулатуры. Как уже было написано выше, вызвать сокращение экстрафузальной мускулатуры можно двумя способами: во-первых, путем возбуждения непосредственно α-мотонейронов, во-вторых, путем возбуждения γ-мотонейронов, которые, в свою очередь, активируют при помощи сокращения интрафузальных волокон в мышечных веретенах их первичные волокна и через α-мотонейроны вызывают сокращение экстрафузальной мускулатуры.
Второй способ носит название γ-петли. Однако сама по себе γ-петля должна препятствовать произвольному установлению длины мышцы в неменьшей степени, чем внешние воздействия. Поэтому функционирование γ-системы зависит от совместной α-γ-активации. Это позволяет произвольно устанавливать требуемую длину мышцы и достигать оптимальной чувствительности мышечных веретен.
2. Коротко. Мышечные рефлексы на растяжение. Мышечные рефлексы на растяжение необходимы для стабилизации позы. Различают две их формы:
• Фазические рефлексы на растяжение: внезапное растяжение мышцы из-за постукивания по сухожилию молоточком приводит к синхронной активации афферентов типа Ia; при этом происходит моносинаптическая активация а-мотонейронов и фазическое сокращение мышцы.
• Тонические рефлексы на растяжение: тоническая иннервация, служащая для преодоления силы тяжести или оказания дополнительного сопротивления нагрузке, обеспечивается за счет активности афферентов мышечных веретен типа II, которые могут входить в ди- или полисинаптические рефлекторные дуги.
α-Мотонейроны образуют эфферентное звено рефлекторных дуг фазических и тонических мышечных рефлексов на растяжение. Они активируют экстрафузальные мышечные волокна, вместе с которыми образуют моторную систему. γ-Мотонейроны активируют интрафузальные мышечные волокна и изменяют область чувствительности мышечных веретен в соответствии с текущей необходимостью. α-γ-Система через активацию рефлексов на растяжение осуществляет произвольное изменение длины мышцы.
Проявление рефлекторного ответа зависит не только от активности сенсоров, но и от влияния управляющих ими двигательных центров. Клиническое значение фазических мышечных рефлексов на растяжение заключается в первую очередь в обнаружении патологических изменений и возможности установить их природу.
в) Модуляция и количественная оценка рефлексов на растяжение (собственных рефлексов). Моно- и дисинаптические рефлексы на растяжение (собственные рефлексы) можно модулировать по интенсивности, но не по продолжительности латентного периода.
В то время как латентный период рефлексов на растяжение остается постоянным, поскольку количество синапсов, составляющих их рефлекторные дуги, невелико, силу рефлекторного ответа можно модулировать в зависимости от:
- силы раздражения и, следовательно, от количества активировавшихся мышечных веретен и частоты разрядов отдельных веретен;
- влияния γ-мотонейронов на интрафузальные мышечные волокна;
- торможения α-мотонейронов (через сухожильные органы Гольджи);
- тормозного (ингибиторного) и возбуждающего (активирующего) супраспинального влияния на α- и γ-мотонейроны, передающегося по нисходящим путям через спинной мозг;
- растяжения мышцы в предыдущий момент, которое сказывается на текущей активности афферентов веретен и соответственно на рефлекторном ответе (рис. 3);
- поступавших в предыдущий момент сигналов от нервной системы.
Рефлекторная реакция при возрастающей силе внешнего раздражения усиливается до тех пор, пока не достигнет некоего максимального порогового значения (насыщения). Собственные рефлексы срабатывают постоянно, и для их подавления требуется мощное влияние со стороны центральной нервной системы только при максимизации центральных потоков (например, при произвольном желании застыть в неподвижности). Однако они находятся под тормозящим супраспинальным контролем (см. ниже).
г) Клиническое исследование рефлексов на растяжение путем провоцирования Т-рефлексов и Н-рефлексов. При стандартизированных условиях проявление рефлексов в целом возможно оценить в ходе клинического обследования; для получения более точных количественных показаний проводятся нейрофизиологические исследования, например провоцируется Н-рефлекс.
1. Сила врожденных рефлексов и возможности их провоцирования. В ходе клинического обследования требуется установить, являются ли пороги для срабатывания рефлексов на растяжение одинаковыми в обоих половинах тела и — что на практике представляется еще более затруднительным — являются ли где-то эти пороги патологически повышенными или пониженными по своему абсолютному значению.
Так как рефлекторный ответ зависит от положения и состояния сустава, от длины крепящихся к нему растянутых мышц, от активного напряжения этих и других мышц, следует обращать внимание на то, насколько симметричны суставы по своему положению, и на симметричность преиннервации (лучше всего при полном расслаблении) (см. 1).
Влияние произвольной преиннервации можно наблюдать, попросив пациента сильно стиснуть зубы или сцепить руки «замком», пытаясь при этом их развести с усилием (прием Ендрассика); рефлекторный ответ при этом усиливается. Степень возбуждения двигательных отделов приближается при этом из-за произвольно вызванного предвоз-буждения к пороговому значению.
Из-за того что пациент отвлекается на это произвольное действие, интенсивность супраспинального торможения понижается, что также способствует эффекту усиления. При исходно слабо выраженных рефлексах на растяжение (например, в случае гипотиреоза) благодаря этому приему можно заставить рефлекторный ответ проявиться, чтобы распознать в нем отклонения от нормы.
Поступление дополнительных сигналов из соседних сегментов спинного мозга и высших двигательных центров может понизить или повысить порог активации, однако избыток (overflow) сигналов может привести к окклюзии. Окклюзия характеризуется тем, что наращивание возбуждения в центральных синапсах не вызывает усиления реакции.
2. Патологические изменения фазических мышечных рефлексов на растяжение. Если при неврологическом обследовании обнаруживается, что порог срабатывания рефлекса отличается на одной стороне тела по сравнению с другой, а также если фазовые рефлексы на растяжение угасшие либо локально ослабленные или усиленные, можно утверждать, что произошло нарушение сенсомоторики (например, спинальные рефлексы на растяжение могут преобладать над супраспинальными рефлексами на растяжение, такими как жевательный рефлекс).
Выводы о работе рефлексов и возможных причинах этого нарушения (сопутствующих чувствительных и/или двигательных нарушениях) позволяют сузить предполагаемую локализацию патологии):
• Сегментарная гипо- или арефлексия: повреждение афферента (чаще всего выпадение межпозвоночного диска, влекущее компрессию заднего корешка) или тел клеток в передних рогах (полиомиелит, спинальная мышечная атрофия, параплегия на уровне повреждения); если поврежден только один сегмент спинного мозга, то благодаря тому, что спинальные нервы образуют сплетения, это повреждение приводит только к частичным нарушениям функционирования.
• Несегментарно организованная гипо- или арефлексия: такая картина распределения нарушений указывает на повреждение соответствующих нервных сплетений или нервов ствола мозга (компрессия из-за опухоли, синдром сдавления, травма, мононеврит); при симметричном поражении только моторных (заболевания мышц) или сенсомоторных (полиневропатия) функций; мышечные веретена в этом случае практически никогда не оказываются затронутыми.
• Гиперрефлексия: в норме фазические рефлексы на растяжение находятся под влиянием тормозящих путей, которые в составе пирамидных путей направляются к передним рогам. Так как изолированное повреждение пирамидных путей невозможно (не считая повреждения самих пирамид), функциональное расстройство в нисходящих путях из-за отсутствия торможения практически всегда приводит к усилению собственных рефлексов.
Гиперрефлексия, скорее всего, возникает параспинально из-за хронического поперечного повреждения или односторонне после контралатерального супраспинального повреждения, например инфаркта средней мозговой артерии (a. celebri media). Рефлекторное торможение практически всегда сопровождается патологическим повышением мышечного тонуса («мышечная спастичность»). Рефлекторная возбудимость повышается также у массовых рефлексов (сгибательных рефлексов и перекрестных разгибательных рефлексов).
Для гиперрефлексии типичны непрекращающиеся клонические судороги вследствие постоянного срабатывания проприоцептивных рефлексов, которые замыкаются сами на себе, образуя моносинаптическую рефлекторную дугу.
• Спастичность проявляется в сопротивлении мускулатуры растяжению, зависящем от скорости, которое связано с центральным парезом или параличом и патологическими приобретенными рефлексами.
У пациентов, находящихся в глубоком бессознательном (коматозном) состоянии и подключенных к аппаратам искусственного дыхания и кровообращения, спинальные мышечные рефлексы на растяжение (и спинальные рефлексы в целом) могут проявляться, несмотря на смерть мозга, еще в течение нескольких часов или даже нескольких дней. Наличие супраспинальных рефлексов, напротив, доказывает активность мозгового ствола, благодаря чему смерть мозга опровергается.
3. Провоцирование и регистрирование Н-рефлекса. К недостаткам использования молоточка для изучения рефлекса, в частности, Т-рефлекса (рис. выше), при клиническом обследовании относятся субъективная, качественная оценка, а также нестандартизированная провоцируемая молоточком интенсивность раздражения.
Однако и для клинических, и для теоретических нейрофизиологических исследований желательно, чтобы процедуры их проведения были стандартизированными и поддавались количественной оценке, например для контроля течения заболевания на протяжении длительного времени. Для этого был внедрен электрофизиологический метод электрического раздражения нервов с последующей регистрацией Н-рефлексов, показавший интересные результаты (рис. ниже).
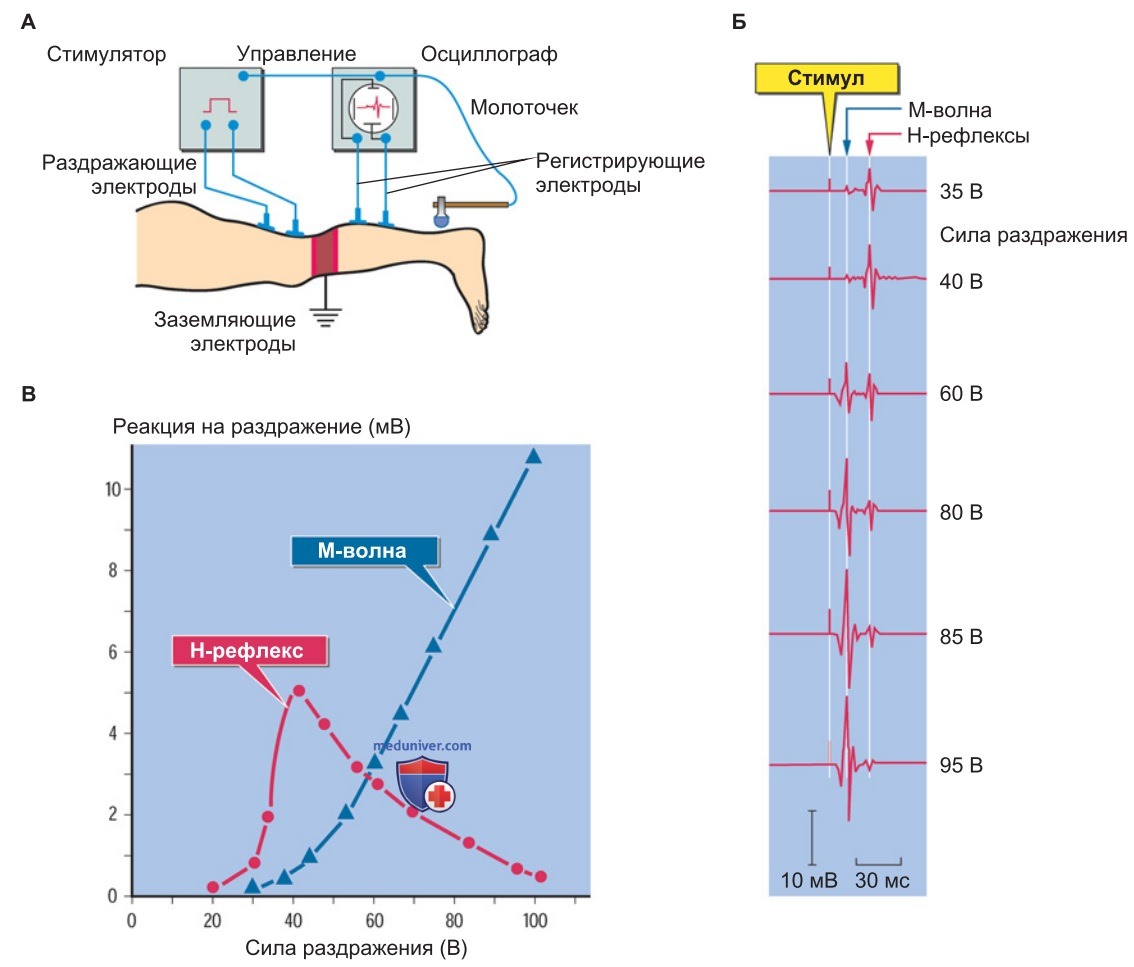
P.S. В 1918 г. физиолог Пауль Хофман разработал удобный метод провоцирования рефлекса в камбаловидной мышце (m. soleus) посредством электрического раздражения большеберцового нерва (n. tibialis) в коленной чашечке. Вызванный таким способом возбуждения мышечный рефлекс на растяжение может повторяться неоднократно.
Так как афференты веретен типа Ха обладают несколько более низким порогом для возбуждения через кожу (транскутанного), чем аксоны α-мотонейронов, при умеренной силе раздражения можно избирательно возбудить только афференты типа Iа. Силу электрического раздражения можно точно дозировать и поддерживать постоянной, а силу рефлекторного ответа можно достоверно измерить на основании суммирования потенциалов действия в мышце, регистрируемых электромиографом.
Метод быстро нашел широкое применение в клинической нейрофизиологии и в фундаментальных исследованиях по физиологии человека. В отличие от Т-рефлекса, Н-рефлекс получил свое название, впоследствии ставшее общепринятым, в честь первооткрывателя Пауля Хофмана (Hoffmann).
Основополагающим для использования Н-рефлекса при обследовании является построение графика его рекрутирования как функции от различных значений силы раздражения. Как показано на рис. выше, по мере возрастания силы раздражения сначала возникает рефлекторная Н-волна с латентным периодом около 30-40 мс; при более высокой интенсивности раздражения амплитуда Н-волны увеличивается, вскоре появляется М-волна с более кратким латентным периодом около 5-10 мс. При дальнейшем возрастании интенсивности раздражения ее амплитуда увеличивается, а амплитуда Н-волны уменьшается.
4. Природа рефлекса Хофмана. Н-волна является следствием рефлекторного возбуждения эфферентных α-мотонейронов, что косвенно вызывается раздражением первичных афферентов веретенных (Iа-волокон). Более продолжительный, чем у М-волны, латентный период обусловлен тем, что сигналу необходимо пройти более длинный путь через несколько синапсов. М-волна возникает в случае прямого возбуждения обладающих более высоким порогом моторных аксонов из-за воздействия раздражающих электродов.
Потенциалы действия в мотоаксонах в случае их искусственного раздражения оказываются направлены как «ортодромно» к периферии, так и «антидромно» к центру. В мотонейроне, таким образом, происходит столкновение между прямыми антидромными и косвенно вызванными импульсами, которые все эффективнее подавляются с возрастанием силы раздражения. Этим объясняется феномен обратного уменьшения амплитуды Н-волны в мышце по мере того, как возбуждение в мотоаксонах смешанных нервов все больше превышает порог, а амплитуда М-волны при этом увеличивается.
Видео схема и звенья рефлекторной дуги
- Рекомендуем ознакомиться далее "Сопряженные рефлексы - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 24.11.2024