

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Оптимизация поддержания позы и целенаправленных движений мозжечком - с точки зрения физиологии человека
Оглавление статьи:- Обзор функций структур мозжечка
- Связи коры мозжечка
- Моторное обучение в мозжечке
- Список использованной литературы
а) Обзор функций структур мозжечка. Мозжечок состоит из трех функционально различных структур: вестибулоцеребеллума, спиноцеребеллума и церебро- или понтоцеребеллума.
Вестибулоцеребеллум управляет движениями глаз, а также поддержанием позы и положения тела. Спиноцеребеллум координирует целенаправленную моторику и поддержание позы. Понтоцеребеллум создает двигательные программы для быстрых целенаправленных движений.
Функционально наиболее значимым представляется деление мозжечка на следующие области:
- вестибулоцеребеллум;
- спиноцеребеллум;
- понтоцеребеллум (называемый также церебро-церебеллумом, см. ниже).
По сути, это напоминает разделение мозжечка на:
- медиальную продольную зону;
- промежуточные продольные зоны;
- латеральные продольные зоны полушарий и в значительной степени согласуется с филогенетическим подразделением на:
- архицеребеллум (древний мозжечок);
- палеоцеребеллум (старый мозжечок);
- неоцеребеллум (новый мозжечок) (рис. 1).
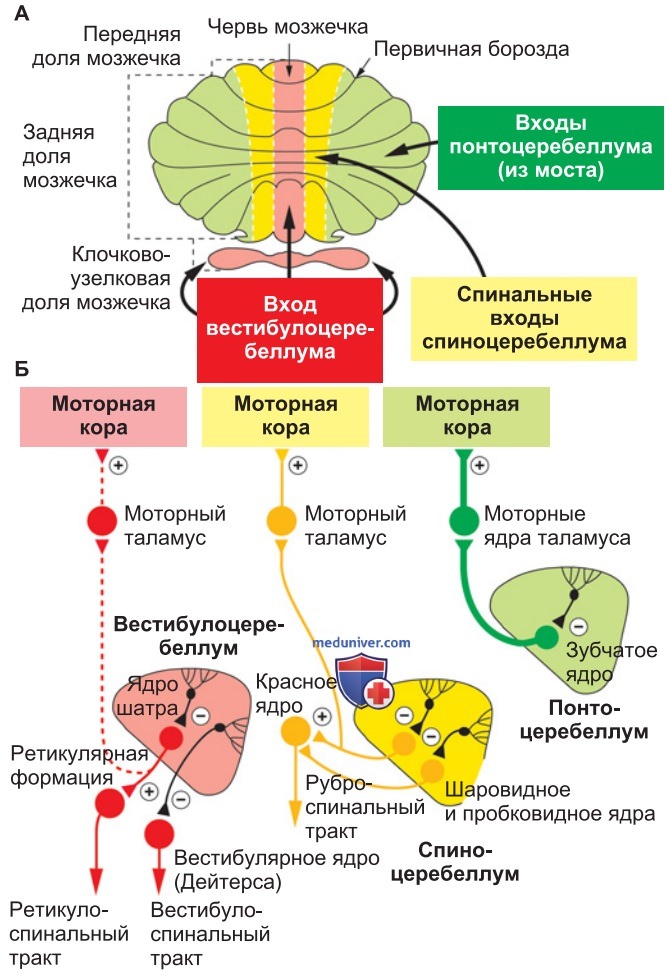
1. Вестибулоцеребеллум. Медиальная часть коры мозжечка (червь) и клочково-узелковая доля получают вестибулярную, зрительную и соматосенсорную афферентацию. Информация о положении головы в пространстве и о возможных линейных и угловых ускорениях приходит из органа равновесия. Дополнительно о положении в пространстве информирует поверхностная и глубокая чувствительность.
Червь и клочково-узелковая доля проецируют к вестибулярным ядрам ствола мозга и к ядру шатра (nucleus fastigii) в белом веществе мозжечка (рис. 2). Аксоны ядра шатра протягиваются к мостовым и медуллярным двигательным ядрам ретикулярной формации.
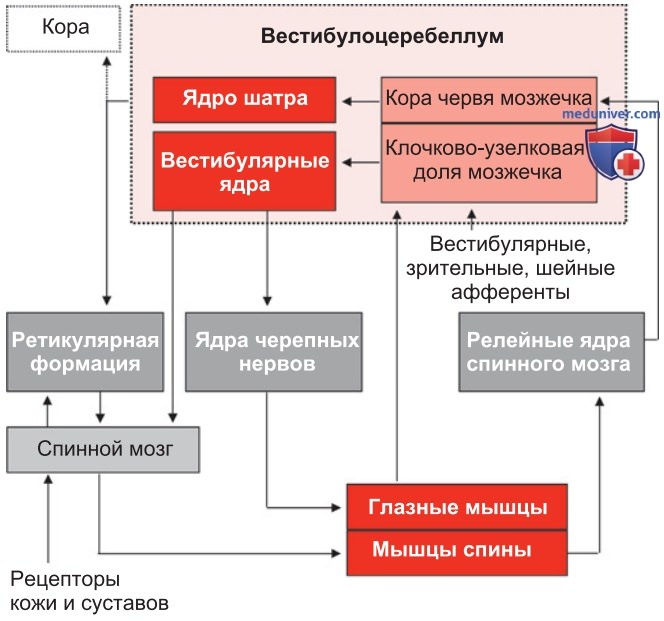
Таким образом, вестибулоцеребеллум имеет прямой доступ к центрам поддержания позы в стволе мозга и их нисходящим путям, которые действуют на спинной мозг и, в частности, регулируют глубокие позные мышцы туловища при стоянии и ходьбе. Вестибулоцеребеллум контролирует положение, тонус, позу и равновесие тела.
Кроме того, он связан с вестибулярными и двигательными ядрами ретикулярной формации через продольный медиальный пучок (fasciculus longitudinalis medialis) и опосредует вестибулоокулярный рефлекс. Вестибулоцеребеллум вызывает компенсаторные движения глаз, которые стабилизируют поле зрения при движениях головы и тела. Глаза двигаются в направлении, противоположном движениям головы.
Основой для вестибулоокулярного рефлекса служит система из трех нейронов (рецепторы полукружных каналов, вестибулярные ядра, ядра глазных мышц). Мозжечок оптимизирует и регулирует этот рефлекс.
Вестибулярные ядра представляют собой эквиваленты глубоких ядер мозжечка для вестибулоцеребеллума. Ядро шатра (nucleus fastigii) является глубоким ядром мозжечка только для области червя в вестибулоцеребеллуме, которая многими авторами часто описывается как проксимальный спиноцеребеллум.
Для спокойной позы стоя с параллельно расположенными ногами вестибулоцеребеллум задействует вестибулярные, зрительные и соматосенсорные афференты (в частности, поверхностную и глубокую чувствительность стоп ног). Если регистрировать проекцию центра тяжести на пол (с помощью измерительной платформы), то у здорового человека наблюдаются небольшие флуктуации положения центра тяжести.
Наблюдаемые колебания (рис. 3) усиливаются при повреждениях вестибулоцеребеллума или его эфферентных путей. Повреждение отдельного афферента, например поверхностной чувствительности, может быть скомпенсировано другими сенсорными модальностями. Если же отключается второй афферентный канал, например зрительная информация о положении в пространстве из-за потери зрения или при перемещении в темноте, то наблюдается дефицит контроля положения тела.
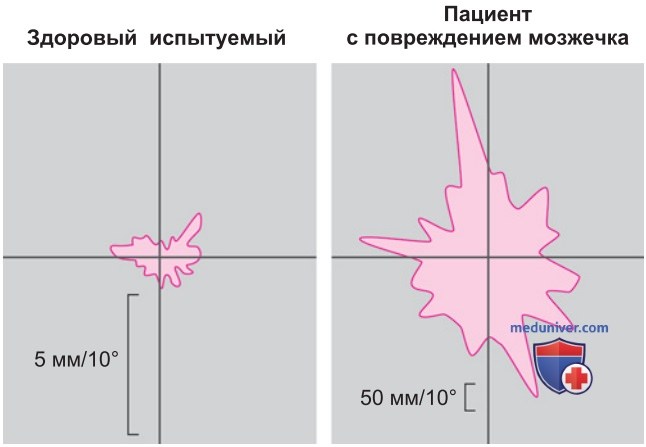
Чтобы выявить нарушения, которые в повседневной жизни компенсируются за счет более широкого использования визуальной информации, при клиническом обследовании сравнивают контроль положения тела с открытыми и закрытыми глазами (тест Ромберга).
Внешние вмешательства, влияющие на равновесие, корректируются сложными контурами управления, включая вестибулоцеребеллум. При произвольных движениях, например при поднятии руки, смещение центра тяжести приводит к дестабилизации, которую нужно компенсировать. В этом случае компенсация осуществляется проактивно, т.е. происходит стабилизирующая адаптация тонуса мышц, которая легко обнаруживается электромиографически в мышцах ног и туловища и проявляется одновременно или даже перед движением руки.
2. Спиноцеребеллум. Промежуточная часть непосредственно через спинной мозг получает информацию о положении и состоянии окончаний мышечных веретен, суставных рецепторов и сухожильных органов Гольджи (передний и задний спиноцеребеллярные тракты), а также афферентацию из моторной коры через коллатерали кортикоспинального тракта (рис. 4).
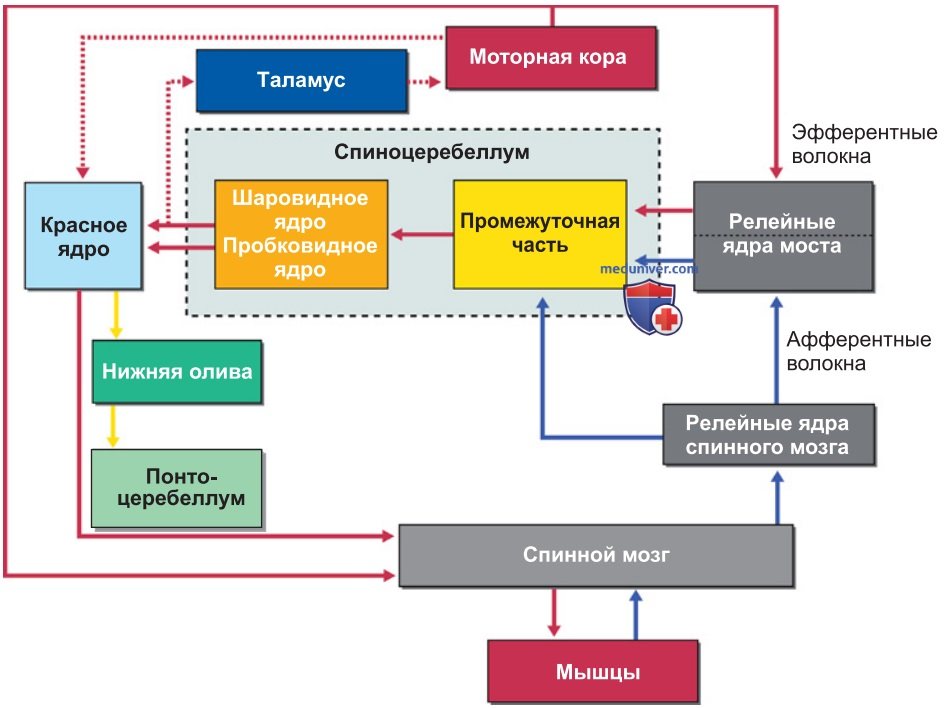
Промежуточная часть проецирует к шаровидному и пробковидному ядрам (nuclei globosus et emboliformis) (или к интерпозитарному ядру (nucleus interpositus) у млекопитающих), расположенным в белом веществе мозжечка; их аксоны тянутся к красному ядру (nucleus ruber) в среднем мозге. Через красное ядро спиноцеребеллум связан с нижней оливой, лежащей в продолговатом мозге (medulla oblongata), которая также получает афференты от ретикулярной формации, базальных ганглиев и кортикооливарного тракта, проходящего вместе с кортикоспинальным путем.
Предварительная информация о намерении совершить произвольное движение через коллатерали кортикоспинального тракта (эфферентный след) и обратная связь, например внешнее нарушение соматосенсорики (афферентный след), позволяют промежуточной области:
- координировать поддержание позы с целенаправленными движениями, например для своевременного изменения равновесия;
- вносить корректировки курса, которые осуществляются как через красное ядро, так и напрямую через обратную связь к моторной коре. Такие корректировки прежде всего необходимы для тех движений, которые недостаточно хорошо изучены или сравнительно редко используются.
Известный факт, что нельзя самостоятельно пощекотать себя, по всей видимости, имеет отношение к корректировке афферентации и эфферентации. Ожидание щекочущего движения приводит к тому, что мозжечок, очевидно, вычитает ожидание и эффект, чем препятствует возникновению ощущений, вызванных неожиданной щекоткой.
3. Понтоцеребеллум. Полушария мозжечка получают через мост прежде всего сигналы из ассоциативной коры и, в частности, из премоторных центров лобной доли (рис. 5).
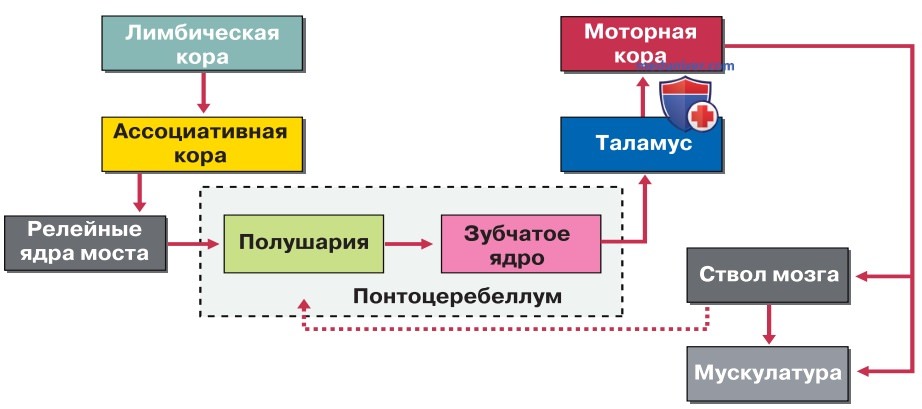
Эти возникающие в премоторной и дополнительной моторной коре достаточно грубые планы движений через мост передаются в полушария мозжечка, где они развиваются, дорабатываются, модулируются, корректируются и сравниваются с полученными из предыдущего опыта внутренними моделями. При координации произвольной активности также помогает следующая информация из нижней оливы ствола мозга:
- проходящие в данный момент к мускулатуре импульсы из моторной коры;
- импульсы, посылаемые из спиноцеребеллума через красное ядро к оливе.
Оба потока информации проходят по оливоцеребеллярному тракту, тогда как спиноцеребеллум представляет своего рода обратную связь для мозжечка в целом. Полушария, в отличие от вестибулоцеребеллума и спиноцеребеллума, не получают афферентации с периферии!
3. Цели и задачи эфферентов, исходящих из коры мозжечка. Результаты расчетов, произведенных в полушариях мозжечка, покидают мозжечок через зубчатое ядро (nucleus dentatus) и доставляются в двигательные ядра таламуса, в основном к ветролатеральному ядру (рис. 1). Там они направляются дальше к моторной коре больших полушарий. Моторные сигналы передаются через кортикоспинальный путь и преимущественно управляют движениями конечностей.
Показанные на рис. 5 связи понтоцеребеллума в основном используются для программирования и точной настройки настолько быстрых целенаправленных движений, что управление посредством соматосенсорной обратной связи невозможно из-за временных ограничений.
Это означает, что хорошо выученные автоматизированные двигательные программы (для которых больше не требуется обдумывание) накапливаются и хранятся в мозжечке. Примерами этого служат координация лицевых мышц при разговоре и движение пальцами при игре на музыкальных инструментах, а также координация всех частей тела во многих видах спорта. Таким образом, полушария мозжечка играют ключевую роль при имплицитном обучении и для процедурной памяти.
4. Функциональная ассиметрия правой и левой сторон мозжечка. У большинства людей левое полушарие мозжечка (связанное с правым полушарием головного мозга) играет важную роль в визуально-пространственном мышлении, а правое полушарие (связанное с левым полушарием головного мозга, доминирующим во время речи) важно для осуществления речевой функции. В связи с этим дислексия часто коррелирует с нарушением активности в правом полушарии мозжечка.
В отличие от речи, для которой требуется координация речевой мускулатуры, здесь говорится о такой высшей речеобразовательной функции, как, например, подбор слов. Таким образом, мозжечок обретает в том числе и когнитивные функции.
5. Особое положение понтоцеребеллума. Из-за доминирующих притоков информации из коры больших полушарий понтоцеребеллум также называют цереброцеребеллумом. Причина этого становится понятной, если вспомнить, что значительное увеличение коры головного мозга в эволюции человека привело к увеличению числа нейронов моста (23 млн), полушарий мозжечка и зубчатого ядра. Парно расположенное зубчатое ядро превратилось у приматов в самое большое ядро мозжечка.
6. Повреждения мозжечка, его афферентных и эфферентных путей. Функции мозжечка позволяют предполагать, что повреждения или дисфункции мозжечка или связанных с ним систем проводящих путей прежде всего выражаются в нарушениях мышечной координации при движении (атаксия) и мышечного тонуса (мышечная гипер- или гипотония). В зависимости от локализации и размера поврежденной области может встречаться целый ряд характерных признаков, а именно:
• вестибулоцеребеллум: головокружение, нарушение равновесия, атаксия в положении стоя, дизартрия («каша во рту»), саккадическое движение взгляда, растормаживание вестибулооккулярного рефлекса, нистагм глаза;
• спиноцеребеллум: атаксия при движении;
• понтоцеребеллум: дисметрия, положительный феномен отдачи (запоздалое торможение антагонистами), асинергия, мышечная гипотония, интенционный тремор (т. е. вызванный движением), дисдиадохокинез, дизартрия (скандирующая), трудности при классическом условном обучении. При нарушениях мозжечка типично возникновение триады Шарко:
• диплопия (раздвоение изображения),
• атаксия (нарушение равновесия или координации);
• дизартрия (нарушение речи, «каша во рту» и т. д.), часто связанная с дисдиадохокине-зом (неспособностью выполнять быстрые последовательные движения, такие как при игре на фортепиано).
Триада Шарко обнаруживается при алкогольной интоксикации, а также при рассеянном склерозе, причем отдельные симптомы этих заболеваний значительно различаются. Так, дизартрия проявляется при алкогольной интоксикации как неартикулиру-емая или меняющая громкость речь, что является признаком нарушения вестибулоцеребеллума, в то время как для пациентов, страдающих рассеянным склерозом, нередко характерна скандирующая речь (очаг демиелинизации расположен в эфференте от зубчатого ядра к таламусу).
7. Коротко. Функция структур мозжечка. Мозжечок участвует как в поддержании положения тела, так и в осуществлении произвольных движений. Функционально его можно подразделить на:
• вестибулоцеребеллум, который управляет движениями глаз через вестибулярные ядра и контролирует положение тела через вестибулоспинальные пути (поддержание позы);
• спиноцеребеллум, который контролирует и корректирует выполнение движений (устранение разницы между эфферентной и афферентной копиями);
• понтоцеребеллум, принимающий участие в планировании и программировании баллистических целенаправленных движений и быстрой тонкой моторике через кортико-церебелло-таламо-корти-кальные шлейфы.
Клинически важны выпадения функций, которые могут возникать из-за повреждений различных структур мозжечка. В первую очередь это атаксии, нистагмы, дисметрии и интенционный тремор.
б) Связи коры мозжечка. Для всего мозжечка тонкая структура и схема связей организованы одинаково.
1. Цитоархитектоника коры мозжечка. Схематично представленная на рис. 6 кора мозжечка однородна во всех отделах.
- Расположенный снаружи молекулярный слой содержит звездчатые и корзинчатые клетки и плотную сеть параллельных волокон и дендритов клеток Пуркинье и Гольджи.
- Слой клеток Пуркинье расположен посередине и содержит клеточные тела крупных клеток Пуркинье.
- Расположенный внутри зернистый слой содержит плотно упакованные мелкие зернистые клетки, а также клеточные тела и аксоны клеток Гольджи.
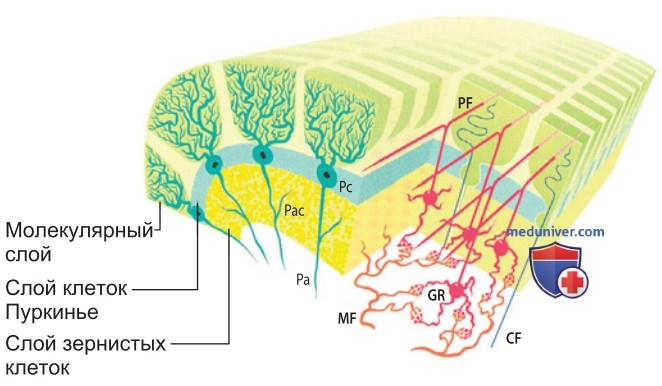
Различают два вида афферентных волокон (клеточные тела которых расположены в других областях мозга), идущих к клеткам коры:
- моховидные волокна;
- лазающие волокна.
Оба типа афферентных волокон и зернистые клетки являются возбуждающими и глутаматергическими. Все прочие клетки коры мозжечка (клетки Пуркинье, клетки Гольджи, корзинчатые и звездчатые клетки) являются тормозными и ГАМКергическими.
2. Клетки Пуркинье. Эти самые крупные клетки коры имеют огромное широко разветвленное дендритное древо в молекулярном слое. Они представляют собой единственные эфферентные клетки коры, т. е. именно их аксоны выходят из коры к расположенным глубже ядрам мозжечка.
3. Зернистые клетки. Аксоны этих многочисленных клеток маленьких размеров выходят из молекулярного слоя, там разделяются и в виде параллельных волокон тянутся вдоль извилин мозжечка через дендритные древа клеток Пуркинье. Число зернистых клеток поражает: они составляют 99% нейронов коры мозжечка, к тому же сам мозжечок (и прежде всего слой зернистых клеток) составляет 50% всех нервных клеток организма — даже больше, чем большие полушария.
4. Система моховидных и параллельных волокон и система лазающих волокон. Моховидные и лазающие волокна тянутся к коре мозжечка, от них отходят коллатерали к ядрам мозжечка и возбуждают последние (рис. 6 и 7). Каждое моховидное волокно сильно ветвится и возбуждает многочисленные зернистые клетки. Лазающие волокна идут вверх, обвиваются вокруг дендритов клеток Пуркинье, как вьющееся растение, и возбуждают их.
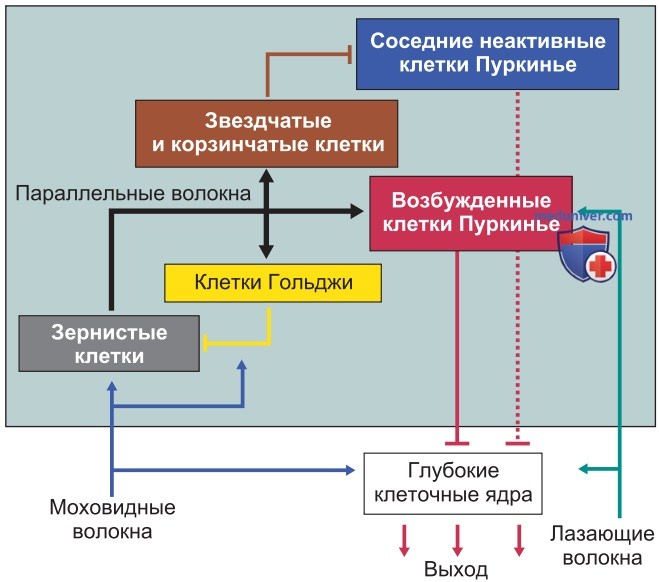
Возбуждение зернистых клеток передается через параллельные волокна молекулярного слоя многочисленным клеткам Пуркинье, а также звездчатым клетками, корзинчатым клеткам и клеткам Гольджи.
5. Звездчатые и корзинчатые клетки действуют тормозно на клетки Пуркинье, клетки Гольджи и зернистые клетки. Из-за обратного и латерального торможения эти интернейроны контрастируют картину возбуждения клеток Пуркинье, т. е. популяция возбужденных клеток Пуркинье окружается неактивными клетками (рис. 7). Как единственные эфференты, исходящие из коры, клетки Пуркинье тормозят ядра мозжечка.
Возбуждение ядер требует устранения их торможения клетками Пуркинье. Эфференты заторможенных ядер мозжечка возбуждающе действуют на ядра ствола мозга и моторный таламус (рис. 2, 4 и 5).
5. Активация коры мозжечка моховидными волокнами. Сенсорные события, например тактильное раздражение, которые передаются через исходящие из спинного мозга моховидные волокна, возбуждают ипсилатеральные популяции клеток Пуркинье. Они имеют форму полосок длиной около 3 мм, ориентированных продольно к листкам коры мозжечка. Их протяженность соответствует пучку возбужденных параллельных волокон.
Латеральное торможение слабо возбужденных клеток Пуркинье приводит к формированию контрастной полосы возбужденных клеток, что соответствует афферентной копии. Аналогичным образом могут формироваться распределенные множественные паттерны возбуждения в результате активации моховидных волокон, идущих из ядер моста и передающих информацию от корковых структур. Необходимо представлять, что эфферентная и афферентная копии проявляются во множестве таких небольших возбужденных полосок, флуктуирующих во временном и пространственном измерениях.
6. Активация коры мозжечка лазающими волокнами. Расположенные в нижней оливе клеточные тела лазающих волокон тоже находятся под влиянием периферических процессов и, следовательно, активируются «выводом» моторных команд. Каждое лазающее волокно иннервирует до 15 клеток Пуркинье (дивергенция). При этом каждая клетка Пуркинье связана только с одним лазающим волокном. Тем не менее возможно пластическое моделирование чувствительности клеток Пуркинье (самых эффективных синапсов нервной системы).
7. Гетеросинаптическое облегчение системы моховидных волокон системой лазающих волокон. В основе этих связей мозжечка лежит гипотеза динамического отбора. Согласно гипотезе, в клетках Пуркинье за счет кратковременной активации лазающих волокон формируется долговременная передача от параллельных волокон к клеткам Пуркинье (для последовательностей движений). Такой процесс называется гетеросинаптическим облегчением.
Через соматотопически организованные проекции клеток Пуркинье отбираются специфические ядерные области внутри мозжечка, т. е. происходит двигательная интеграция. Термин «соматотопически» означает, что наше тело «отображается» в отдельных областях мозга.
в) Моторное обучение в мозжечке. Мозжечок принимает участие и в долгосрочных моторных адаптациях, и в моторном обучении. Следующие два наблюдения показывают, что мозжечок принимает участие как в долгосрочных адаптациях, так и в моторном обучении.
1. Пример моторной адаптации. Если зрение нарушается из-за установки отражающих призм, то контролируемые зрительно движения выполняются неправильно. Визуальная информация больше не согласуется с соматосенсорной и вестибулярной обратной связью. Удивительно, однако испытуемый может адаптироваться к новой ситуации, и через несколько дней движения снова будут совершаться правильно. Это, по-видимому, происходит адаптивным путем благодаря новой «калибровке» афферентных сигналов.
В эксперименте можно продемонстрировать, что передача в вестибулоокулярном рефлексе значительно меняется. Тем не менее эта долгосрочная адаптация вестибулоокулярного рефлекса происходит только при неповрежденном мозжечке.
2. Моторное обучение. Классическое обусловливание мигательного рефлекса служит моделью моторного обучения. У кролика этот рефлекс может быть обусловлен одновременным предъявлением тактильного стимула вместе со звуковым сигналом. Через сравнительно небольшое время смыкание век может быть вызвано только звуковым сигналом (парадигма классического обусловливания Павлова). Было показано, что для формирования и для поддержания условного рефлекса необходимы описанные структуры мозжечка и нижняя олива, исходное ядро лазающих волокон.
3. Коротко. Связи и функционирование коры мозжечка. Два основных входа в кору мозжечка образованы системой моховидных и параллельных волокон, а также системой лазающих волокон.
• Нейроны системы моховидных волокон демонстрируют сильную дивергенцию. Активация пучка параллельных волокон моховидными волокнами дает в результате небольшие полосы возбуждения, расположенные продольно по отношению к листкам мозжечка. Тормозные интернейроны формируют посредством контрастирования четко ограниченный очаг возбуждения в слое клеток Пуркинье.
• Возбуждение в лазающем волокне передается нескольким клеткам Пуркинье. Однако каждая клетка Пуркинье связана только с одним лазающим волокном. Тем не менее существует пластическое моделирование чувствительности клеток Пуркинье (самые эффективные синапсы нервной системы).
Клетки Пуркинье являются единственными нейронами, выходящими из коры мозжечка. Клетки Пуркинье проецируют обработанную в коре мозжечка информацию как тормозной сигнал через медиатор ГАМК к ядрам мозжечка.
В ядрах мозжечка происходит интеграция различных информационных входов. Эфференты ядер мозжечка возбуждают ядра ствола мозга.
Видео анатомия мозжечка
- Рекомендуем ознакомиться далее "Оптимизация целенаправленных движений базальными ганглиями - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 24.11.2024