

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Эритроциты - с точки зрения физиологии человека
Оглавление статьи:- Гемопоэз
- Число, форма и размер эритроцитов
- Эритропоэз
- Анемия
- Метаболическая активность эритроцитов
- Биофизические свойства
- Резюме
- Список использованной литературы
а) Гемопоэз. Все форменные элементы крови развиваются из общих стволовых клеток; гемопоэз регулируется специфическими факторами роста и гормонами.
1. Стволовые клетки. Клетки крови имеют ограниченный срок жизни, который может составлять несколько часов (нейтрофилы), несколько месяцев (эритроциты) или много лет (лимфоцитарные клетки памяти). Состарившиеся клетки заменяются более молодыми. Процесс образования молодых клеток крови называют гемопоэзом (греч. haima — кровь; poiein — делать).
Генеалогическое дерево клеток крови (рис. 1) показывает, что они развиваются из плюрипотентных гемопоэтических стволовых клеток. Стволовые клетки обладают способностью к делению и, следовательно, самообновлению (ауторепродукции), что поддерживает их постоянное существование. Помимо этого, они дают более дифференцированных потомков. Среди их прямых потомков различают миелоидные и лимфатические клетки.
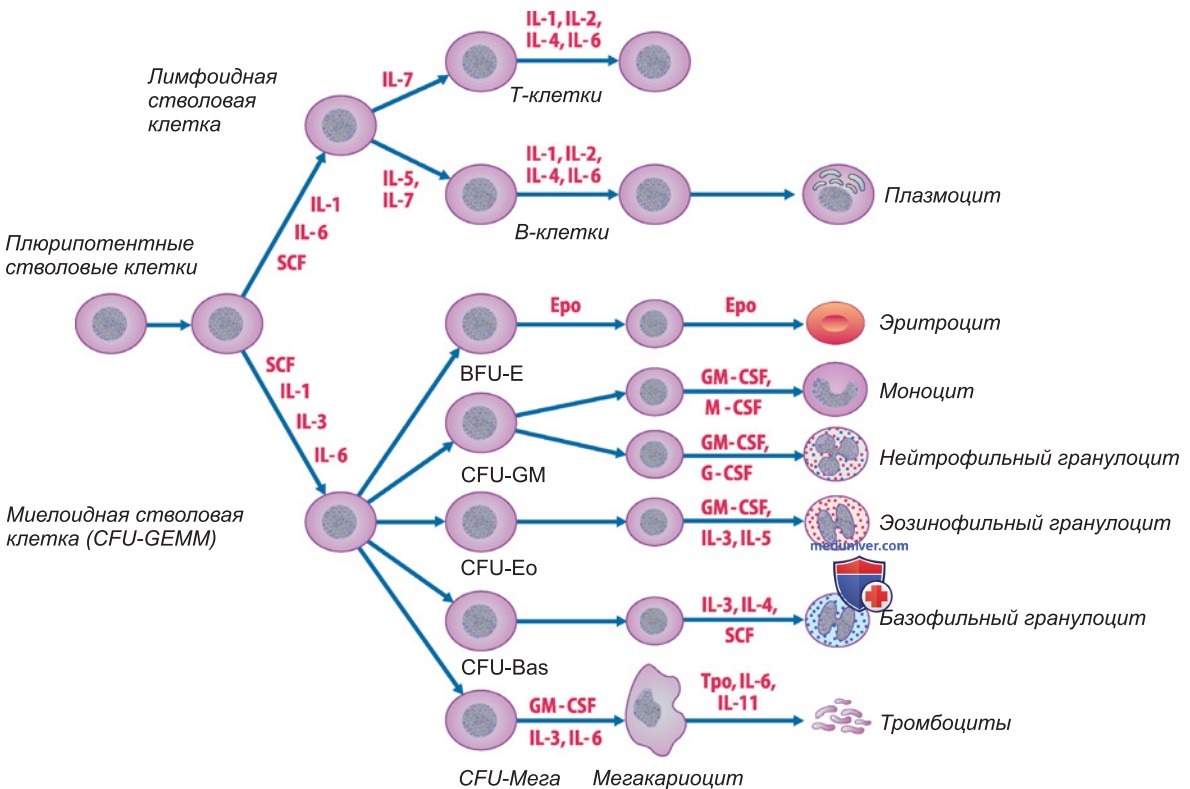
Гемопоэтические стволовые клетки в клинической практике часто называют CD34+-клетками (от англ. cluster of differentiation, что указывает на наличие у них определенных, обозначаемых числами мембранных белков). С использованием антител против белка CD34 можно накапливать гемопоэтические стволовые клетки для трансплантации стволовых клеток.
Стволовые клетки также характеризуются пластичностью, т.е. могут давать начало не только мезодермальным (кровяным) клеткам, но и эндо- и эктодермальным клеткам. При лечении стволовыми клетками делается попытка путем пересадки собственных стволовых клеток (аутологичная трансплантация) восстановить поврежденные ткани (например, в мозге или в сердце).
2. Клетки-предшественники. За миелоидными и лимфоидными стволовыми клетками следуют более специализированные клетки-предшественники. На ранних стадиях развития они морфологически не дифференцированы — все выглядят похожими на лимфоциты. Клетки-предшественники дают начало колониям более дифференцированных клеток (отсюда название «колониеобразующие единицы», КОЕ).
Обозначение КОЕ-ГЕММ свидетельствует о том, что из них вырастает клеточная колония, состоящая из многих гранулоцитов (Г), эритроцитов (Е), моноцитов (Н) и мегакариоцитов (Н).
3. Гемопоэтические факторы роста. Пролиферация и дифференцировка стволовых клеток и клеток-предшественников регулируются различными факторами роста. Некоторые из них представляют собой настоящие гормоны и вырабатываются в отдаленных от костного мозга органах, таких как почки и печень, другие — цитокины — образуются локально гемопоэтическими клетками, фибробластами и эндотелиальными клетками (см. табл. А5).

Знание факторов роста существенно важно для клинической практики, так как некоторые — полученные с помощью методов генной инженерии — используются в качестве средств лечения. Среди важнейших средств, назначаемых в качестве лекарственных препаратов, — рекомбининтный человеческий эритропоэтин (рчЭПО) и гранулоцитарный колониестимулирующий фактор (рчГ-ксФ).
б) Число, форма и размер эритроцитов. Эритроциты — безъядерные двояковогнутые диски диаметром около 7,5 мкм. В среднем на 1 л крови приходится 4,8 х 1012 эритроцитов у женщин и 5,3 х 1012 у мужчин.
P.S. Трансплантация гемопоэтических стволовых клеток. Пул гемопоэтических стволовых CD34+ клеток в костном мозге в норме способен на протяжении всей жизни продуцировать достаточное число клеток-предшественников, из которых образуются различные клетки крови.
Эта способность утрачивается, когда пациентам со злокачественными заболеваниями, такими как лейкозы (рак крови) или лимфомы, назначают химические препараты в высоких дозах, возможно, в сочетании с радиотерапией, поскольку при этом уничтожаются стволовые клетки.
Их потеря может быть компенсирована внутривенным введением новых стволовых клеток, которые заселяют в костный мозг (homing) и регенерируют гемопоэтическую ткань. Трансплантация может осуществляться аутологично, когда в распоряжении имеются здоровые криоконсервированные стволовые клетки самого пациента.
При аллогенной трансплантации клетки берут от другого человека, который должен иметь сходные HLA-маркеры (человеческие лейкоцитарные антигены), чтобы предотвратить реакцию иммунокомпетентных клеток донора (реакция трансплантата против хозяина) на здоровые ткани реципиента.
Однако интересно, что трансплантированные чужеродные лейкоциты также могут разрушать лейкемические клетки реципиента.
Ранее красный костный мозг, полученный из тазовых костей, трансплантировали (ТКМ) или использовали для получения стволовых клеток. В прежнее время предпочтение отдавали трансплантации стволовых клеток периферической крови (ТПСК), которая менее болезненна для донора. Поскольку в норме в крови циркулирует мало стволовых клеток, за несколько дней до взятия материала донору вводят Г-КСФ, что стимулирует выход стволовых клеток из костного мозга (мобилизацию стволовых клеток).
Стволовые клетки выделяют из крови донора в системе рециркуляции путем многочасового процесса (аферез).
Третий вариант, который особенно подходит для детей, — это трансплантация стволовых клеток из пуповинной крови новорожденного.
1. Количество эритроцитов. Большинство форменных элементов крови — это эритроциты (по объему > 99%), которых в 1 л крови у женщин в среднем насчитывается 4,8 х 1012, а у мужчин 5,3 х 1012 (табл. 2). Наряду с водой главным компонентом эритроцитов является красный пигмент крови гемоглобин, связывающий О2.
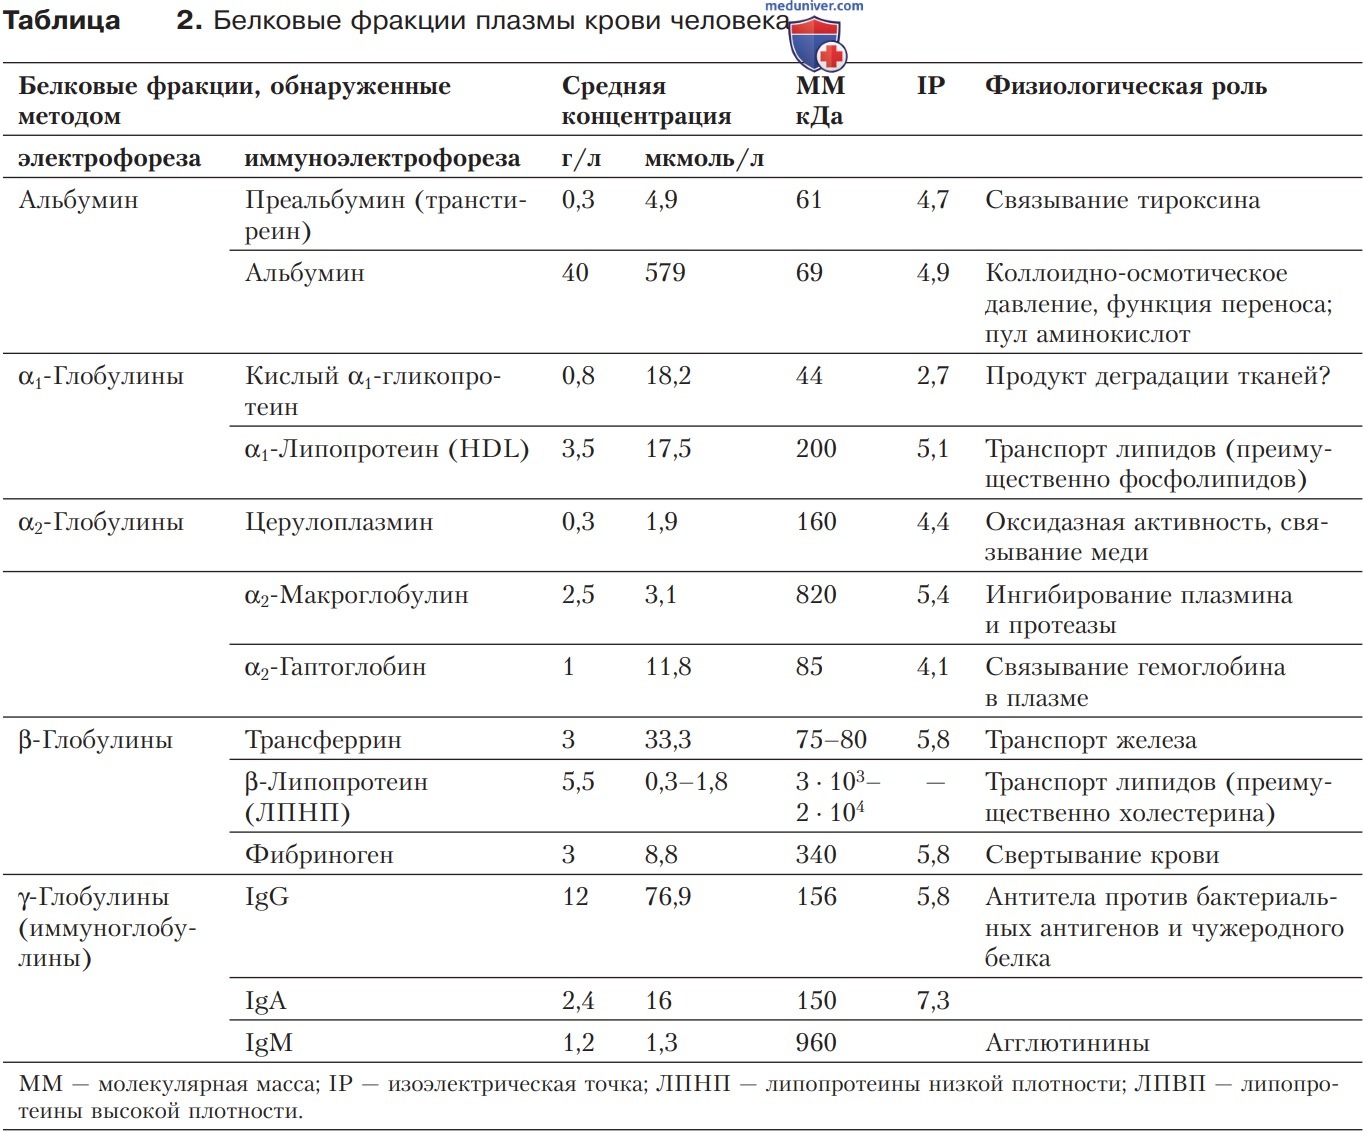
За детские годы концентрация эритроцитов изменяется. У новорожденных она высокая (5,5 х 1012/л) вследствие внутриутробной гипоксии, кроме того, при рождении кровь проходит через плаценту в кровеносную систему ребенка и при этом сильно обезвоживается. В последующие месяцы эритроциты плода погибают, поскольку они чувствительны к окислительному стрессу из-за поступающего от легких кислорода. Формирование эритроцитов не поспевает за гибелью фетальных эритроцитов, вследствие чего имеет место снижение их концентрации на 3-м месяце жизни примерно до 3,5 х 1012/л.
У детей дошкольного и школьного возраста отмечается несколько меньшая концентрация эритроцитов, чем у взрослых женщин.
2. Форма. Эритроциты человека — безъядерные двояковогнутые диски, средний диаметр которых составляет 7,5 мкм, а максимальная толщина (с края) 2 мкм (рис. 2). По сравнению с шаровидной уплощенная форма увеличивает площадь поверхности. Это облегчает газообмен при дыхании, так как диффузионная поверхность большая, а диффузионный путь короткий. Кроме того, плоские гибкие эритроциты могут при прохождении через узкие и изогнутые участки капилляров легко менять свою форму. Гибкость эритроцитов уменьшается с возрастом.
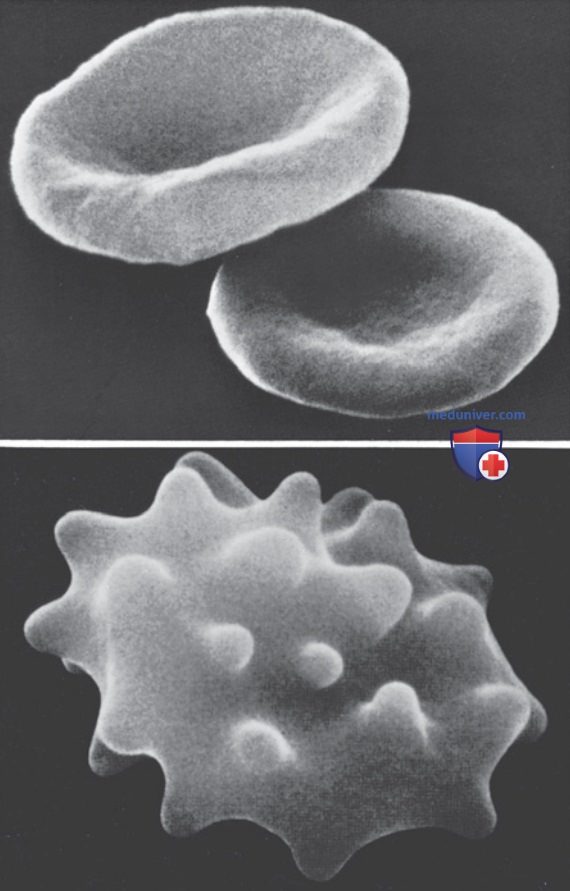
Она также меньше у аномально деформированных эритроцитов, например, у эллиптоцитов, сфероцитов (шаровидных) или серповидных клеток, поэтому они часто застревают в красной пульпе селезенки, где затем деградируют.
3. Размер. Средний объем эритроцитов (MCV, mean corpuscular volume) составляет 85 фемтолитров (нормоцит). Аномально крупные эритроциты называют макроцитами (например, при злокачественной анемии), а аномально мелкие — микроцитами (например, при недостатке железа). При одновременном наличии макро- и микроцитов говорят об анизоцитозе. Если эритроциты обладают аномальной формой, то имеет место пойкилоцитоз (например, при злокачественной анемии или талассемии).
4. Картина красной крови. Наряду с гематокритом, концентрацией гемоглобина, числом кровяных клеток и MCV, к основополагающим параметрам крови (табл. 3) относятся среднее содержание гемоглобина в эритроцитах (МСН, mean corpuscular hemoglobin) и средняя концентрация гемоглобина в эритроцитах (МСНС, mean corpuscular hemoglobin concentration). МСН показывает рассчитанную среднюю массу гемоглобина в отдельном эритроците (30 пг — нормохромная, > 34 пг — гиперхромная, < 27 пг — гипохромная).
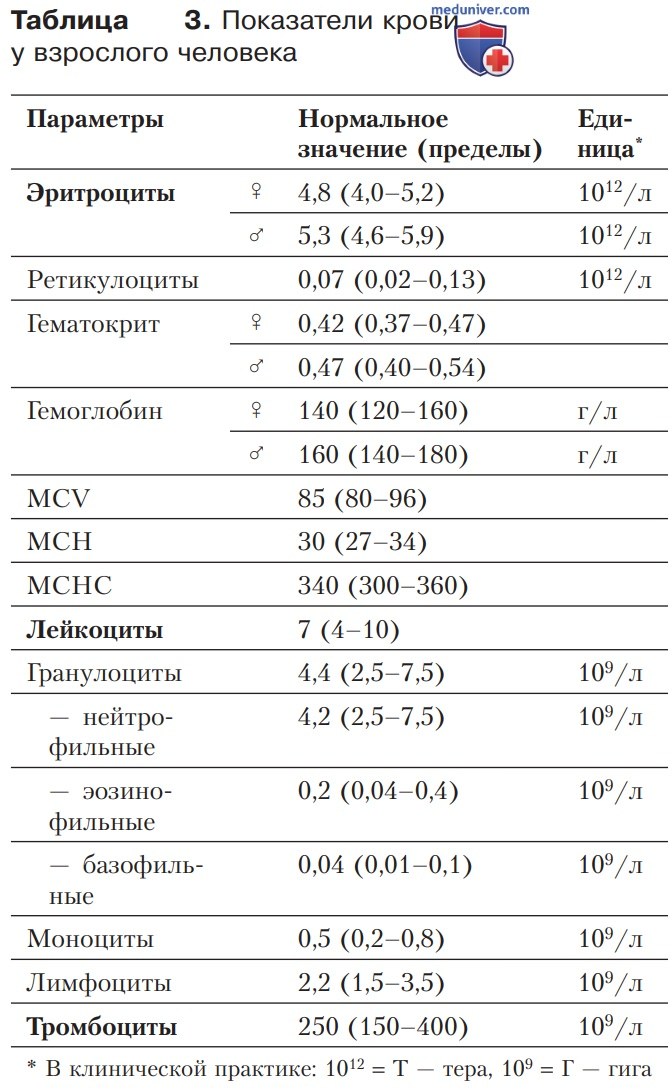
Значение МСНС даже у больных редко отклоняется от нормы (на 300-360 г х 1 л-1).
P.S. Подсчет эритроцитов. Определение числа эритроцитов с помощью микроскопа и счетной камеры в настоящее время практически не производится. Вместо этого для подсчета клеток используют автоматические анализаторы. В этом случае концентрация эритроцитов в разведенной суспензии определяется либо по степени рассеивания проходящего лазерного луча (проточная цитометрия), либо по изменению электрической проводимости при прохождении клеток через тонкую трубочку. Анализаторы рассчитывают гематокрит, MCV, МСН и МСНС.
в) Эритропоэз. Формирование эритроцитов контролируется гормоном эритропоэтином, основным источником которого служат почки; экспрессия гена эритропоэтина усиливается при тканевой гипоксии.
1. Жизненный цикл эритроцитов. Эритроциты образуются в гемопоэтических тканях, т. е. в желточном пузыре (до 6-й недели после зачатия) у эмбриона, у плода — в печени (с 6-й недели и до рождения) и селезенке (с 15-й недели и до рождения) и, наконец (с 18-й недели), в красном костном мозге плоских и коротких костей (почти исключительно со 2-го месяца после рождения).
Среди предшественников эритроцитов различают клетки нескольких стадий дифференцировки и созревания (в том числе КОЭ-Э и эритробласты) от миелоидных стволовых клеток до молодых безъядерных эритроцитов, которые выходят из костного мозга как ретикулоциты (рис. 1).
Эритроциты циркулируют в крови 100-120 дней. Затем они разрушаются фагоцитирующими клетками в костном мозге, печени и селезенке. Примерно 0,8% из 2,5 х 1013 эритроцитов взрослого человека обновляются за 24 ч. Это означает, что образование эритроцитов (эритропоэз) происходит со скоростью 1,6 х 108 эритроцитов в минуту.
2. Регуляция. После кровопотери или при заболеваниях, сопровождающихся снижением продолжительности жизни эритроцитов, скорость эритропоэза может увеличиваться. Эффективным стимулом при этом является снижение парциального давления О2 в ткани (тканевая гипоксия). В таких условиях в плазме можно обнаружить эритропоэтин (Еро) — гликопротеиновый гормон (30 кДа; 165 аминокислот, 40% углеводов), который специфически усиливает эритропоэз.
3. Эритропоэтин образуется прежде всего в почках, а именно в перитубулярных фибробластоподобных клетках. При недостатке О2, например, в результате кровопотери или при нахождении на большой высоте над уровнем моря, увеличивается образование эритропоэтина (рис. 3). В небольших количествах эритропоэтин образуется также в других органах (печени, головном мозге). В эмбриональный период основным местом синтеза этого гормона является печень.

4. HIF-2. Экспрессия гена эритропоэтина стимулируется индуцируемым гипоксией фактором транскрипции 2 (HIF-2), который стабилизируется недостатком О2. HIF-2 и его изоформа HIF-1 активируют множество генов, продукты трансляции которых защищают организм от недостатка О2 и глюкозы (в дополнение к эритропоэтину: фактор роста эндотелия сосудов VEGF, различные гликолитические ферменты и мембранные транспортеры глюкозы).
5. Действие эритропоэтина. Эритропоэтин связывается со специфическими гомодимерными трансмембранными рецепторами (Еро-R) на клетках-мишенях. За счет связывания эритропоэтина с Еро-R активируются внутриклеточные тирозинкиназы, которые стимулируют сигнальные молекулы, предотвращающие запрограммированную гибель (апоптоз) предшественников эритроцитов в костном мозге (рис. 3). Клетки вступают на путь пролиферации и дифференцировки, за счет чего увеличивается число эритробластов, синтезирующих гемоглобин.
Наконец, нормобласты выталкивают свое ядро в окружающее межклеточное пространство и созревают, превращаясь при этом в ретикулоциты. Увеличение концентрации эритропоэтина через 3-4 дня приводит к ретикулоцитозу. В его отсутствие эритроциты не могут образовываться.
6. Другие гормоны. Гормоны щитовидной железы (Т3, Т4) стимулируют продукцию эритропоэтина, андрогенов и соматомединов (инсулиноподобных факторов роста, insulin like growth factors) в костном мозге. Зависимые от пола различия в гематокрите, массе эритроцитов и концентрации гемоглобина в крови мужчин и женщин (см. выше) связаны прежде всего с усилением эритропоэза андрогенами.
7. Ретикулоциты. С помощью прижизненного окрашивания (например, бриллиантовым крезиловым синим или метиленовым синим) можно показать наличие в ретикулоцитах гранулярных или ретикулярных структур (substantia granuloreticulo-filamentosa), состоящих из рибосомной РНК и органелл. Ретикулоциты могут быть крупнее, чем эритроциты. В течение 1-2 дней ретикулоциты теряют свою ретикулярную структуру и созревают в свободные от органелл эритроциты. Число и концентрация ретикулоцитов в крови дают диагностическую информацию об активности эритропоэза.
В норме доля ретикулоцитов составляет 1-1,5% от красных кровяных телец (абсолютные значения: 20-130 х 109 на 1 л).
Подавление эритропоэза ведет к уменьшению числа ретикулоцитов и стимулирует увеличение их размера. В экстремальных случаях доля ретикулоцитов может увеличиваться до 40% от содержания красных телец в крови.
г) Анемия. Недостаток железа вызывает гипохромную микроцитарную анемию, недостаток витамина В12 или фолиевой кислоты — гипохромную макроцитарную анемию; анемии также возникают в результате повышенного гемолиза или первичной недостаточности костного мозга.
1. Содержание железа. Из 3-4 г находящегося в организме железа примерно 70% входят в состав гемоглобина. Железо, высвобождающееся из гема при разрушении старых эритроцитов, связывается в плазме крови гликопротеином трансферрином (общее количество примерно 3 мг), транспортируется в костный мозг и повторно используется для синтеза гемоглобина. В норме насыщение плазмы трансферрином у взрослого человека составляет 20-30%.
Предшественнники эритроцитов (и других клеток) обладают специфическими рецепторами к трансферрину (TfR), с помощью которых они поглощают трансферрин вместе с Fe3+ путем эндоцитоза.
После отщепления Fe3+ комплекс трансферрин-TfR транспортируется назад в мембрану (рециклирование) и свободный от железа трансферрин (апотрансферрин) выходит в межклеточное пространство.
Макрофаги и гепатоциты содержат около 0,7 г железа, связанного с ферритином (до 4500 Fe3+ на молекулу ферритина). В норме организм теряет только 1-2 мг железа в день, которые должны быть возмещены железом из пищи (рис. 4). В среднем в тонком кишечнике (прежде всего в двенадцатиперстной кишке) всасывается около 1,2 мг негемового железа и 0,4 мг гемового железа. Поступление железа из энтероцитов кишечника и макрофагов осуществляется за счет транспортного белка ферропортина.
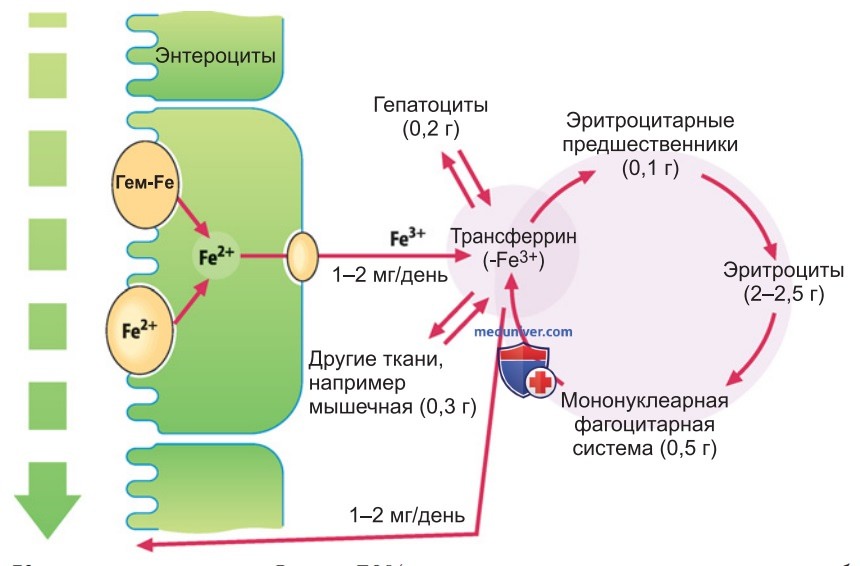
Активность ферропортина подавляется гормоном гепсидином, продуцируемым гепатоцитами. Гепсидин представляет собой белок острой фазы, состоящий из 25 аминокислот, который присоединяется к ферропортину, после чего последний интернализуется и протеолитически деградирует.
2. Анемия, связанная с недостатком железа. Дефицит железа широко распространен (примерно у 40% населения) в развивающихся странах и является основной причиной анемий и в индустриально-развитых странах. При дефиците железа образуются мелкие эритроциты с пониженной массой гемоглобина (гипохромная микроцитарная анемия).
Недостаток железа могут вызывать:
- недостаточное содержание элемента в пище (особенно часто у грудных детей);
- сниженное поглощение железа из пищеварительного тракта (например, при синдроме мальабсорбции);
- хроническая кровопотеря (например, при интенсивных менструальных кровотечениях, а также при язвах или злокачественных опухолях желудочно-кишечного тракта);
- функционально в результате воспалений с повышенным образованием гепсидина (анемия хронических заболеваний).
3. Мегалобластические анемии. Отличительная особенность этих анемий — наличие аномально крупных эритроцитов (мегалоцитов, или макроцитов) и их незрелых предшественников (мегалобластов) в крови или в костном мозге. Причина аномалии — недостаток витамина В12 (пернициозная анемия) или фолиевой кислоты в пище или нарушение их усвоения. Оба витамина необходимы для пролиферации клеток (и синтеза ДНК).
4. Почечная анемия. Недостаток эритропоэтина при хронической почечной недостаточности приводит при отсутствии лечения к нормохромной нормоцитарной анемии. Однако с последней можно успешно бороться путем лечения рекомбинантным эритропоэтином (рчЭПО).
5. Апластическая анемия. Апластические анемии и панцитопении характеризуются тем, что, несмотря на наличие всех веществ, необходимых для кроветворения, гемопоэз в костном мозге снижен. При апластических анемиях происходит уменьшение числа только эритроцитов, при панцитопениях — всех клеток крови, образующихся в костном мозге. Причинами панцитопений могут быть повреждения костного мозга ионизирующими излучениями (при радиотерапии), клеточные яды (цитостатики, бензол и т. д.) или замещение здоровых тканей опухолевыми.
6. Гемолитические анемии. Болезни, при которых происходит интенсивное разрушение эритроцитов (гемолиз), могут вызывать гемолитическую анемию. Эритроциты могут лопаться (аналогично некрозу клеток, содержащих ядра) или гибнуть (аналогично апоптозу клеток, содержащих ядра). При программируемой гибели эритроциты сморщиваются и экспонируют фосфатидилсерин в своей клеточной мембране (эриптоз). Клетки, которые несут фосфатидилсерин на своей мембране, распознаются макрофагами, подвергаются фагоцитозу и разрушаются.
К гемолизу и/или эриптозу приводят также наследственные заболевания: шаровидно-клеточная анемия, серповидно-клеточная анемия и талассемии, а также малярия, сепсис, отравления (в том числе свинцом, медью), аутоиммунные реакции против эритроцитов и несовместимость резус-факторов при фетальном эритробластозе.
P.S. Анемии:
- Патология. Анемия — симптом заболеваний различной природы, а не самостоятельное заболевание. Это понятие относится к снижению (общего) объема циркулирующих эритроцитов (малокровие), в клинической практике оно используется для обозначения пониженной концентрации гемоглобина в крови. При анемии может уменьшаться как число эритроцитов, так и содержание гемоглобина в отдельных эритроцитах.
- Формы. Анемии — следствие врожденной аномалии, недостатка витаминов или железа, недостаточной продукции эритропоэтина, отравления, облучения или воспалительного или неопластического заболевания. Нарушение образования эритроцитов характеризуется низким уровнем ретикулоцитов (< 20 х 109/л). Гемолитические анемии отличаются повышенным числом ретикулоцитов и измененными параметрами оборота гемоглобина (непрямой билирубин ↑, лактатдегидрогеназа сыворотки ↑, гаптоглобин ↓).
- Симптомы. Симптомы хронической анемии обусловлены сниженным снабжением тканей О2. Пациенты страдают от утомляемости, одышки, тахикардии, головной боли и головокружений, у них снижена работоспособность. Кроме того, у пациентов наблюдается бледность кожи и слизистых оболочек. Другие симптомы могут быть связаны с причинами анемии (например, жжение на языке при недостатке витамина В12, желтуха при гемолизе).
После острого кровотечения концентрация гемоглобина в крови сначала остается нормальной. Клинические симптомы при этом определяются прежде всего гиповолемией, в итоге может наступить циркуляторный шок.
д) Метаболическая активность эритроцитов. Зрелые безъядерные эритроциты получают АТФ анаэробным путем в процессе гликолиза; НАД-Н и НАДФ-Н действуют как антиоксиданты.
1. Анаэробный синтез АТФ. Поскольку эритроциты не имеют митохондрий, они зависимы от анаэробного расщепления глюкозы, которую получают через транспортер глюкозы 1 (GLUT 1). Наряду с АТФ, необходимым для активного транспорта ионов через мембрану эритроцитов, в ходе гликолиза образуются такие восстановители как НАД-Н (восстановленный никотинамидадениндинуклеотид) и — в пентозофосфатном цикле — НАДФ-Н (восстановленный никотинамидадениндинуклеотидфосфат).
2. Востановители. НАД-Н используется, помимо прочего, для восстановления постоянно образующегося из-за самоокисления (Fe2+ → Fe3+) метгемоглобина (гемиглобина) до гемоглобина, способного транспортировать О2. НАДФ-Н используется для восстановления присутствующего в эритроцитах глутатиона. Легко окисляемый глутатион, в свою очередь, защищает от окисления внутриклеточные белки с SH-группами, в частности молекулы гемоглобина и белки мембраны эритроцитов.
P.S. Недостаток Г6Ф-ДГ. Недостаток в эритроцитах глюкозо-6-фосфатдегидрогеназы (Г6Ф-ДГ) — наиболее частый наследственный ферментативный дефект. Он сцеплен с Х-хромосомой. Заболевание проявляется в периодических эпизодах гемолиза, которые могут быть вызваны инфекциями или приемом определенных лекарств (сульфонамидов) и питательных веществ (конских бобов).
е) Биофизические свойства. Эритроциты могут изменять свою форму и объем в зависимости от осмотических условий.
1. Проницаемость. Мембрана эритроцитов представляет собой эластичную молекулярную мозаику, состоящую из белков, глико- и липопротеидов и липидных участков. Проницаемость мембраны эритроцитов (толщиной около 10 нм) для анионов примерно в 1 млн раз больше, чем для катионов.
2. Мембранные белки. Эритроциты проходят по капиллярам, ширина просветов которых меньше, чем их собственный диаметр (7,5 мкм). С внутренней стороной мембраны эритроцитов расположены структурные белки, которые обеспечивают им способность к легкой деформации. Особенно важными структурными белками являются спектрин, состоящий из двух длинных параллельно расположенных скрученныз гибких цепей и способный образовывать олигомеры, актин и протеин 4.1.
Сеть из этих белков прикрепляется к мембране или к специальным белкам-мостикам, таким как протеин 4.2, или анкирин, который соединяет спектрин с белком полосы 3 (Cl-/HCO3--обменннк) на мембране эритроцитов. Генетически обусловленный дефект одного из этих белков может приводить к внутри- или внесосудистому гемолизу, например при наследственном эллипсоцитозе или сфероцитозе (круглоклеточной анемии).
3. Осмотические свойства. В гипертонической среде эритроциты теряют воду. За счет образования складок мембран эритроциты приобретают формы, напоминающие шиповатые плоды дурмана (рис. 2). В гипотонической среде эритроциты, напротив, набухают и их форма приближается к шаровидной (сфероциты). В итоге мембрана разрывается и гемоглобин высвобождается (осмотический гемолиз).
Примерно 50% эритроцитов здорового человека гемолизируют в гипотоническом водном растворе при концентрации NaCl 4,3 г/л.
При определенных дефектах мембраны эритроцитов или синтеза гемоглобина осмотическая устойчивость снижается и может развиться гемолитическая анемия.
P.S. Серповидно-клеточная анемия:
- Причины и патология. Причина серповидно-клеточной анемии — замена глутамата в 6-м положении β-цепи гемоглобина на валин. У гомозиготных носителей гена серповидно-клеточной анемии до 50% нормального гемоглобина A (HbA), который представляет собой тетрамерную молекулу, имеющую по две α- и две β-глобулиновые цепочки, замещены на гемоглобин S (HbS).
Растворимость дезоксигенированного HbS составляет лишь около 4% от растворимости HbA. При отдаче О2 (дезоксигенации) гемоглобином, присутствующим в эритроцитах в виде концентрированного раствора, HbS образует волокнистый осадок, который деформирует эритроциты, превращая их в серповидные клетки.
- Последствия. Из-за плохой способности к изменению формы серповидные эритроциты могут закупоривать мелкие сосуды. Следствиями могут быть, в частности, почечная недостаточность, инфаркт миокарда и т. д. Пациенты страдают прежде всего от кислородной недостаточности (гипоксии, например при низком давлении О2 в самолете).
P.S. Гемолизирующее действие некоторых видов мыла, сапонина и синтетических моющих средств основывается на снижении поверхностного натяжения между водной и липидной фазами мембраны. Липиды эмульгируются и выходят из мембраны. Из-за брешей в мембранах клетки подвергаются гемолизу. Органические растворители, такие как хлороформ, эфир и другие, также вызывают выход липидных компонентов из мембраны и тем самым гемолиз.
- Эритроциты. Большая часть форменных элементов крови представлена эритроцитами. Эти двояковогнутые диски содержат высококонцентрированный раствор гемоглобина, необходимый для транспорта О2, но не содержат органелл. Благодаря сложной сети ассоциированных с мембраной белков эритроциты могут деформироваться и проходить через узкие капилляры. Они циркулируют в крови 100-120 дней, после чего подвергаются фагоцитозу.
Стареющие эритроциты постепенно заменяются молодыми, которые созревают как потомки гемопоэтических стволовых клеток и клеток-предшественников в эритропоэтических тканях.
Для пролиферации и дифференцировки эритроцитарных предшественников необходим эритропоэтин — гликопротеиновый гормон, образующийся преимущественно в почках.
- Картина красной крови включает сведения о концентрации гемоглобина, эритроцитов и ретикулоцитов в крови, а также о гематокрите. Для дифференциальной диагностики анемий достаточно знать средний объем (MCV) и массу гемоглобина (МСН) в отдельных эритроцитах.
- Анемии возникают при недостаточном образовании или избыточной потере эритроцитов. Первое имеет место при недостатке железа, витамина В12, фолиевой кислоты или эритропоэтина (при хронической почечной недостаточности).
Химиотерапия вызывает гипопролиферативную анемию. При кровотечениях различают острые и хронические анемии. Гемолитические анемии могут иметь наследственный характер (ферментативные или мембранные дефекты).
Видео урок общий анализ крови в норме и при болезни
- Рекомендуем ознакомиться далее "Лейкоциты - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 26.5.2025