

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Транспорт кислорода (О2) в крови - с точки зрения физиологии человека
Оглавление статьи:- Насыщение крови кислородом
- Зависимость связывания O2 от значения его парциального давления
- Молекулярные механизмы присоединения O2
- Модуляторы аффинности гемоглобина к О2
- Резюме
- Список использованной литературы
а) Насыщение крови кислородом. Способность крови к принятию O2 растет с концентрацией в ней гемоглобина; 1 г гемоглобина может присоединить максимум 1,34 мл O2 (число Хюфнера).
1. Максимальное насыщение O2. Максимальное значение способности раствора, содержащего гемоглобин, к поглощению O2 называется кислородной емкостью. Тетрамерная молекула гемоглобина (Hb) может привязывать максимум 4 молекулы O2:
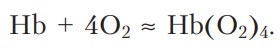
Исходя из того что объем 1 моля идеального газа составляет 22,4 л, 1 моль гемоглобина (64 500 г) может присоединить 89,6 л O2 (4 * 22,4 л). На каждый 1 г гемоглобина приходится, таким образом, 1,39 мл O2.
На практике при выполнении анализа крови получаются несколько более низкие значения, так как гемоглобин частично переходит в метгемоглобин и карбоксигемоглобин, который более не способен присоединять O2. Поэтому при расчетах пользуются числом Хюфнера: условно считают, что 1 г гемоглобина присоединяет максимально 1,34 мл O2.
2. Кислородная емкость крови. С помощью числа Хюфнера, исходя из концентрации гемоглобина, может быть рассчитана кислородная емкость крови. Например, у человека с концентрацией Hb, равной 150 г/л, кислородная емкость составляет 201 мл O2 на 1 л. В связанном с гемоглобином виде может транспортироваться приблизительно в 70 раз больше O2, чем в случае обычного физического растворения.
Кислородная емкость крови представляет собой важный показатель выносливости организма. У страдающего анемией пациента с концентрацией гемоглобина 100 г на 1 л крови может транспортироваться лишь вдвое меньшее количество O2 в равном объеме крови по сравнению с пациентом с эритроцитозом, у которого наблюдается вдвое более высокая концентрация гемоглобина (рис. ниже).

Количество физически растворенного O2 в крови этих пациентов обычно идентично и крайне мало.
3. Содержание O2 в артериальной и венозной крови. Содержание в крови химически связанного кислорода зависит от ее текущей насыщенности кислородом (% HbO2). С учетом числа Хюфнера содержание O2 [O2] рассчитывается так:
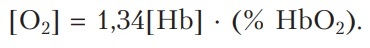
Из указанных выше значений насыщенности кислородом артериальной (98%) и (усредненно) венозной (75%) крови можно получить количество химически связанного кислорода. Следовательно, количество кислорода в артериальной и смешанной венозной крови составляет соответственно около 200 и 150 мл O2 на 1 л. Артериовенозная разница в содержании O2 (avDO2) составляет 50 мл O2 на 1 л.
Это служит основанием утверждать, что обычно только 25% от всего содержащегося в крови O2 переходит в ткани при прохождении по капиллярам.
В отдельных органах степень насыщенности крови может очень сильно различаться. Кроме того, во время тяжелой физической работы потребление O2 иногда поднимается настолько, что avDO2 в этом случае может составлять более 100 мл O2 на 1 л.
б) Зависимость связывания O2 от значения его парциального давления. Насыщенность крови кислородом зависит от его парциального давления; расположение в системе координат, имеющей S-образный вид кривой связывания гемоглобином кислорода, характеризуется напряжением полунасыщения, т. е. таким парциальным давлением O2, при котором насыщенность гемоглобина кислородом составляет 50% (P50).
1. Кривая связывания O2. Насыщенность молекул гемоглобина кислородом зависит от парциального давления кислорода (PO2). В случае полного отсутствия O2 (аноксия) гемоглобин дезоксигенизируется (насыщенность O2 = 0%). С растущим значением PO2 насыщенность кислородом возрастает (рис. 1).
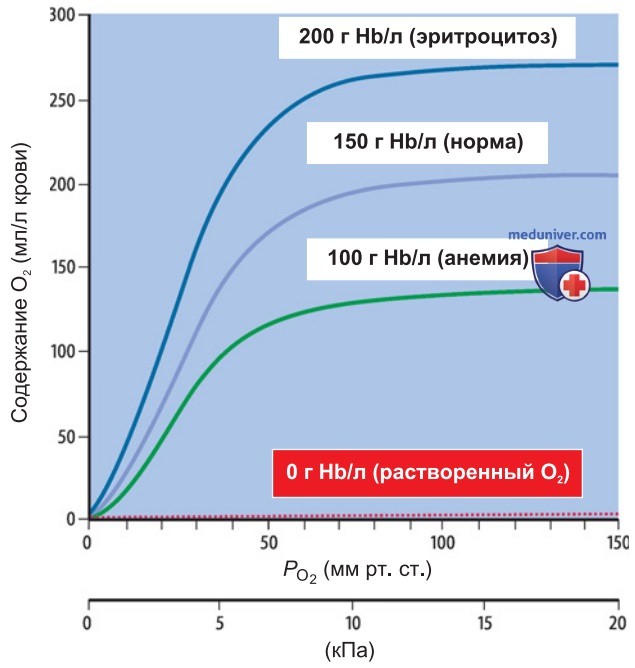
Кривая связывания O2 кровью имеет характерный S-образный вид. При PO2, равном 90-100 мм рт. ст. (12-13 кПа), гемоглобин достигает 95%-й насыщенности кислородом. При артериальном PO2 в 60 мм рт. ст. (8 кПа) насыщенность гемоглобина кислородом все еще превышает 90%. Состояние, при котором кривая связывания кислорода в ее верхней части уплощесительно высоком его парциальном давлении, когда существует сильный диффузионный поток O2 из капилляров в окружающие их ткани.
В смешанной венозной крови PO2 составляет у людей в состоянии покоя в среднем 40 мм рт. ст. (5,3 кПа), что соответствует 75%-й насыщенности кислородом (рис. 2A).
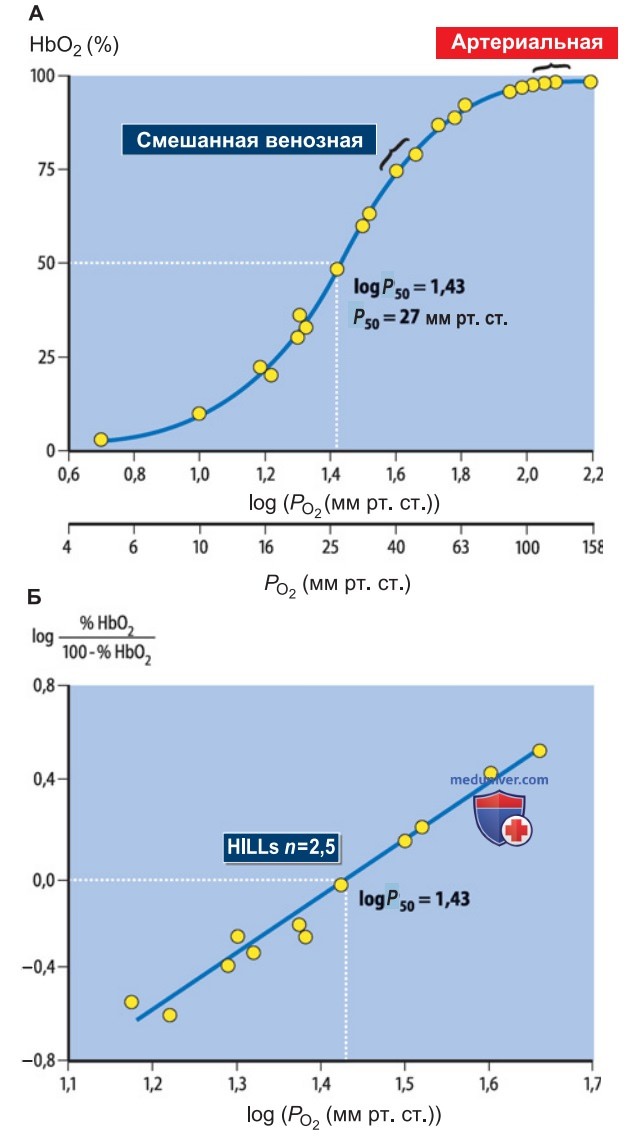
2. Аффинность к O2. Вид кривой связывания гемоглобином O2 может меняться как в здоровом организме, так и в условиях развития патологии. Для того чтобы это количественно оценить, мерой аффинности гемоглобина к кислороду при анализах крови выбрана величина P50, которая показывает, при каком значении PO2 с гемоглобином оказывается связано 50% O2 (рис. 2A).
У взрослого человека P50 при стандартных условиях (pH 7,40; PCO2 40 мм рт. ст. и 37 °C) составляет почти 27 мм рт. ст. (3,6 кПа). P50 зависит от аминокислотной последовательности в цепях гемоглобина и различается у видов животных.
P.S. Коэффициент Хилла. В диагностических и научных целях иногда требуется оценить крутизну кривой связывания гемоглобином кислорода в ее средней части. Для этого используют логарифмическое соотношение оксигемоглобина (% HbO2) к дезоксигемоглобину (100 — % HbO2) относительно к полученному значению PO2. Так получают график Хилла, представляющий собой прямую, угол наклона которой обозначается как n (рис. 2Б). Коэффициент Хилла n в человеческой крови составляет 2,52,8.
При нарушении взаимодействий субъединиц гемоглобина ход кривой становится более плоским и n принимает значения <2,5.
в) Молекулярные механизмы присоединения O2. Оксигенация вызывает конформационные изменения в молекуле гемоглобина и отдачу ионов Н+.
1. Кооперативное взаимодействие субъединиц гемоглобина. S-образный вид кривой связывания O2 подразумевает, что присоединение одной молекулы O2 к гемоглобину облегчает присоединение каждой последующей молекулы. Присоединение O2 происходит кооперативно, т. е. все четыре субъединицы гемоглобина взаимодействуют друг с другом. В дезоксигемоглобине в основе этих взаимодействий лежат электростатические силы, т.е. образуются нековалентные (ионные) связи.
α-Субъединицы связываются посредством своих полярных групп не только друг с другом, но и прилегающими β-субъединицами. В процессе оксигенации связи утрачиваются, один α/β-димер поворачивается на 15° относительно другого.
Такие аллостерические эффекты могут приобретать функциональную значимость, т. е. локальные конформационные перестройки могут влиять на функциональное состояние других, сильно удаленных участков тетрамерной молекулы.
2. T- и R-структуры. Дезоксигемоглобин из-за наличия в нем в общей сложности восьми нековалентных связей представляет собой более жесткую и напряженную молекулу, чем оксигемоглобин. Четвертичная структура дезоксигемоглобина называется T-структурой (от англ. tense — напряженный), а четвертичная структура оксигеоглобина -R-структурой (от англ. relaxed — расслабленный).
Переходу T-структуры в R-структуру способствует присоединение О2 к Fe2+ в группе гема. Из-за стерических затруднений, вызванных отталкиванием проксимальных гистидинов и атомов азота в протопорфирине, Fe2+ в дезоксигемоглобине примерно на 0,06 нм выступает над остальной частью гема. При оксигенации атом железа оказывается в одной плоскости с основной частью протопорфирина (рис. 3). В результате проксимальные гистидины утрачивают несколько нековалентных связей и глобиновые цепочки становятся более подвижными.
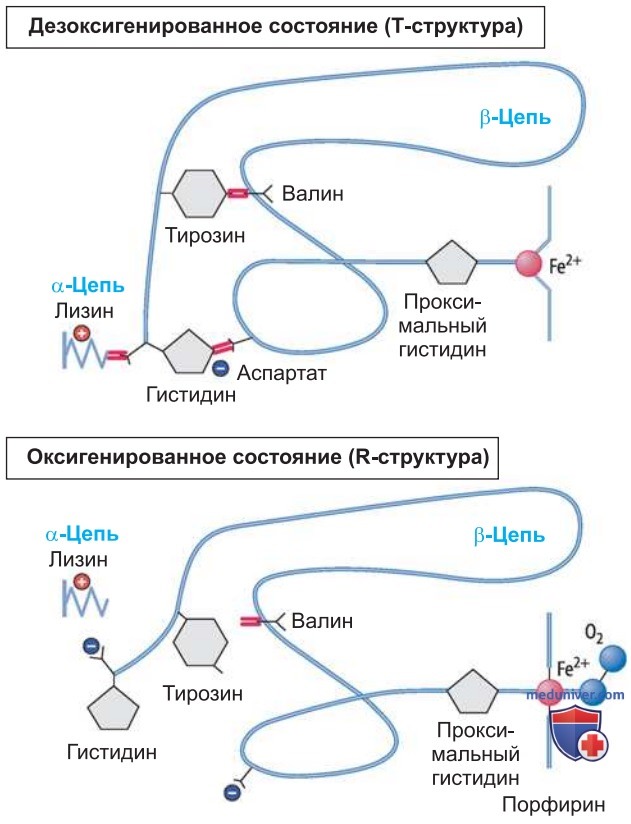
S-образный вид кривой соединения О2 основывается на том, что первой молекуле О2 требуется для своего присоединения разорвать наибольшее количество нековалентных связей по сравнению с каждой последующей. Присоединение О2 к HbA происходит в последовательности α1, α2, β1 и лишь в последнюю очередь β2, так как группы гема α-цепей легче раскрываются, чем группы гемма β-цепей.
3. Влияние оксигенации на буферные свойства гемоглобина. Гемоглобин обладает хорошей буферной емкостью, так как его концентрация в крови высока и в нем велика доля гистидина. Дезоксигемоглобин служит несколько лучшим буфером (акцептором протонов), чем оксигемоглобин. Это обеспечивается уже упомянутыми остатками гистидина и терминально расположенными аминокислотами, отрицательный заряд на которых при переходе в Т-структуру дезоксигемоглобина возрастает, благодаря чему ионы H+ притягиваются сильнее.
Альтернативой для свободных NH2-групп является образование карбаминов с поступающим CO2. Свойство гемоглобина при отдаче О2 одновременно присоединять Н+ и CO2 носит название эффекта Христиансена-Дугласа-Холдейна или эффекта Холдейна. Верно и обратное: при оксигенации гемоглобин отдает протоны (0,7 моль Н+ на 1 моль О2).
4. Образование метгемоглобина. При некоторых условиях, отклоняющихся от нормальных физиологических, в процессе оксигенации в группе гемма может произойти реакция окисления, в результате чего двухвалентный ион железа превратится в трехвалентный. Гемоглобин при этом становится гемиглобином, или в соответствии с более широко употребляемым в клинической практике названием, метгемоглобином. В норме метгемоглобина в человеческой крови содержится очень мало (<1%).
Но при недостаточной активности работающей в эритроцитах метгемоглобинредуктазы (например, у маленьких детей и пациентов, находящихся под влиянием определенных медикаментов, прежде всего производных анилина) метгемоглобин в крови может накапливаться. Это вредно для организма, так как располагающийся в гемме Fe3+ не способен связывать О2, и аффинность к О2 остающегося гемоглобина (с Fe2+) оказывается ненормально повышенной.
Терапевтически это может быть компенсировано назначением медикаментов-восстановителей (фенотиазина и др), в тяжелых случаях необходимо делать переливание крови.
г) Модуляторы аффинности гемоглобина к О2. Аффинность эритроцитов к О2 уменьшается 2,3-дифосфоглицератом, протонами, CO2 и повышением температуры.
1. Положение кривой присоединения O2 к гемоглобину. Позиция кривой присоединения гемоглобином О2 отражает компромисс между его способностью поглощать О2 в легких и затем отдавать его в периферических тканях. Перемещение кривой в системе координат вправо означает уменьшение аффинности гемоглобина к O2. При этом поглощение O2 в легких затрудняется, а отдача O2 в ткани, напротив, облегчается.
Перемещение кривой в системе координат влево имеет противоположный эффект. Если при рассмотрении этой S-образного вида кривой присоединения O2 обратить особое внимание на ее уплощенную верхнюю часть (рис. 2A), то становится очевидным, что изменение аффинности к O2 крови — при нормально высоком артериальном PO2 — прежде всего воздействует на способность к отдаче O2.
2. Действие 2,3-дифосфоглицерата. Аффинность гемоглобина к O2 в его чистом растворе гораздо выше, чем в крови. В эритроцитах в довольно высоких концентрациях содержится 2,3-дифосфоглицерат (2,3-BPG; 4-5 ммоль/л, т. е. эквимолярно по отношению к тетрамерам гемоглобина). Это фосфатное соединение, образующееся в шунте Раппопорта гликолиза, скрепляет обе p-цепи дезоксигемоглобина, фиксируя таким образом T-структуру.
В связи с этим аффинность эритроцитов к O2 понижается (P50 составляет 18 мм рт. ст. в лишенных 2,3-BPG эритроцитах, в то время как в нормальной богатой 2,3-BPG крови P50 равняется 27 мм рт. ст.), за счет чего отдача O2 кровью в ткани облегчается.
Так как первые реакции гликолиза зависят от pH (прежде всего реакция, осуществляемая фосфофруктокиназами), алкалоз (например, из-за развивающегося респираторного алкалоза в результате пребывания на большой высоте над уровнем моря или повышенной базовой доли дезоксигемоглобина) приводит к увеличению концентрации 2,3-BPG, а ацидоз, напротив, к уменьшению концентрации 2,3-BPG.
3. Эффект Бора. Значение pH крови может отклоняться от нормы во всей кровеносной системе или локально падать в отдельных тканях и органах (например, в работающей мускулатуре при образовании молочной кислоты). Возрастание концентрации Н+ и PCO2 резко уменьшает аффинность крови к O2 (рис. 4), в результате чего облегчается передача O2 в ткани. Так как CO2 гидратируется до углекислоты, которая диссоциирует на ионы бикарбоната и водорода, влияние CO2 сказывается через приток ионов Н+.
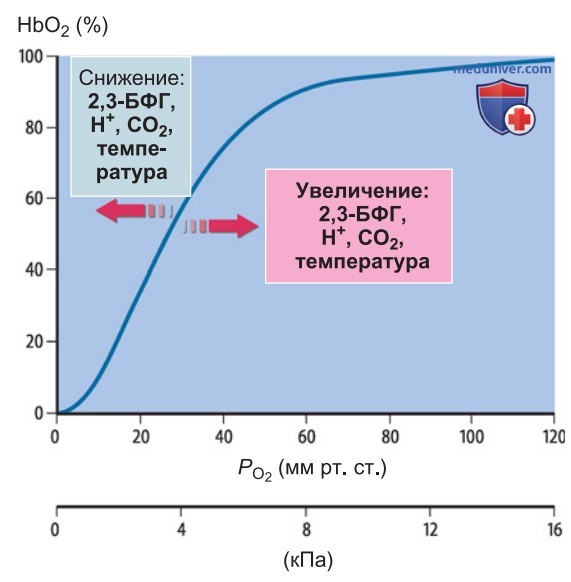
Для них характерно предпочтительное связывание дезоксигемоглобина (они прежде всего присоединяются к гистидину по 146 позиции β-цепи, который способен образовывать неполярные связи с концевыми NH2-группами α-цепи) и стабилизирование при этом T-структуры гемоглобина. CO2 связывается отчасти также непосредственно с аминогруппами гемоглобина (образование карбаматов; см. ниже). Наличие зависимости связывания O2 с гемоглобином от pH и от pCO2 называется эффектом Бора.
4. Влияние температуры. Между аффинностью гемоглобина к O2 и температурой существует обратная зависимость (рис. 4). Так же как в случае эффекта Бора, на эту зависимость могут влиять локальные и более общее эффекты. Локальные отклонения в значениях температуры крови (например, ее повышение в работающей мускулатуре или ее понижение в покровах тела) воздействуют исключительно на отдачу O2, в то время как интенсивность оксигенации в легких, до тех пор пока средняя температура тела сохраняется постоянной, остается на прежнем уровне.
Как уже отмечалось, из сигмовидного хода кривой присоединения O2 следует, что и без того сильная аффинность крови к O2 зависит от степени ее насыщенности O2. Таким образом, из-за низкой аффинности к O2 при повышении температуры у больных лихорадкой отдача O2 облегчается, что идет им на пользу, так как объемы их энергетического оборота, а вследствие этого и потребности в O2, возрастают. Противоположная реакция тоже имеет клиническое значение.
Возросшая аффинность гемоглобина к O2 при низкой температуре тела сопровождается затруднениями в отдаче O2.
Гипоксия в тканях, развивающаяся у пациентов с обморожением и сама по себе, отчасти обусловлена высокой аффинностью крови к O2.
5. Отравление оксидом углерода. В организме в очень небольших количествах постоянно возникает оксид углерода (СО), а именно при деградации гема (процесс изложен в учебниках по биохимии). СО, бесцветный и лишенный запаха газ, связывается с гемом аналогично O2. Аффинность гемоглобина к CO даже приблизительно в 250 раз сильнее его аффинности к O2. В норме примерно до 1% всего гемоглобина в крови пребывает в связанном с CO виде.
Так как СО образуется при (неполном) сгорании органических соединений, у курильщиков доля связанного с ним гемоглобина возрастает (5-15% от всего гемоглобина). Хроническое повышение концентрации связанного с CO гемоглобина вредно для здоровья, критический же ее подъем свыше 40% при вдыхании СО может угрожать жизни (в частности, при попытках самоубийства с использованием выхлопных газов). Если сайт связывания с Fe2+ в геме занимает СО, молекула О2 уже не может туда присоединиться.
Кроме того, присоединение СО вызывает переход гемоглобина в R-структуру, в результате чего кривая присоединения О2 для еще не заблокированных сайтов гемоглобина смещается относительно координат влево. Вследствие этого парциальное давление О2 в капиллярах тканей еще более опускается.
Так как связанный с СО гемоглобин имеет светло-красный цвет, отравление СО, как правило, можно распознать по розовому цвету крови, особенно если оно сопровождается комой и респираторным параличом. Пострадавшему можно спасти жизнь, подключив его к аппарату искусственного дыхания, подающего О2 с высоким парциальным давлением в смеси, для того чтобы вытеснить СО, связанный с Fe2+ в гемоглобине.
P.S. Измерение насыщенности артериальной крови O2 in vivo. Насыщенность крови О2 можно измерять in vivo в режиме реального времени при помощи пульсоксиметрии. Датчик, состоящий из двух испускающих свет диодов, расположенных на противоположном его конце, закрепляется на месте измерения (мочке уха или подушечке пальца). Величина поглощения света капиллярами в тканях определяется попеременно для 660 нм (красный цвет) и 940 нм (инфракрасный диапазон).
Так как красный свет интенсивнее поглощается деоксигенированной кровью, чем оксигенированной (и напротив, инфракрасный свет интенсивнее поглощается оксигенированной кровью), насыщенность крови О2 может быть определена компьютером. Пульсоксиметрия используется прежде всего для обследования спортсменов, в пульмонологии и при интенсивной терапии.
Фотометрические показания пульсоксиметра могут расходиться с более сложными измерениями количества О2 в крови непосредственно в пробирке в конечном итоге и давать завышенную величину степени насыщения крови О2, если в крови имеется высокая доля HbCO или метгемоглобина.
P.S. Искусственные переносчики O2. При некоторых тяжелых формах анемии спасти жизнь пациенту может трансфузия эритроцитов. Во многих регионах медицинские учреждения не располагают достаточным количеством концентратов эритроцитов. Кроме того, при переливании чужой крови существует риск последующего заражения возбудителями каких-либо заболеваний.
Поэтому уже довольно давно ведутся клинические испытания «искусственно» созданных используемых в терапевтических целях переносчиков О2. Они разделяются на две группы: модифицированные растворы гемоглобина и перфторуглеродные эмульсии.
Основные проблемы, возникающие при терапевтическом использовании свободного гемоглобина, заключаются в его высокой аффинности к О2 и короткой продолжительности пребывания в сосудах, а также развитии побочных эффектов — выраженной вазоконстрикции, повреждении почек и аутоиммунных реакций. Чтобы компенсировать эти недостатки, молекулы гемоглобина полимеризуют или микроинкапсулируют.
Перфторуглероды — это синтетические фторированные углеродистые соединения, способные физически растворять относительно большие объемы О2. Так как они синтезируются химическим путем, при использовании этого метода нет опасности занесения в кровь возбудителей заболеваний. Показаниями к инфузии перфторуглеродов могут служить периоперативная гемоделюция или необходимость возмещения критической кровопотери.
P.S. Острая и хроническая горная болезни:
- Острая высотная болезнь. На большой высоте парциальное давление О2 в воздухе — вследствие этого и в альвеолярной газовой смеси, и в артериальной крови — существенно падает (например, на высоте 3000 м оно составит 56 мм рт. ст., если у организма не было времени на акклиматизацию). При слишком быстром подъеме недостаточно быстрое приспособление дыхательной системы в ответ на недостаток О2 в тканях и недостаточную скорость выведения жидкости из организма могут служить причинами развития острой горной болезни.
По степени тяжести различают две формы острой горной болезни.
• Симптомами обычной формы являются сильное сердцебиение, одышка в состоянии покоя, головная боль, рвота и расстройства сна. Острой горной, или высотной, болезнью страдают примерно 40% всех туристов, которые оказываются на высоте свыше 3000 м.
• В тяжелых случаях развивается высокогорный отек мозга и/или легких. Высокогорный отек легких обусловлен несколькими факторами, прежде всего индуцируемым гипоксией приливом крови в мозг и повышенной проницаемостью капилляров. У страдающих отеком мозга альпинистов появляются нарушения в координации движения (атаксия), а в некоторых случаях — помутнение рассудка и потеря сознания.
Для патогенеза высокогорного отека легких существенны индуцируемые гипоксией сокращение сосудов легких и нарушения микрокровообращения. Помимо этого он проявляется в кашле, усиливающейся одышке (диспноэ) и кровавой пене изо рта.
- Хроническая горная болезнь. Жители высокогорий (> 3500 м) Центральной и Южной Америки зачастую страдают хронической горной болезнью. Она возникает главным образом из-за обусловленного гипоксией расширения эритроцитов и уменьшения величины сопротивления сосудов в легких. Типичные признаки — излишне долгое пребывание на большой высоте над уровнем моря, высокое давление внутри легких, сердечная недостаточность и тромбозы. Если пострадавшие перемещаются в более низинные регионы, их состояние улучшается.
д) Резюме. Транспорт О2 в крови
Кислородная емкость крови возрастет соответственно концентрации гемоглобина. Присоединение О2 к четырем атомам Fe2+ в молекуле гемоглобина зависит от парциального давления кислорода; кривая присоединения O2 крови имеет S-образный вид, для нее характерно достижение насыщения.
Аффинность эритроцитов к O2 уменьшается при:
• понижении pH (эффект Бора);
• повышении парциального давления CO2;
• повышении температуры;
• избытке 2,3-дифосфоглицерата.
Дезоксигемоглобин проявляет лучшие буферные свойства по сравнению с оксигемоглобином (эффект Холдейна).
Оксид углерода (СО) ядовит по причине того, что O2 не способен вытеснить его из гемоглобина.
Видео физиология газообмена в легких и транспорта газов кровью - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Транспорт углекислого газа (СО2) в крови - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 16.7.2025