

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Транспорт углекислого газа (СО2) в крови - с точки зрения физиологии человека
Оглавление статьи:а) Формы транспорта. CO2 возникает в больших количествах в ходе метаболизма как конечный продукт окисления углеродсодержащих соединений; в эритроцитах он гидратируется до углекислоты, которая диссоциирует до HCO3- и Н+.
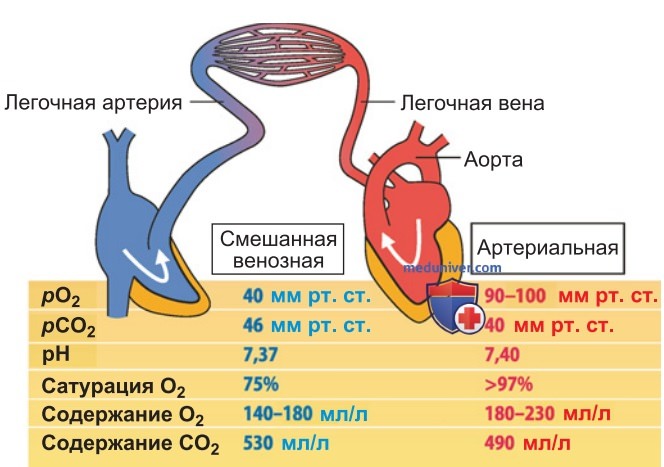
1. Диффундирование CO2 в кровь. Парциальное давление CO2 в артериальной крови, втекающей в периферические капилляры в тканях, составляет 40 мм рт. ст. (5,3 кПа). В окружающих их клетках парциальное давление CO2 достигает более высоких значений, так как CO2 постоянно образуется как конечный продукт окисления углеродсодержащих соединений (в среднем приблизительно 16 моль/24 ч).
Следуя градиенту давления физически растворенные молекулы CO2 диффундируют в капилляр. Значения парциального давления CO2 в венозной части капиллярной сети варьируют в зависимости от локальной скорости метаболизма и интенсивности кровообращения между 40 и 60 мм рт. ст. (5,3-8,0 кПа). Парциальное давление CO2 в смешанной венозной крови (в правом предсердии, рис. ниже) составляет в среднем 46 мм рт. ст. (6,1 кПа).
2. Гидратация. Лишь незначительная часть CO2 остается физически растворенной в крови. Преобладающая часть в эритроцитах сразу гидратируется до углекислы (H2CO3), а затем диссоциирует до ионов дикарбоната (HCO3-) и водорода (Н+):
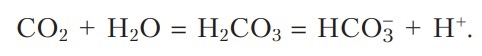
Реакция гидратации без помощи катализатора протекает крайне медленно. В крови она тем не менее идет очень быстро, так как в эритроцитах имеется достаточно фермента карбоангидразы (или карбоангидротазы) (рис. 1). Большинство ионов HCO3-, которые возникают в эритроцитах, диффундируют в плазму крови.
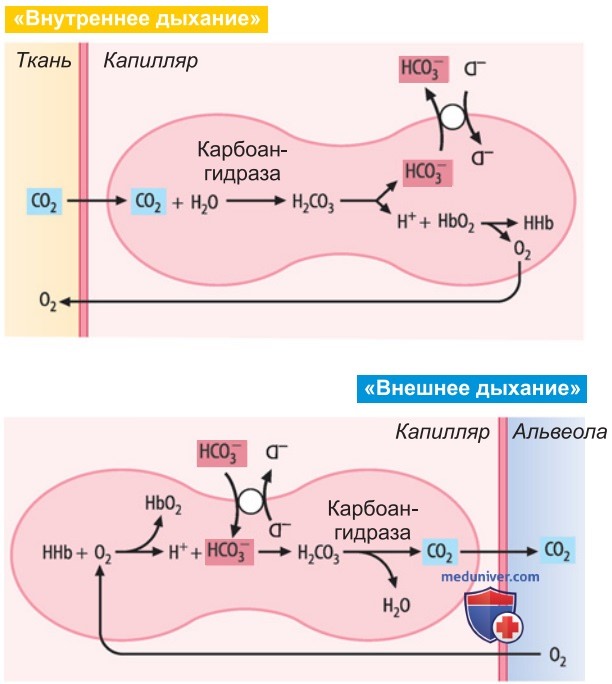
Из плазмы крови в эритроциты в обратном направлении перетекают ионы Cl- (перенос хлорида, или сдвиг Гамбургера). Он осуществляется ионным обменником AE1 (прежде называвшимся третьим связывающим белком).
Значительная часть избытка Н+, возникающего при диссоциации углекислоты, поглощается выступающим здесь в роли буфера гемоглобином. Величина pH в эритроцитах (pH 7,2) практически не падает благодаря их высокой буферной емкости, основывающейся главным образом на высокой концентрации в них гемоглобина (330 г/л) и его многочисленных молекул гистидина.
Кроме того, буферной роли гемоглобина способствует происходящая в то же время отдача им O2 в ткани, так как дезоксигемоглобин обладает гораздо лучшими свойствами по сравнению с оксигемоглобином, в том числе из-за уменьшенной доли диссоциировавших имидазольных колец в гистидинах (эффект Холдейна; см. выше).
3. Образование карбамата. Примерно 5% CO2 в крови пребывает в форме карбаминов, преимущественно в виде карбаминогемоглобина:
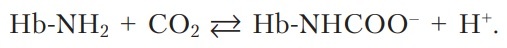
Дезоксигемоглобин связывает большее количество CO2, чем оксигемоглобин, так как при дезоксигенации становятся вакантными дополнительные NH2-группы.
4. Передача CO2 в легочных капиллярах. При прохождении крови сквозь легкие упомянутые реакции протекают в обратном направлении из-за наличия градиента CO2 между протекающей по легочным капиллярам крови (PCO2 46 мм рт. ст.) и альвеолярным пространством (PCO2 40 мм рт. ст.).
HCO3 диффундирует из плазмы крови в эритроциты и связывается там с Н+ в углекислоту, которая распадается затем на H2O и CO2 (рис. 1).
Реакции способствует доступность ионов Н+, которые отдаются гемоглобином при его оксигенации. Оксигенация требует, кроме того, высвобождения CO2 из карбаминогемоглобина. Обычно PCO2 в крови во время прохождения по легким становится равным альвеолярному PCO2.
При тяжелых нарушениях диффузии (например, при воспалении легких), напротив, высокий альвеоло-капиллярный градиент PCO2 сохраняется.
5. Количественный аспект. В смешанной венозной крови транспортируется примерно 530 мл CO2 на литр. Артериальная кровь содержит в среднем еще примерно 480 мл CO2 на литр. 90% от этого количества пребывает в виде двууглекислой кислоты, 5% — в виде карбаминогемоглобина и 5% — просто в растворенном виде.
Относительное распределение вклада каждой из этих составляющих в легочном обмене CO2 в итоге несколько иное: 85% от выдыхаемого через легкие CO2 происходит из пула двууглекислой кислоты, 10% — из карбаминогемоглобина («оксилабильный карбамат») и 5% — из физически растворенного CO2.
б) Кривая связывания CO2. В противоположность транспорту О2 для транспорта CO2 не характерно насыщение.
1. Кривая связывания CO2 коренным образом отличается от кривой связывания O2 (рис. 2). С одной стороны, для нее характерен гиперболический рост. С другой стороны, для процесса связывания CO2 не характерно насыщение. По этой причине кривая связывания CO2 откладываться может не в процентной доле от максимума, а только непосредственно в единицах концентрации (мл CO2/л или ммоль/л крови).
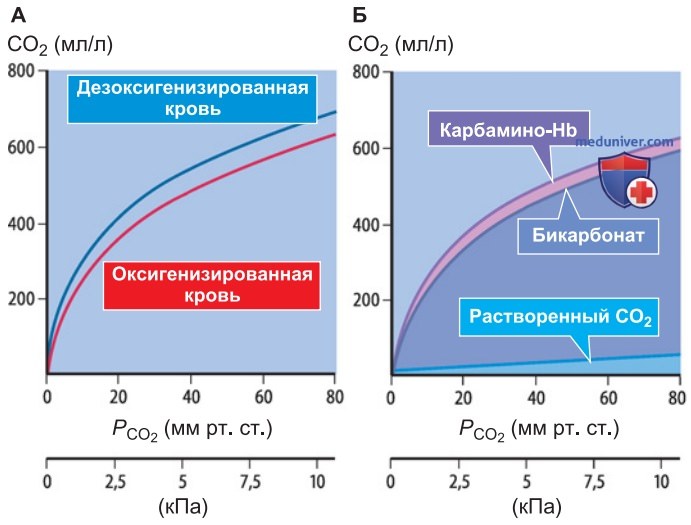
При одинаковом PCO2 дезок-сигенизированная кровь может принимать большее количество CO2, так как дезоксигенизированный гемоглобин может служить более эффективным буфером для поглощения ионов Н+, образующихся при диссоциации углекислоты. Согласно закону действующих масс равновесие реакции должно смещаться при этом в направлении образования Н+ и HCO3-.
Кроме того, дезоксигемоглобин лучше, чем оксигемоглобин, способен к связыванию CO2 в карбамат. На рис. 2Б представлено, как с ростом парциального давления CO2 все более увеличивается количество образовывающегося HCO3- (и физически растворенного CO2). Лишь образование карбамина поддерживается на соответствующем насыщению уровне и остается при высоком PCO2 постоянным.
в) Резюме. Транспорт CO2 в крови. Образующийся в ходе обмена веществ CO2 поступает в кровь в растворенном виде. В эритроцитах затем происходят следующие процессы:
• при участии карбоангидразы CO2 гидратируется до углекислоты;
• углекислота немедленно диссоциирует до Н+ и HCO3-;
• протоны поглощаются выступающим в роли буфера гемоглобином;
• HCO3- в обмен на Cl- диффундирует в плазму крови;
• кроме того, CO2 образует с аминогруппами гемоглобина карбаматы.
При передаче CO2 в легких все эти процессы протекают в противоположном направлении.
Для кривой связывания CO2 кровью, которая отображает количество растворенного газа от его парциального давления, нехарактерно насыщение. Содержание CO2 в артериальной крови составляет примерно 480 мл, а в смешанной венозной примерно 530 мл в каждом литре крови.
Видео физиология газообмена в легких и транспорта газов кровью - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Зародышевый газообмен - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 16.7.2025