

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Спинальная ноцицептивная система - с точки зрения физиологии человека
Оглавление статьи:- Функционирование ноцицептивных спинальных нейронов
- Подсистемы ноцицептивных нейронов спинного мозга
- Резюме
- Список использованной литературы
а) Функционирование ноцицептивных спинальных нейронов. Ноцицептивные нейроны спинного мозга образуют проводящие пути, восходящие к таламусу и стволу мозга, и/или спинальные рефлекторные дуги.
1. Восходящие пути. Эти пути активируют таламокортикальную систему, которая отвечает за осознанное болевое ощущение. Важнейшим восходящим путем является путь боковых столбов спинного мозга, который в спинном мозге переходит на противоположную сторону. Он состоит из спиноталамического и спиноретикулярного путей (рис. ниже).
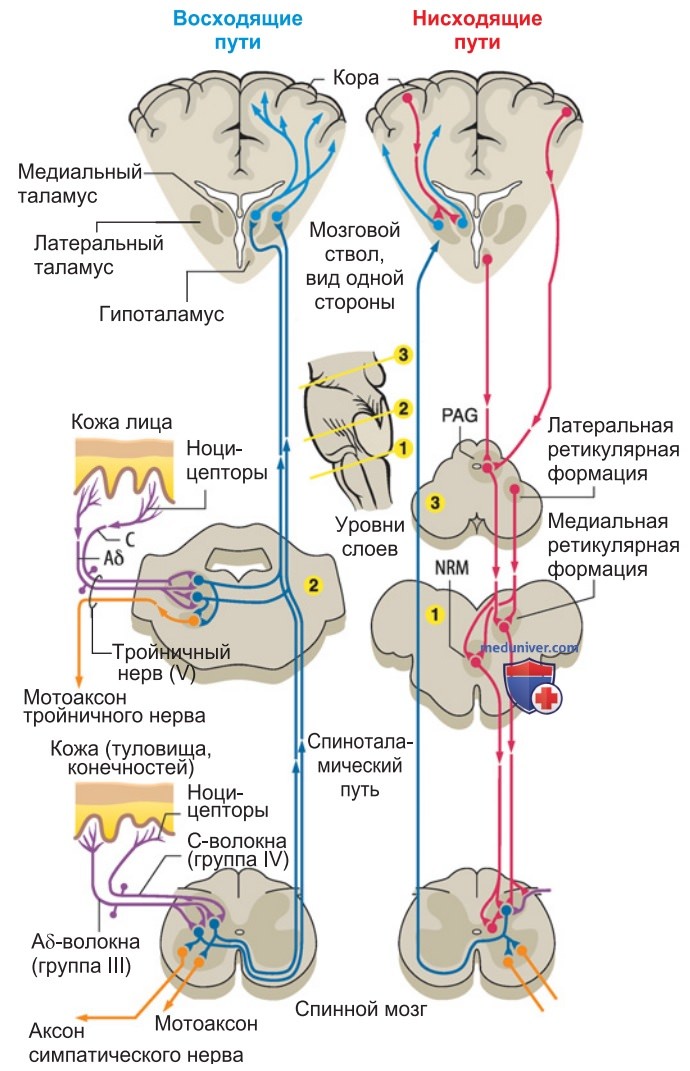
Разрушение пути боковых столбов спинного мозга приводит к нарушениям болевой и температурной чувствительности на противоположной стороне ниже места повреждения. Кроме того, путь боковых столбов спинного мозга активирует нервные клетки ствола мозга. Задние столбы спинного мозга также могут содержать восходящие аксоны ноцицептивных клеток, которые прежде всего активируются ноцицепторами внутренних органов. Соответственно дальнейшая передача информации осуществляется через ядро тройничного нерва.
2. Моторные рефлексы. Мотонейроны возбуждаются ноксическими стимулами через ноцицептивные интернейроны, что приводит к запуску моторных рефлексов (рис. выше).
Они лежат в основе моторного компонента боли. Некоторые из этих рефлексов организованы спинально, другие опосредуются через супраспинальные рефлекторные дуги. К типичным спинальным рефлексам относится рефлекс отдергивания конечности — быстрое сгибательное движение, позволяющее убрать руку, ногу или лапу от повреждающего стимула.
При этом тормозятся антагонистические ипсилатеральные мотонейроны мышц-разгибателей, что может приводить к запуску перекрестного рефлекса экстензоров: если наступить на гвоздь, то поврежденная нога отдернется, в то время как в контралатеральной ноге разгибательные мышцы активируются сильнее, чтобы стабилизировать положение тела. Благодаря интеграции спинальных и супраспинальных нейронных сетей осуществляются сложные моторные реакции, например вынужденное положение поврежденных конечностей.
3. Вегетативные рефлексы. Ноксические стимулы могут запускать вегетативные рефлексы, которые представляют собой вегетативный компонент боли. Эти рефлексы находятся под супраспинальным контролем ствола мозга. Однако они могут быть реализованы в модифицированной форме даже после перерезки спинного мозга (спинализация).
- Ноксическое раздражение кожи запускает скоординированные действия симпатической нервной системы, которые сходны с вегетативными функциями в оборонительном поведении.
- Ноксические стимулы в глубоких соматических и висцеральных областях вызывают скорее вегетативные и нейроэндокринные реакции, которые могут участвовать в принятии вынужденного (щадящего) положения.
б) Подсистемы ноцицептивных нейронов спинного мозга. Ноцицептивные нейроны спинного мозга после конвергенции входящей ноцицептивной информации формируют подсистемы, которые опосредуют передачу поверхностной и глубокой боли.
1. Рецептивные поля ноцицептивных нейронов спинного мозга. Рецептивное поле клетки спинного мозга — это зона, при стимуляции которой можно возбудить нейрон. Поскольку аксоны многих ноцицепторов конвергируют на одной ноцицептивной клетке спинного мозга, рецептивное поле нейрона спинного мозга больше, чем рецептивное поле ноцицептора. Ноцицептивные нейроны, получающие афферентацию из дистальных участков конечностей, имеют меньшие рецептивные поля, чем те, которые получают афферентацию от туловища и проксимальных областей конечностей.
Многие ноцицептивные нейроны спинного мозга активируются не только ноцицепторами, но и низкопороговыми первичными афферентами. Эти нейроны спинного мозга реагируют на ноксические стимулы с низкой частотой импульсации. С помощью частоты импульсации они кодируют интенсивность ноксических стимулов.
2. Модель конвергенции ноцицептивных нейронов. Многочисленные ноцицептивные клетки спинного мозга получают конвергентные входы от ноцицепторов кожи (рис. 1А). Подсистема отвечает за формирование ощущения поверхностной боли. Возникновение глубокой боли немного сложнее. Ноцицепторы из глубоких тканей (суставы, мускулатура) формируют синапсы на клетках спинного мозга, которые дополнительно получают входы от ноцицепторов кожи (рис. 1Б). Эти клетки возбуждаются ноксической стимуляцией глубоких тканей и кожи.
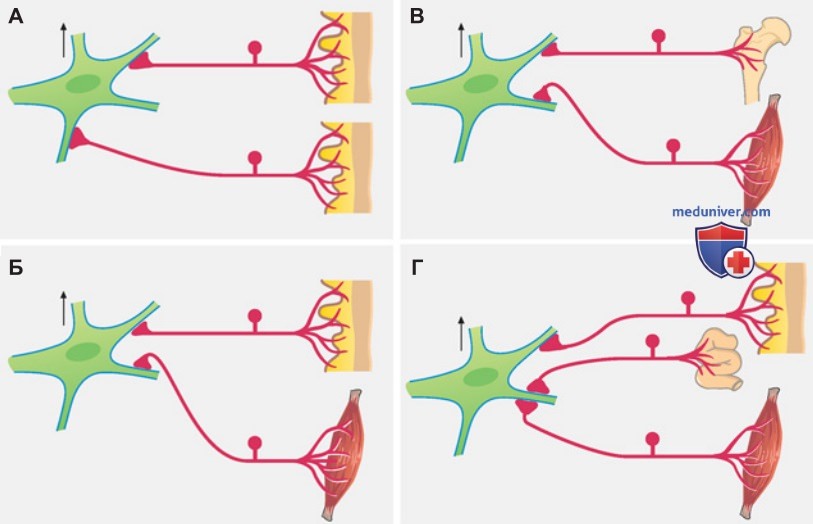
Другие клетки спинного мозга, напротив, активируются исключительно ноцицепторами глубоких тканей, они специфичны для глубокой соматической боли (рис. 1В). Все нейроны спинного мозга, которые активируются висцеральными ноцицепторами, дополнительно получают афферентацию ноцицепторов кожи и/или глубоких тканей (рис. 1Г). Выраженная конвергенция ноцицепторов из различных органов к общим нейронам спинного мозга имеет большое клиническое значение, потому что боли могут восприниматься диффузно и обширно, несмотря на процесс заболевания.
Особенно часто висцеральные боли «передаются» в соматические зоны (рис. 2).
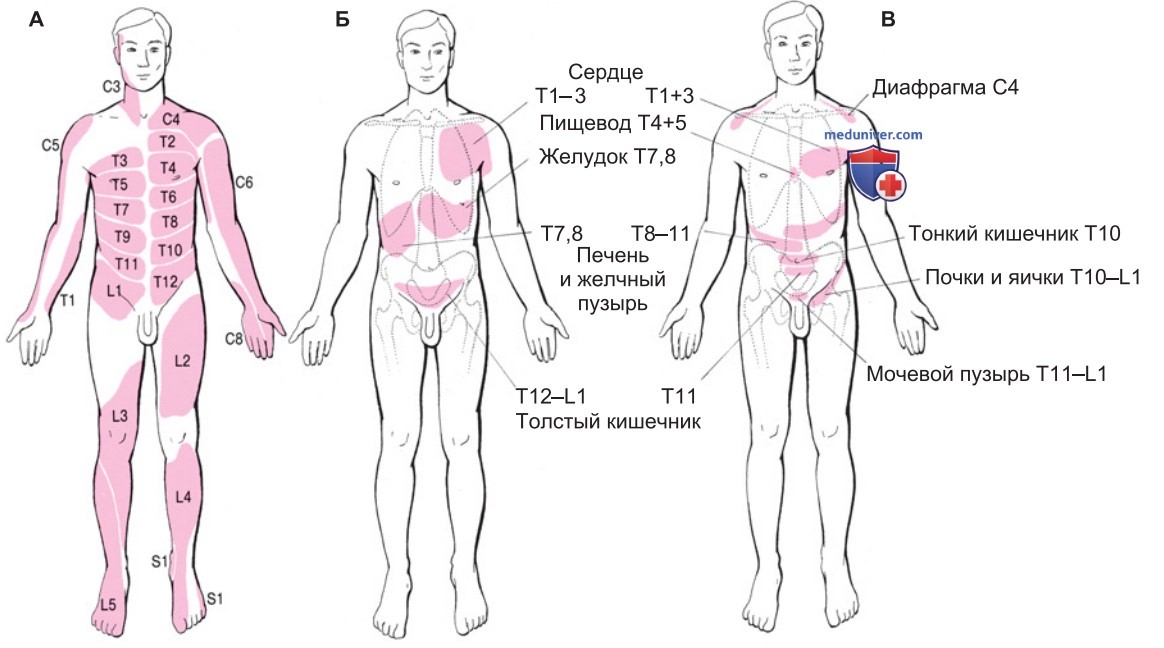
P.S. Отраженная боль. Именно при висцеральном заболевании боль часто ощущается не там, где возникает, но передается в соматическую область, афференты которой заканчиваются в тех же сегментах, что и висцеральные. Эта сегментарная организация проявляется в виде дерматомов на коже; рис. 2А. При ишемии сердца (стенокардии или инфаркте миокарда) боль часто ощущается в левой руке. Очевидно, мозг не может однозначно определить, активируются ли соответствующие нейроны спинного мозга соматическими ноцицепторами из области руки или же висцеральными ноцицепторами из области сердца.
Зоны Геда (по имени невролога Геда) описывают соматические участки, в которые преимущественно передается боль при заболеваниях висцеральных органов (рис. 2Б и В).
3. Медиаторы и рецепторы ноцицептивной синаптической передачи в спинном мозге. Синаптическое возбуждение ноцицептивных клеток спинного мозга осуществляется за счет высвобождения глутамата; нейропептиды и другие медиаторы модулируют синаптическую передачу.
4. Возбуждающие и тормозные синапсы в ноцицептивных рецепторах. На рис. 3 показан спинальный нейрон, в котором синаптически оканчиваются низкопороговый механорецептор (Аβ-волокна), ноцицептор (С-волокна) и тормозный интернейрон. Механорецепторы и ноцицепторы вырабатывают глутамат в своих синаптических окончаниях. Пептидергические ноцицепторы дополнительно высвобождают в синаптическую щель возбуждающие нейропептиды — субстанцию Р и CGRP.
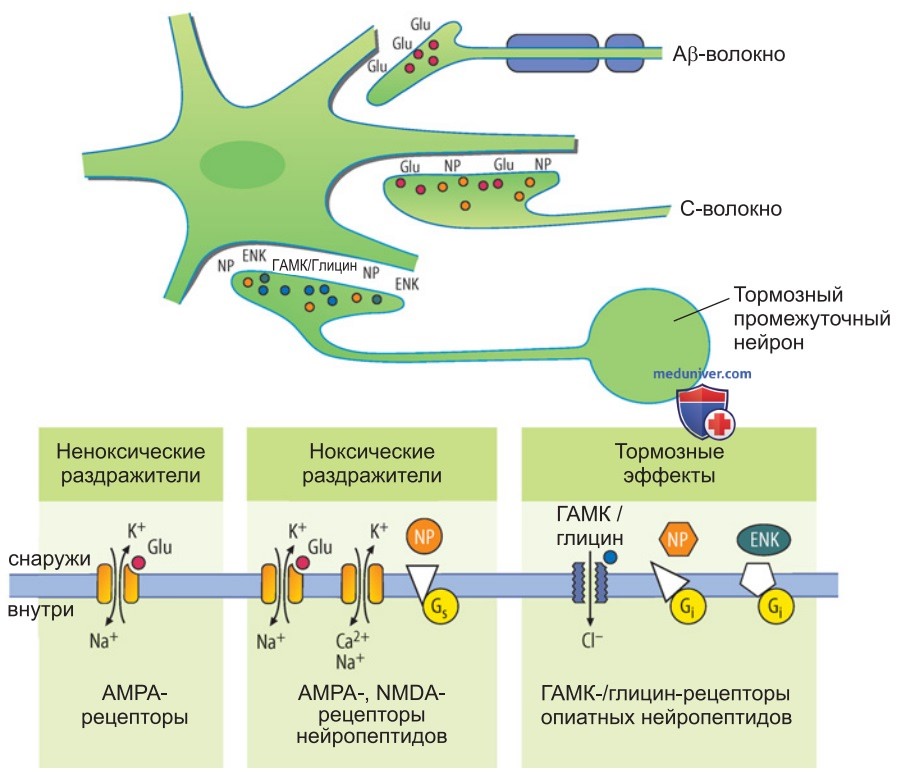
Тормозные интернейроны вырабатывают в своих синапсах ГАМК и/или глицин или тормозящие нейропептиды, в основном опиоидные пептиды, такие как энкефалин (рис. 3). Постсинаптическая мембрана клетки спинного мозга обладает рецепторами для всех этих медиаторов (рис. 3, внизу). Насколько сильно нейрон спинного мозга будет реагировать на ноксический стимул (т. е. сколько потенциалов действия генерируется), зависит от того, насколько сильны возбуждающие и тормозные входы.
5. Действие глутамата. Глутамат активирует на постсинаптической мембране ионотропные N-метил-D-аспартат-рецепторы NMDA-рецепторы), ионотропные не-NMDA-рецепторы (АМРА-и каинатные рецепторы) и метаботропные рецепторы глутамата. При действии неноксических стимулов, активирующих только механорецепторы, глутамат, как правило, активирует только не-NMDA-рецепторы, прежде всего АМРА-рецепторы, поскольку возникающая деполяризация нейронов недостаточна для открывания NМDА-каналов.
При действии ноксических стимулов NМDА-рецепторы открываются, так как высвобождение глутамата и нейропептидов при раздражении ноцицепторов вызывает такую сильную деполяризацию нейрона спинного мозга, что это снимает блокирование NМDА-рецепторов магнием («магниевая пробка»).
6. Нейропластические процессы, опосредуемые активацией NМDА-рецепторов. Если несколько сильных ноксических стимулов быстро следуют один за другим, активация каналов NМDА-рецепторов при каждом последующем стимуле приводит к все более сильной реакции нейрона спинного мозга (феномен «взвинчивания», или wind-up). Это кратковременная форма центральной сенсибилизации. При более длительной центральной сенсибилизации NМDА-рецепторы, кроме того, играют значительную роль. Активация метаботропных рецепторов глутамата, кроме того, способствует развитию нейропластических процессов.
7. Воздействие других медиаторов. Рецепторы возбуждающих нейропептидов (субстанция Р, CGRP) усиливают глутаматергическую синаптическую передачу. Связывание этих нейропептидов с рецепторами вызывает усиление действия глутамата через активацию G2-белков. Активация рецепторов ГАМК, глицина, тормозных нейропептидов (например, эндогенных опиоидов) действует на возбуждающие процессы противоположным образом. Рецепторы аминергических медиаторов (серотонина, норадреналина и т.д.) опосредуют эффект тонического нисходящего торможения.
в) Резюме. Спинальная ноцицептивная система. Спинальная ноцицептивная система возбуждает супраспинальные нейроны в стволе мозга и в таламокортикальной системе через восходящие пути, а через ноцицептивные интернейроны активирует мотонейроны и нервные клетки автономной нервной системы. Ноцицептивные нейроны в спинном мозге и ядре тройничного нерва получают конвергентные ноцицептивные входы от одного или нескольких органов (важная основа передачи боли).
Они возбуждаются глутаматом, воздействующим на NМDА- и не-NMDA-рецепторы. Синаптическая передача модулируется нейропептидами и аминергическими медиаторами.
Видео проводящие пути болевой и температурной чувствительности
- Рекомендуем ознакомиться далее "Таламокортикальная ноцицептивная система и эндогенные системы контроля боли - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 21.2.2025