

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Периферическая ноцицептивная система - с точки зрения физиологии человека
Оглавление статьи:- Структура и свойства ответа ноцицепторов
- Механизмы трансдукции в ноцицепторах
- Эфферентная функция ноцицепторов
- Резюме
- Список использованной литературы
а) Структура и свойства ответа ноцицепторов. Ноцицепторы состоят из некорпускулярных (свободных) чувствительных окончаний и медленно проводящих сигнал аксонов; в здоровых тканях они реагируют только на ноксические механические, термические и химические раздражители, воздействующие на их рецептивное поле.
1. Чувствительные нервные окончания в ткани. Ноцицептивные окончания представляют собой тонкие немиелинизированные нервные волокна без каких-либо структурных особенностей. Они частично покрыты шванновскими клетками (рис. 1А). В окончаниях происходит трансдукция (в данном случае преобразование ноксических стимулов в электрические потенциалы).
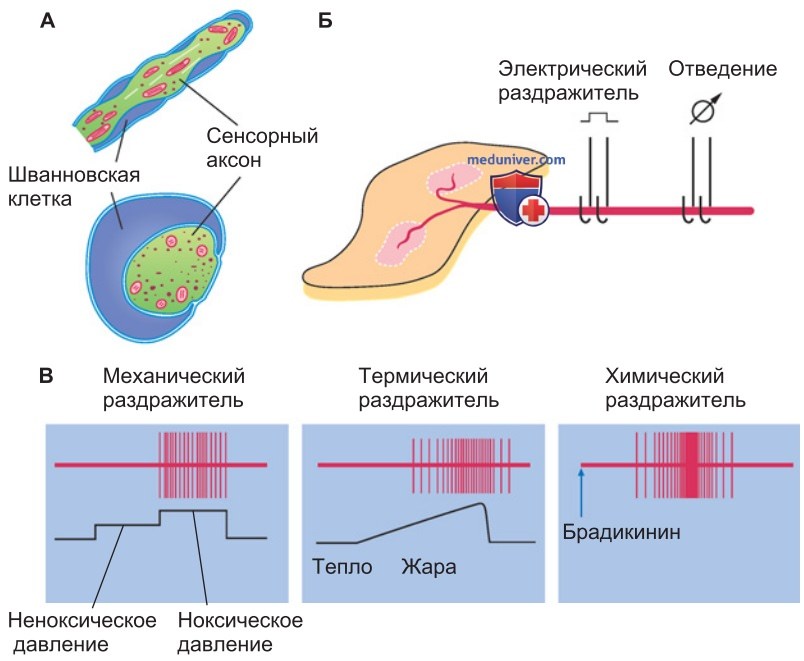
2. Аксоны. Большинство ноцицепторов имеют немиелинизированные аксоны (волокна C-типа, скорость проведения <2,5 м/с, в большинстве случаев — около 1 м/с). Некоторые ноцицепторы имеют тонкие миелинизированные аксоны (волокна Aδ-типа, скорость проведения 2,5-30 м/с). В Aδ-волокнах потенциал действия возникает в первом перехвате Ранвье, у С-волокон место трансформации (преобразования генераторного потенциала в потенциал действия) до сих пор неизвестно.
3. Рецептивное поле ноцицептора. На рис. 1Б показан ноцицептор с двумя рецептивными полями (розовые участки) в коже. Рецептивное поле является зоной, из которой можно возбудить нервное волокно ноксическими стимулами. В области рецептивного поля находится чувствительное окончание. На рис. 1В представлены реакции полимодального ноцицептора на механические, термические и химические раздражители, которые воздействуют на его рецептивное поле.
4. Порог возбуждения ноцицепторов. В здоровой ткани ноцицепторы возбуждаются только интенсивными стимулами. Исходя из этого, их называют высокопороговыми рецепторами и противопоставляют низкопороговым рецепторам, которые возбуждаются неноксическими раздражителями в физиологическом диапазоне (например, осязательные, тепловые и холодовые рецепторы).
5. Полимодальные ноцицепторы. Большинство ноцицепторов полимодальны, поскольку как ноксические механические стимулы (например, сильное давление или сдавливание), так и ноксические термические стимулы (температура > 43 °C и экстремальные холодовые раздражители) вместе с химическими стимулами вызывают в них генерацию потенциалов действия (рис. 1В). Волокна обладают механизмами трансдукции для всех этих модальностей.
Наряду с полимодальными существуют также ноцицепторы, которые реагируют только на одну модальность, например механоноцицепторы.
6. Немые ноцицепторы. Данная подгруппа ноцицепторов включает чувствительные нервные волокна, которые нельзя возбудить в нормальных условиях ни механическими, ни термическими раздражителями. Часть этих ноцицепторов хемочувствительны.
б) Механизмы трансдукции в ноцицепторах. Возбуждение ноцицепторов ноксическими раздражителями опосредовано активацией ионных каналов и рецепторных белков в чувствительном нервном окончании.
Чувствительные нервные окончания в ткани не доступны для изучения с применением микроэлектродов. Многие из предполагаемых механизмов трансдукции тем не менее представлены в клеточном теле ноцицепторов. Поэтому оно служит моделью чувствительного окончания.
На рис. 2 показаны ионные каналы и рецепторы в мембране чувствительного окончания; однако следует отметить, что значительная часть данных была собрана в клеточных телах нейронов, т. е. в клетках ганглиев заднего корешка спинного мозга.
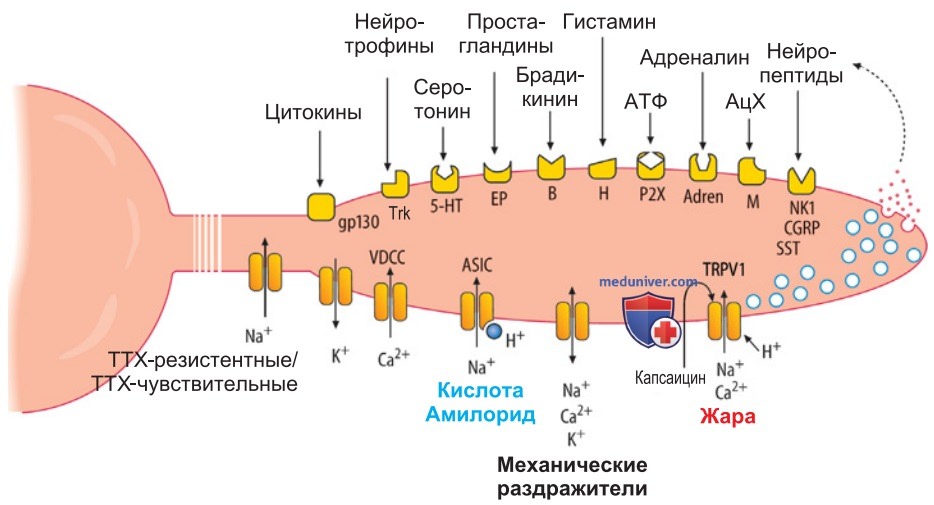
1. Трансдукция ноксических механических стимулов. Предполагается, что механические стимулы открывают катионный канал в мембране и тем самым деполяризуют окончание (рис. 2). Поскольку канал еще не был идентифицирован молекулярно, точный механизм открывания неизвестен.
2. Трансдукция тепловых стимулов. Важной молекулой для восприятия тепловых стимулов является ваниллоидный рецептор подтипа 1 из семейства «transient receptor potential», называемый TRPV1-рецептор (рис. 2). TRPV1-рецептор представляет собой катионный канал, который открывается при воздействии тепловых стимулов, и поэтому считается одной из молекул теплопередачи. Он активируется веществом капсаицин, содержащимся в перце, и вызывает типичную боль от ожога при употреблении этой пряности. Открывание рецептора TRPV1 вызывает входящий ионный ток, который деполяризует нейрон. Каким образом тепловые стимулы открывают канал, еще неизвестно.
P.S. Рецептор TRPV1 и другие ионные каналы семейства. TRP между тем были клонированы. Предположительно, все термочувствительные нейроны имеют на своей мембране молекулы трансдукции семейства TRP. Рецептор TRPV2 в ноцицепторах открывается при экстремально высоких температурах > 50 °C. Рецептор TRPA2, возможно, служит молекулой трансдукции для ноксических холодовых стимулов. Неноксическое ощущение тепла и холода, вероятно, также опосредовано каналами семейства TRP.
3. Хемочувствительность ноцицепторов. В верхней части ноцицептора на рис. 2 показаны рецепторы медиаторов, которые экспрессируются в чувствительном окончании (обратите внимание, что не все ноцицепторы располагают всем спектром этих рецепторов; они гетерогенны по своей хемочувствительности). Через рецепторы тканевые медиаторы, например такие воспалительные медиаторы, как брадикинин и простагландины, активируют и/или сенсибилизируют ноцицептивные окончания. Многие из представленных рецепторов (например, рецепторы простагландина) связаны с G-белками.
При связывании лиганда образуются вторичные мессенджеры, которые способствуют открыванию ионных каналов. Некоторые рецепторы (например, рецепторы серотонина) непосредственно связаны с ионными каналами.
4. Ионные каналы, чувствительные к кислотам. Для хемочувствительности также важны проницаемые для натрия ионные каналы, которые открываются при низких значениях рН (ASIC, acid sensing ion channel, рис. 2, нижняя сторона чувствительного окончания). Воспалительные экссудаты часто имеют низкие значения рН.
5. Тетродотоксин-(ТТХ-)-чувствительные и ТТХ-резистентные потенциалзависимые натриевые каналы. В мембране аксона на рис. 2 представлены два различных типа натриевых каналов. Оба они отвечают за проведение потенциала действия. Именно ноцицепторы содержат очень много ТТХ-резистентных натриевых каналов, в то время как у большинства других нервных волокон натриевые каналы чувствительны к ТТХ.
P.S. Местные анестетики. Блокада потенциалзависимых натриевых каналов является основным механизмом действия местных анестетиков. Офтальмолог Карл Колер в 1884 г. обнаружил, что попадание кокаина в глаз вызывает местное обезболивание. Год спустя кокаин впервые применили для анестезии нервов, что дало возможность выполнить инвазивную операцию без общего наркоза (впервые общий наркоз в 1844 г. использовали с применением веселящего газа, в 1846 г. был введен в использование эфир, в 1847 г. — хлороформ; до сих пор механизм действия общих анестетиков не вполне ясен).
Поскольку кокаин вызывает наркотическую зависимость, было необходимо найти альтернативу. В 1905 г. был введен прокаин, в 1944 г. — лидокаин, два структурно похожих на кокаин вещества, но не вызывающих зависимость. Лидокаин является не только очень эффективным местным анестетиком, но и антиаритмиком, используемым для борьбы с желудочковой экстрасистолией и тахикардией. Потенциалзависимые натриевые каналы блокируются тетродотоксином (ТТХ) — ядом рыбы фугу. Некоторые типы натриевых каналов (Nav1.8 и Nav1.9) устойчивы к ТТХ.
в) Эфферентная функция ноцицепторов. Ноцицепторы вызывают нейрогенное воспаление через высвобождение пептидов в ткани.
1. Нейрогенное воспаление. При раздражении ноцицепторов в иннервируемой ими ткани нередко происходят локальные изменения кровотока и проницаемости сосудов. Поскольку такие симптомы обусловлены нейронным влиянием, говорят о нейрогенном воспалении. Эта эфферентная функция обусловлена высвобождением различных веществ из периферических нервных окончаний (например, субстанции Р и пептида, связанного с геном кальцитонина) и способствует развитию многих воспалительных изменений ткани.
2. Взаимодействие с иммунной системой. Наряду с вазодилатацией и увеличением проницаемости сосудов, высвобождение нейропептидов из ноцицепторов влияет на деятельность тучных клеток. Таким образом, нервная система может взаимодействовать с иммунной системой.
г) Резюме. Периферическая ноцицептивная система. Периферическая ноцицептивная система состоит из ноцицепторов, которые иннервируют различные органы. Ноцицепторы в свою очередь состоят из некорпускулярных (свободных) немиелинизированных чувствительных окончаний и тонких медленно проводящих аксонов, которые могут быть миелинизированы или немиелинизированы (волокна Аδ- или С-типа соответственно). Ноцицепторы относятся к высокопороговым рецепторам и поэтому возбуждаются повреждающими (ноксическими) стимулами.
Большинство из них полимодальны и обладают механизмами трансдукции для ноксических механических, термических и химических раздражителей. Трансдукция основывается на активации ионных каналов и рецепторов в мембране чувствительного окончания. Ноцицепторы, кроме того, обладают эфферентной функцией, поскольку влияют на иннервируемую ими ткань посредством высвобождения медиатора.
- Рекомендуем ознакомиться далее "Спинальная ноцицептивная система - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 21.2.2025