

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Химический контроль дыхания - с точки зрения физиологии человека
Оглавление статьи:- Периферические или артериальные хеморецепторы
- Кривые ответных изменений концентрации газов
- Центральная хеморецепция
- Резюме
- Список использованной литературы
а) Периферические или артериальные хеморецепторы. К дыхательному центру в medulla oblongata от хеморецепторов в артериях поступает информация об отклонениях в концентрации газов в артериальной крови.
Отклонения концентрации газов в артериальной крови воздействуют на респираторные нейроны и посредством этого влияют на процесс дыхания. В дыхательный центр в medulla oblongata информация о концентрации CO2, O2 и Н+-ионов в крови поступает от периферических хеморецепторов. Наряду с этим в стволе мозга имеются и свои (центральные) хемочувствительные зоны (см. ниже).
1. Рецепторы О2 представляют собой клетки I типа в каротидных (glomera carotica) и аортальных тельцах (glomera aortica). Тельца расположены в местах переплетения сосудов и кровоснабжаются от маленьких боковых ветвей находящихся рядом крупных артерий. Они кровоснабжаются лучше органов в нашем организме (интенсивность кровоснабжения составляет свыше 20 мл * мин-1 * g-1; для сравнения интенсивность кровоснабжения мозга составляет 0,8 мл * мин-1 * g-1) и поэтому как нельзя лучше приспособлены для измерения парциального давления газов в крови.
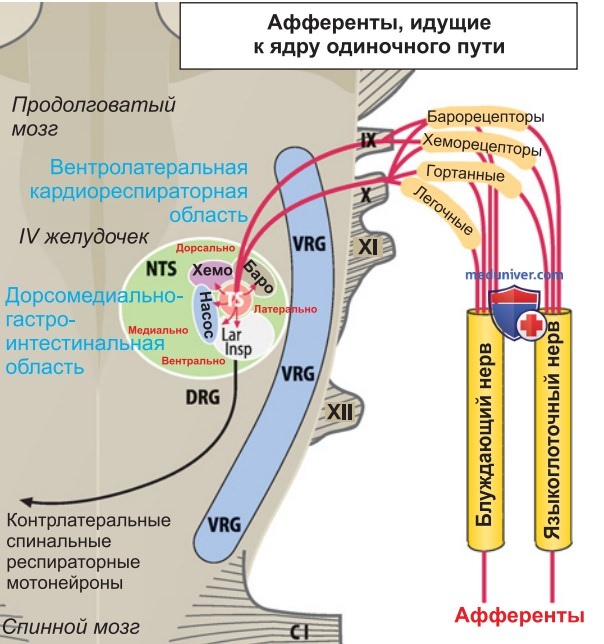
По афферентным нервным волокнам возбуждающий сигнал передается нейронам дорсальной респираторной группы (DRG) и далее в дыхательный центр.
Артериальные хеморецепторы находятся в билатерально расположенных каротидных тельцах, залегающих в месте бифуркации общей сонной артерии (a. carotis communis) на наружную сонную артерию (a. carotis externa) и внутреннюю сонную артерию (a. carotis interna). Каротидные тельца иннервируются нервом синуса сонной артерии, являющимся ветвью языкоглоточного нерва (n. glossopharyngeus (IX)).
Другие хеморецепторы находятся в аортальных тельцах, расположенных вдоль дуги аорты и правой подключичной артерии (а. subclavia) и иннервирующихся нервом аорты, который является ветвью n. laryngeus superior (рис. 1A).

На понижение артериального PO2, возрастание PCO2 или концентрации ионов Н+ сенсорные клетки отвечают деполяризацией мембраны и высвобождением нейромедиаторов. Одновременно выбрасываются дофамин и АТФ. АТФ активирует ионотропные рецепторы P2X (представляющие собой неспецифические катионные каналы) и возбуждает этим афферентные нервные волокна, в то время как дофамин является эффективным сопутствующим нейромодулятором (рис. 1).
2. Чувствительность хеморецепторов к О2. Порог возбуждения рецепторов O2 соответствует значению артериального PO2 около 110 мм рт. ст. Чувствительность клеток аортальных и каротидных телец к O2 так высока, что они активируются при еще нормальном артериальном PO2, равном 95100 мм рт. ст. Чувствительность к O2 обусловлена особенностями цитохрома a592, обладающего низкой способностью к связыванию O2.
Чувствительность к O2 любых других клеток тела существенно ниже (критическое значение PO2 для митохондрий, например, равно 1 мм рт. ст.).
3. Цитохром а592. Аффинность цитохрома a592 к O2 столь незначительна, что его окислительно-восстановительный статус оказывается завышенным уже при нормальных значениях PO2. При сильной гипоксии, помимо прочего, происходит разложение цитохром а3 — оксигеназного комплекса. Все это ведет к уменьшению митохондриального трансмембранного потенциала (MTP) и к уменьшению емкости Са2+-буфера в митохондриях. Вследствие этого возрастает концентрация Са2+ в цитозоле, что увеличивает скорость высвобождения медиаторов клетками каротидных и аортальных телец (рис. 1В).
Второй сигнальный путь реализуется через НАДФН-оксидазы. При недостатке кислорода кислородные радикалы генерируются этими оксидазами в малых количествах. Из-за повышенного образования сероводородных мостиков в плазмалемме клеток каротидных или аортальных телец чувствительные к O2 К+-каналы закрываются, что ведет к деполяризации клеток и в свою очередь влечет за собой активацию зависящих от потенциала на мембране Са2+-каналов. Из-за этого в клетку устремляется поток внеклеточного Са2+, что приводит к подъему концентрации Са2+ в цитозоле и усилению выброса медиаторов.
4. Чувствительность артериальных хеморецепторов к CO2 и Н+. Степень чувствительности к CO2 и Н+ основывается, вероятно, в первую очередь на закислении цитозоля сенсорных клеток. Закисление приводит к нарушениям функционирования К+- и Са2+-каналов, а также систем транспорта ионов в плазмалемме клеток (Na+/Н+-обменника и 3Na+/Са2+-обменника), что ведет к повышению внутриклеточной концентрации Са2+, а также увеличению интенсивности экзоцитоза медиаторов.
P.S. Клетки каротидных или аортальных телец по своему строению являются вторичными рецепторными и потому не обладают собственными аксонами. Индуцированное гипоксией повышение концентрации Са2+ в цитозоле активирует синапсы в афферентных нервных волокнах (вторичные нейроны), по ним проходит возбуждение, и эта информация посредством вставочных нейронов передается далее в nucl. tractus solitarius в medulla oblongata (рис. 1Г, 2). Здесь активирующиеся интернейроны при помощи синапсов включают в работу уже всю респираторную сеть. Происходит повышение степени возбуждения респираторных нейронов всех классов.
б) Кривые ответных изменений концентрации газов. Установлению оптимального уровня интенсивности вентиляции способствуют артериальные и центральные хеморецепторы и хемочувствительные структуры в стволе мозга.
Информация об изменениях концентрации газов в крови, поставляемая афферентными нервами, служит основанием для изменения интенсивности вентиляции легких (адаптации вентиляции). Понижение артериального PO2 (гипоксия) и повышение артериального PCO2 (гиперкапния) ведут, в частности, к повышению мгновенного дыхательного объема (кривая отклика на О2 или на CO2). Отчетливое усиление вентиляции происходит также при ацидозе (падении артериального pH; см. кривую отклика на pH).
1. Изменение вентиляции при колебаниях парциального давления CO2. Действенным стимулом для усиления дыхания служит показатель артериального PCO2. Как видно из кривой отклика на уровень CO2 (рис. 3), при артериальном PCO2, равном 60-70 мм рт. ст., минутный дыхательный объем может доходить до 70-80 л/мин. Величина этого соотношения демонстрирует высокий вклад артериального PCO2 в регулирование дыхания; она составляет примерно 2-3 л * мин-1 * мм рт. ст.-1.
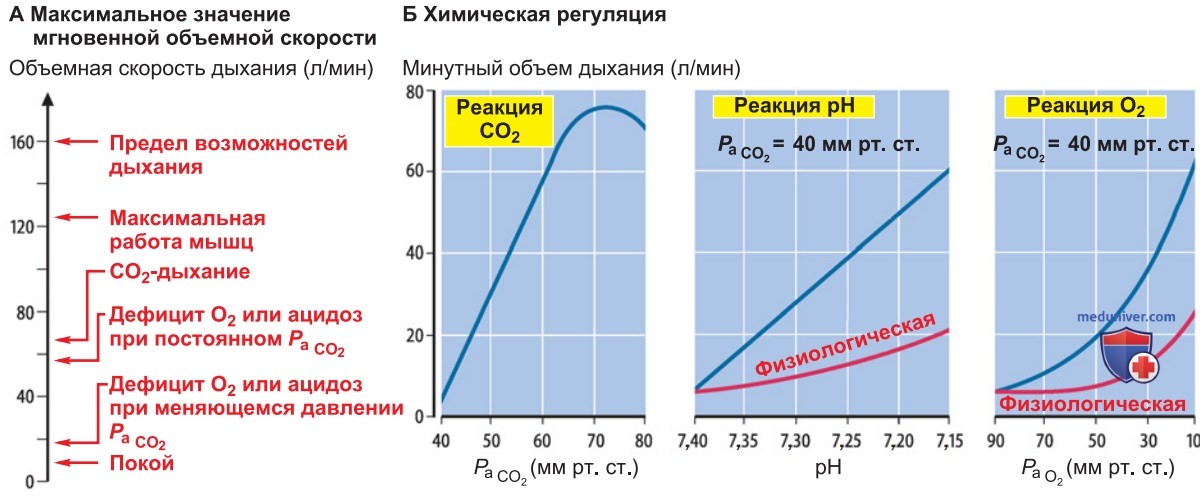
Повышенное значение парциального давления связано с чувством одышки (диспноэ). При значениях артериального PCO2 свыше 70 мм рт. ст. начинает проявляться наркотическое воздействие CO2 и интенсивность вентиляции снова падает.
2. Изменение вентиляции при смене pH. Кривая физиологического отклика на уровень pH (рис. 3) в условиях метаболического ацидоза характеризуется неожиданно плавным подъемом (примерно 2 л/мин при изменении pH на 0,1 ед.). Подобную незначительную восприимчивость механизмов физиологического регулирования дыхания к этому параметру можно объяснить увеличением поступления CO2 при возникающей следом гипервентиляции. Именно увеличенное поступление CO2 в рамках респираторной компенсации вызывает нереспираторный (неметаболический) ацидоз.
При поддерживающемся постоянно высоким артериальном давлении PCO2 крутизна кривой отклика на pH изменяется на 20 л/мин за каждое изменение pH на 0,1 ед.
3. Изменение вентиляции при колебаниях парциального давления O2. При уменьшении PO2 во вдыхаемом воздухе и PO2 в артериальной крови наблюдаются повышение мгновенной объемной скорости дыхания за счет увеличения дыхательных объемов и повышения частоты дыхания (рис. 3). Превышение значения артериального PO2, его нормативного показателя равного 100 мм рт. ст., ведет, напротив, только к незначительному ослаблению интенсивности вентиляции.
Артериальная гипоксия (гипоксемия) может возникать при пребывании в местности, способствующей понижению артериального PO2 (например, на большой высоте над уровнем моря), и быть следствием нарушения вентиляции, нарушения газообмена в легких или ненормальных значений артериального давления. Кривая отклика на O2, т. е. изменение мгновенной объемной скорости дыхания в зависимости от артериального PO2, при нормальных условиях (кривая физиологического отклика) демонстрирует только незначительную крутизну (рис. 3, красная кривая).
Фактически увеличение мгновенной объемной скорости дыхания происходит, только если значение артериального PO2 опускается ниже 50-60 мм рт. ст., что соответствует уже серьезной артериальной гипоксии. По-видимому, такая незначительная чувствительность к O2 при регулировании дыхания компенсируется реагированием на уменьшение стимула от CO2, так как обусловленное гипоксией повышение частоты дыхания ведет к понижению артериального PCO2.
Поэтому для методологически корректных измерений чувствительности хеморецепторов к O2 значение артериального PCO2 в продолжение всех измерений должно поддерживаться постоянным, обычно оно устанавливается равным 40 мм рт. ст. В этом случае отклик на О2 (рис. 3, черная кривая) демонстрирует гораздо более сильную реакцию на каждое падение PO2 в артериальной крови и величина минутного дыхательного объема более резко поднимается до 50-60 л/мин.
P.S. Несчастные случаи из-за гипервентиляции при нырянии:
- Апноэ при нырянии на небольшие глубины. При нырянии часто происходят несчастные случаи со смертельным исходом. Люди могут тонуть даже при погружении в воду всего на несколько метров.
- Объяснение. Несчастные случаи происходят из-за того, что ставшие их жертвами люди перед нырянием вызывают чрезмерно сильную гипервентиляцию. Если гипервентиляция перед нырянием осуществляется за счет частых глубоких вдохов и выдохов, PCO2 опускается, а PO2 может при этом существенно и не подниматься. Значительного увеличения запасов кислорода в организме не происходит.
Если погружение осуществляется сразу после такой сильной гипервентиляции, PO2 может упасть, при этом раздражения дыхательных путей, сопряженного со слишком низким PCO2 не происходит. Поэтому стоит учитывать при желании отдышаться, что вентиляция в большей степени в действительности зависит от PCO2, а не от PO2. Между тем может возникнуть церебральная гипоксия, что нередко приводит к потере сознания под водой.
- Предупредительные меры. Перед началом погружения никогда нельзя осуществлять гипервентиляцию легких более 3 или 4 раз.
- Несчастные случаи при глубоком погружении. Внезапная потеря сознания незадолго до всплывания на поверхность может случаться и у экстремальных дайверов, не использующих респираторное снаряжение.
- Объяснение. При глубоком погружении с увеличением глубины растет давление, создаваемое водной толщей. Вследствие этого растет давление в сосудах, а значит, неизбежно растет PO2. Рост давления способствует тому, что мозг будет снабжаться кислородом довольно продолжительное время. Но вместе с тем при приближении к поверхности воды PO2 падает естественным образом одновременно со снижением давления воды и давления в сосудах. Быстро спадающая величина PO2 может в этом случае привести к внезапной потере сознания непосредственно перед всплыванием на поверхность.
- Предупредительные меры. По этой причине на соревнованиях по дайвингу всегда присутствует наблюдатель, который следит за участниками, пока они пребывают в воде, и при случае может вмешаться.
в) Центральная хеморецепция. Закисление объема межклеточного пространства приводит к активизации респираторных сетей в продолговатом мозге и тем самым к усилению вентиляции посредством центральной хеморецепции.
При эффективной диффузии CO2 любое отклонение артериального PCO2 немедленно отражается на изменениях PCO2 и концентрации Н+ в межклеточной жидкости medulla oblongata. Из-за того что секреция через plexus chorioideus замедляется, PCO2 и концентрация H+ возрастает и в цереброспинальной жидкости. Отклик вентиляции на изменение PCO2 и [Н+] (рис. 3) обеспечивается главным образом благодаря центральным хеморецепторам, которые сами располагаются непосредственно на вентральной поверхности ствола мозга.
Как и артериальные (периферические) хеморецепторы, на подъем артериального PCO2 они реагируют выбросом АТФ (рис. ниже).
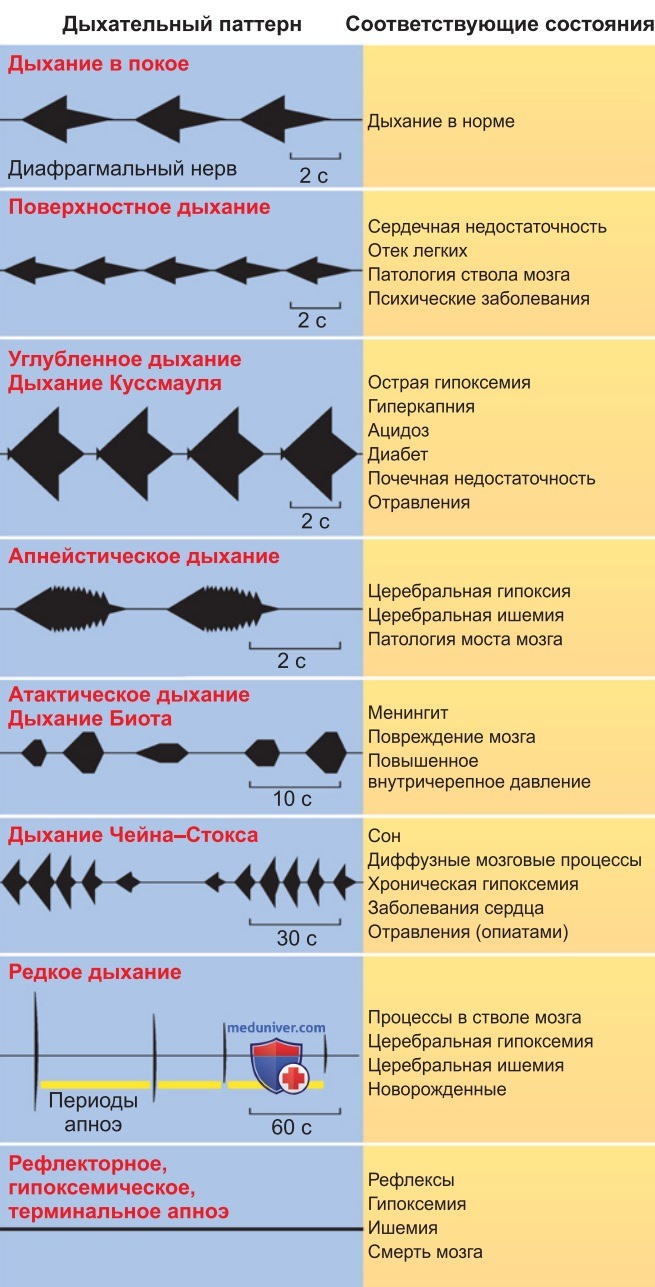
г) Резюме. Химический контроль дыхания. Информация об изменениях концентраций газов в крови может передаваться в medulla oblongata двумя способами:
• периферическими (артериальными) хеморецепторами: величина изменения концентраций газов в крови измеряется артериальными хеморецепторами, расположенными в glomera carotica и glomera aortica. Хеморецептивная информация отправляется затем к дыхательному центру через многие синапсы по нервам синуса сонной артерии (ветви n. glossopharyngeus) или нервам аорты (ветви n. laryngeus superior). Изменения концентрации О2 улавливаются преимущественно периферическими хеморецепторами.
• центральными хемочувствительными зонами: отклонения артериального PCO2 непосредственно вызывают изменения PCO2 и концентрации Н+ в межклеточной жидкости в medulla oblongata. Отклик вентиляции на PCO2 и [Н+] обеспечивается главным образом благодаря центральным хеморецепторам.
Рефлекторная адаптация вентиляции обеспечивает постоянство содержания дыхательных газов в артериальной крови в норме.
Видео физиология регуляции дыхания - профессор, д.м.н. П.Е. Умрюхин
- Вернуться в раздел "Физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 14.7.2025