

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Дыхательные центры - с точки зрения физиологии человека
Оглавление статьи:- Отвечающие за дыхание отделы в стволе мозга
- Классы респираторных нейронов
- Схема координации нейронных сетей
- Ритмогенез дыхания
- Расстройство дыхательного ритма
- Резюме
- Список использованной литературы
а) Отвечающие за дыхание отделы в стволе мозга. Дыхательный ритм возникает в билатерально расположенных нервных сетях респираторных нейронов в вентролатеральных частях продолговатого мозга (medulla oblongata).
1. Вентральная респираторная группа. Создание и поддержание дыхательного ритма (ритмогенез) является функцией билатерально расположенных сетей вентральных дыхательных (респираторных) групп (ВДГ, или VRG, от англ. ventral respiratory group) нейронов, включающих пребетцингеров комплекс (prae-Botzinger complex, PBC) и располагающихся поблизости от ростровентральных зон продолговатого мозга (rostroventrolateral medulla, RVLM; см. разд. о регулировании кровообращения).
Нейроны VRG тесно взаимодействуют друг с другом в пределах сети и, кроме того, посредством многих синаптических контактов функционально связаны с другими нейронными сетями. В частности, они связаны с сетями, регулирующими тонус бронхиальной мускулатуры, и сетями, регулирующими активность симпатического и парасимпатического отделов вегетативной нервной системы (кардио-респираторное сопряжение).
Кроме того, в зонах, соседствующих с VRG, локализованы структуры, отвечающие за хемочувствительность в центральной нервной системе (рис. 1, справа).
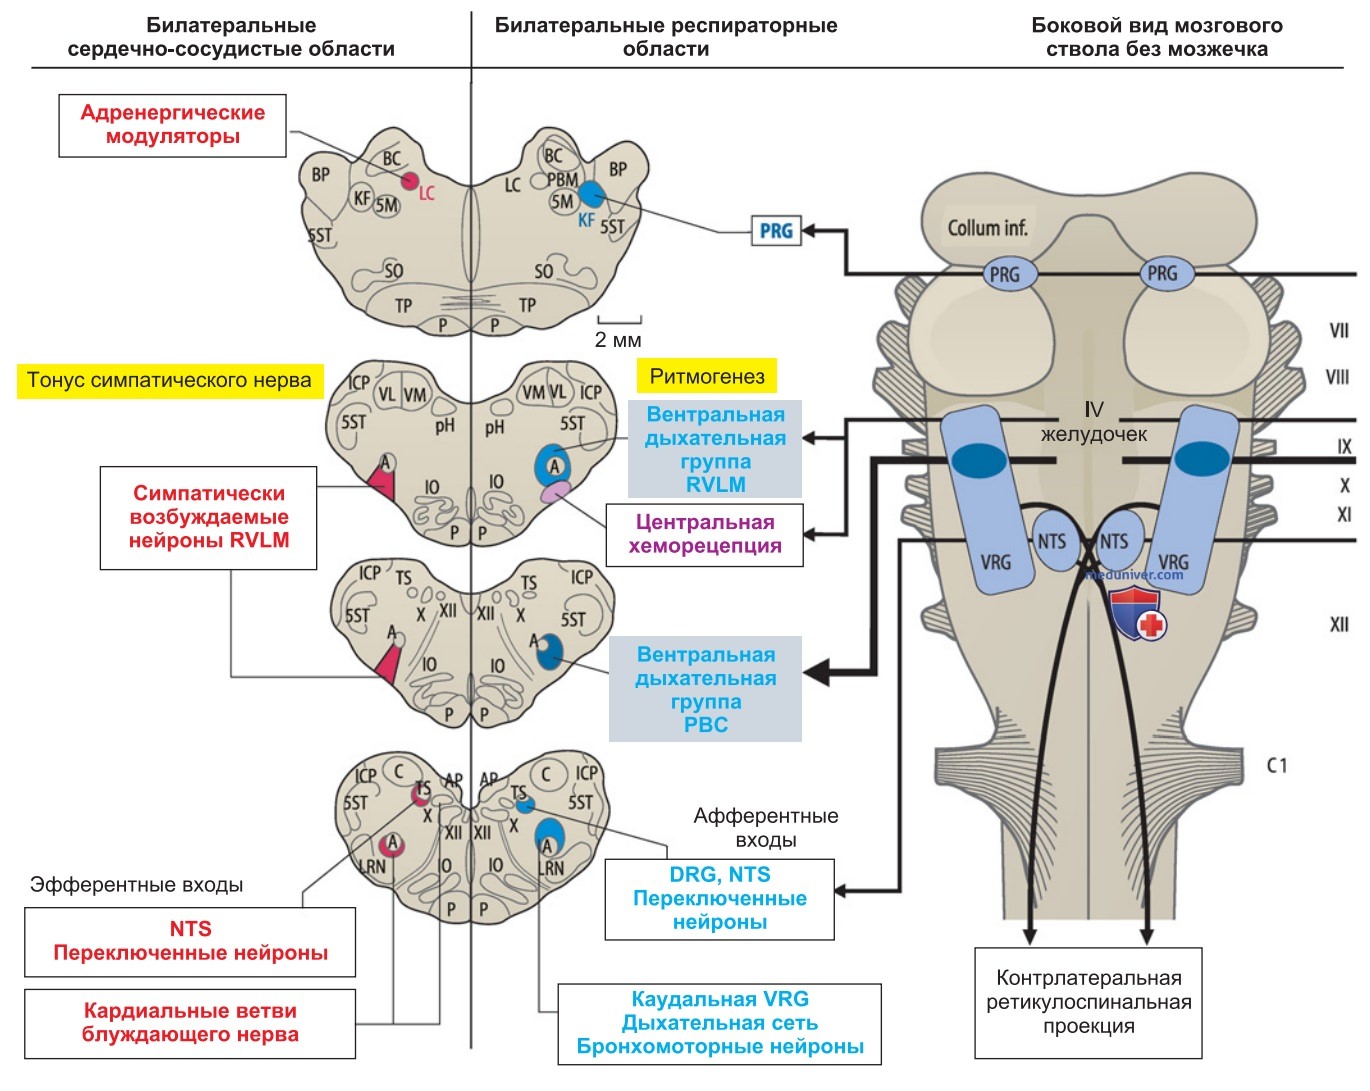
2. Комплекс Бетцингера. В составе VRG различают более рострально расположенный комплекс Бетцингера и располагающуюся каудальнее уровня задвижки (obex) продолговатого мозга часть, включающую пребетцингеров комплекс. VRG в пространственном отношении расположена близко к nucl. ambiguus (рис. 1, справа), в котором локализованы мотонейроны глотки и гортани. В непосредственной близости от nucl. ambiguus расположены также бронхомоторные нейроны.
3. Парафациальная респираторная группа. Ростральнее в стволе мозга расположены пара-фациальные (т.е. локализованные возле ядер лицевого нерва n. facialis) зоны неясного назначения (parafazial respiratory group, pFRG). В них локализованы экспираторные нейроны, которые также являются водителями дыхательного ритма. Механизм их работы до конца еще не выяснен.
4. Дорсальная респираторная группа. Несмотря на название, нейроны дорсальной дыхательной (респираторной) группы (ДДГ или DRG, dorsal respiratory group) расположены вентральнее ядра одиночного пути (nucl. tractus solitarius, TS или NTS) и в ритмогенезе не участвуют. Наряду с ретикулоспинальными инспираторными «проводящими» нейронами, содержащимися в NTS (рис. 1, справа), это крайне важные вставочные нейроны в схеме некоторых рефлексов (рефлексы хеморецепторов, рефлекс Геринга-Брайера, а также рефлексы кашля и чихания), принимающие афферентные сигналы от дыхательных путей, легких и кровеносной системы. Они способствуют рефлекторному приспособлению процессов дыхания и кровообращения к текущим условиям.
Вблизи от NTS, а именно в дорсальном ядре блуждающего нерва n. vagus сосредоточены нейроны этого нерва, иннервирующие сердце (рис. 1, слева).
5. Респираторная группа моста мозга (pontine respiratory group, PRG). Часть респираторных сетей расположена в парабрахиальном ядре nucl. parabrachialis и в ядре Келликера-Фузе (nucl. Kolliker-Fuse) в мосте мозга. Они также не задействованы в первичном ритмогенезе, но могут оказывать на него важный модифицирующий эффект: компенсировать тормозящие сигналы, поступающие из респираторных сетей.
Ход постинспирации и гармоничность дыхательного ритма отчетливо нарушаются, если эти нейроны в респираторных группах моста по каким-то причинам прекращают свою работу (рис. 1, справа).
6. Голубое пятно. Нейроны, расположенные в голубом пятне (locus coeruleus) (рис. 1, справа), могут изменять активность нейронов в респираторных и кардиоваскулярных сетях. Некоторые из нейронов в locus coeruleus, помимо этого, обладают чувствительностью по отношению к CO2 и ввиду этого способствуют центральной хемочувствительности.
б) Классы респираторных нейронов. В составе расположенных в продолговатом мозге респираторных сетей различают инспираторные, постинспираторные и экспираторные классы нейронов.
1. Классификация респираторных нейронов. В респираторных сетях можно выделить три различных класса нейронов (рис. 1). Они соединены друг с другом синаптическими контактами и посредством направляемых по ним сигналов способствуют смене друг у друга фазы возбуждения и фазы торможения:
- инспираторные (I) нейроны активны в ходе фазы инспирации;
- постинспираторные (PI) нейроны активны в ходе первой, пассивной фазы выдоха (постинспирации);
- экспираторные (E2) нейроны возбуждаются во время второй, активной фазы выдоха.
P.S. Дальнейшее деление внутри классов нейронов. Наряду с нейронами (а), чья степень возбуждения в ходе всей фазы нарастает линейно (линейные I-нейроны), различают также инспираторные нейроны (б), начинающие возбуждаться незадолго до начала фазы инспирации (пре-I-нейроны), нейроны (в), возбуждающиеся в начале фазы инспирации (инициаторные I-нейроны) и нейроны (г), активные в конце фазы инспирации (терминальные I-нейроны).
в) Схема координации нейронных сетей. Производимый активностью нейронов вентральной респираторной группы (VRG) ритм по ретикулоспинальным проводящим путям передается мотонейронам спинного мозга.
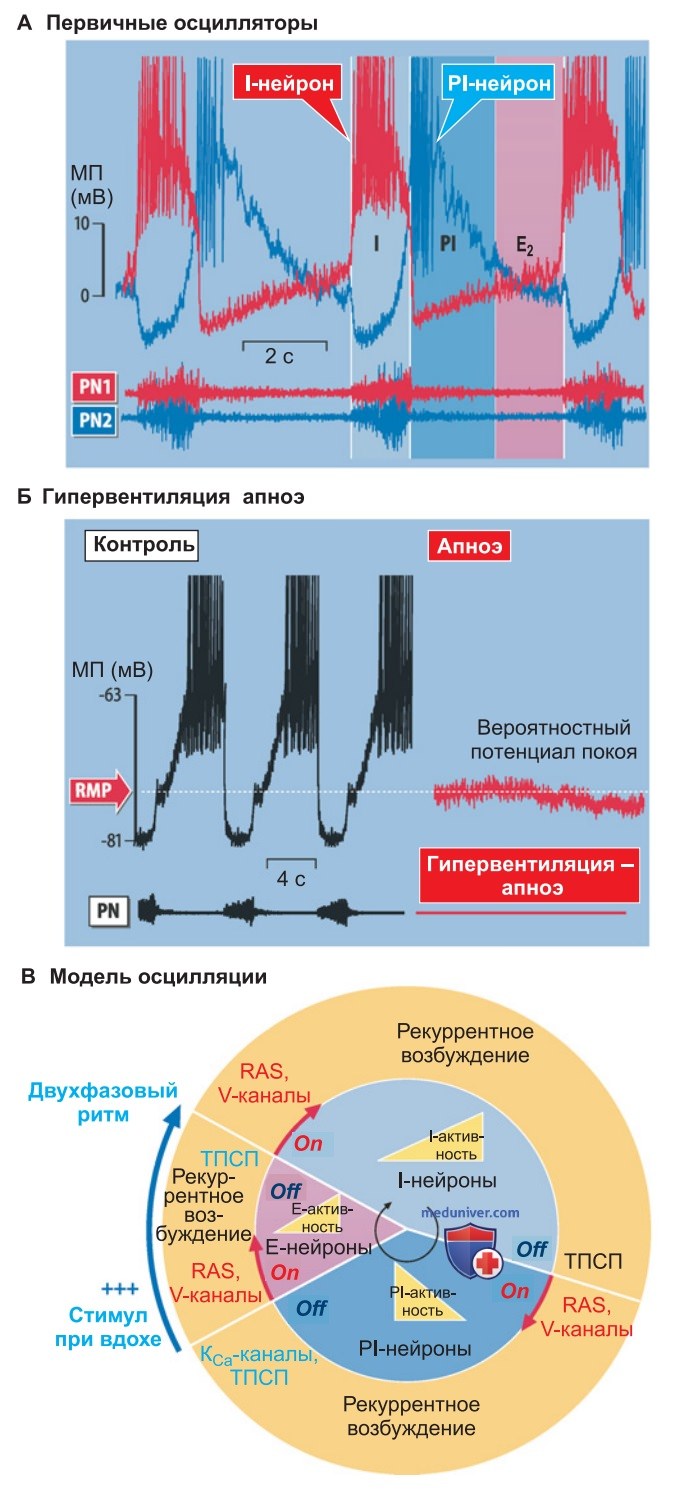
Сети респираторных нейронов активируются под влиянием возбуждающих сигналов от хеморецепторов и спонтанной активности formatio reticularis (retikular activate system, RAS), а также коры и многих других супраспинальных областей (например, гипоталамуса). При прекращении поступления стимулов, что может быть, например, следствием сильной гипервентиляции (рис. 2Б), дыхание может стать беспорядочным и более слабым, вплоть до его полной остановки (апноэ).
Наряду с этим к ним могут поступать и тормозящие сигналы, например от чувствительных ветвей тройничного нерва, иннервирующих лицо и нос, которые при нырянии блокируют дыхание (рефлекс ныряния).
По специфическим синаптическим связям различным классам респираторных нейронов сообщаются возбуждающие постсинаптические потенциалы (глутаматэргические ВПСП) или тормозные постисинаптические потенциалы (глицинэргические и ГАМКэргические ТПСП). Временной и пространственный характер распространения постсинаптических потенциалов приводит к периодичным колебаниям потенциала на мембране и во время приближения деполяризации к пороговому значению к серийным разрядкам напряжения в виде потенциалов действия («щеточные» участки осциллограмм на рис. 2A).
1. Управление мотонейронами в спинном мозге. «Выводящие» нейроны в генерирующих ритм как инспираторных, так и экспираторных сетях связаны с аксонами, входящими в состав ретикулоспинальных проводящих путей (рис. 1). Они активируют дыхательную мускулатуру посредством мотонейронов в спинном мозге через моно- и олигосинаптические связи. Активность инспираторных нейронов в ретикулоспинальных проводящих путях имеет наряду с инспираторной постинспираторную составляющую. Это обусловливает наличие двух фаз активации инспираторных мотонейронов и мышц — инспираторной и постинспираторной.
2. Респираторная соиннервация. Совместная иннервация характерна для респираторных нейронов моста мозга, а также мотонейронов в гортанном ядре блуждающего нерва (vagal laryngeal) и ядре подъязычного (hypoglossal) нерва в стволе мозга.
Благодаря синхронной соиннервации мотонейронами в головных нервах (IX, X, XII), а также моторными нейронами в бронхах тонуса языка, глотки, гортани и бронхиальной мускулатуры обеспечивается ритмичность дыхания, за счет чего регулируется объем потока воздуха в верхних воздухоносных путях или сила аэродинамического сопротивления, оказываемая ему.
Респираторные нейроны, принадлежащие PBC, находятся, кроме того, вблизи от билатерально расположенных кардиоваскулярных сетей (рис. 1A), чья активность в результате может изменяться благодаря синаптическим контактам под влиянием респираторных сетей. Симпатоэкспираторные нейроны демонстрируют отчетливое повышение активности во время вдоха, а нейроны в сердце, входящие в состав блуждающего нерва, активируются преимущественно во время постинспирации. В этом проявляется сопряженный характер кардиореспираторной регуляции, недвусмысленно выражающийся вдобавок к этому в колебаниях артериального давления и сердечных аритмиях, обусловленных респираторными причинами.
г) Ритмогенез дыхания. В основе механизма ритмогенеза лежит взаимодействие вызываемых синаптическими сигналами изменения значений потенциала на мембране и изменения степени проницаемости мембраны, зависящих от значений напряжения, в инспираторных и постинспираторных нейронах.
1. Респираторный ритм возникает в норме как следствие периодических изменений заряда на мембране в нейронах, принадлежащих к инспираторным и постинспираторным классам. Экспираторные классы нейронов, напротив, в силу необходимости превышения порога возбудимости не активируются.
Респираторные нейроны в условиях in vivo не проявляют качеств водителей ритма. Их активность определяется исключительно принимаемыми возбуждающими и тормозящими синаптическими сигналами. Основой ритмогенеза являются также возбуждающие и тормозящие синаптические взаимодействия между нейронами VRG и определяемая степенью их активности регуляция зависящих от уровня напряжения ионных каналов вовлеченных нейронов.
Временная и пространственная суммация ВПСП или ТПСП отвечает за протекание колебаний значения потенциала на мембране с большим периодом. Если стимулы от хеморецепторов и ретикулярной формации затухают, потенциал на мембранах нейронов стабилизируется на «мертвой точке», составляющей примерно -70 мВ (рис. 2), что может привести к апноэ. Это подтверждает жизненно важное значение поступающих возбуждающих стимулов от хеморецепторов по афферентным нервам и от formatio reticularis (рис. 2).
Респираторная сеть служит также мишенью многих нейронных систем, принадлежащие им респираторные нейроны и синаптические взаимодействия между ними очень сильно подвержены влиянию высвобождаемых нейромодуляторов (серотонина, дофамина, норадреналина, эндорфинов), из-за чего те способны изменять дыхательный ритм.
2. Управление фазой инспирации. Инспирация начинается тогда, когда инспираторные нейроны больше не тормозятся синаптическими сигналами от экспираторных (или постиэкспираторных) нейронов. Из-за уменьшения степени ингибирующей гиперполяризации мембраны активируются различные зависящие от напряжения ионные каналы: возникают неспециализированный поток Ih, поток CaT с низким порогом и персистирующий поток Nap. Этот направленный внутрь поток ионов усиливает деполяризацию мембраны, начинается дезингибирование, и происходит превышение порога (ребаунд) и возбуждение I-нейронов (on обозначает включение; рис. 2).
P.S. Серия инспираторных потенциалов действия возникает из-за постсинаптической суммации поступающих рекуррентных возбуждающих синаптических сигналов от других инспираторных нейронов и прекращается ингибированием через синапсы.
Благодаря положительной обратной связи посредством обмена возбуждающими синаптическими глутаматэргическими сигналами между синергически взаимодействующими нейронами I-нейроны постепенно наращивают общую степень своей активности. Однако несмотря на то что степень их активности непрерывно возрастает, она не растет экспоненциально, поскольку внутри этой сети существует поток и тормозных сигналов, исходящих от ранних пре-I-нейронов (тормозных интернейронов).
Результатом этой синаптической интеграции является линейный характер протекания деполяризации и частоты разрядки напряжения в линейных I-нейронах. Наконец, активируются и терминальные интернейроны, что ведет к первоначальному, еще обратимому, ингибированию линейных I-нейронов.
В продолжение всей фазы инспирации E2- и PI-нейроны остаются синаптически заторможенными I-нейронами (off обозначает выключение экспираторных и постинспираторных нейронов; нейромедиторами служат ГАМК и глицин).
3. Управление фазой постинспирации. Кратковременное прекращение инспираторной активности в ходе продолжительной фазы инспирации ведет к растормаживанию (дезингибированию) PI-нейронов. Вследствие этого поступающие к PI-нейронам возбуждающие синаптические сигналы способны давать должный эффект. Они представляют собой афферентные сигналы от рецепторов растяжения легких в момент их максимальной активации, а также исходят от ретикулярной активирующей системы.
В результате происходит резкая деполяризация мембраны, затем возникает быстрое превышение порога и последующее за ним возбуждение PI-нейронов.
P.S. Постинспирационные нейроны необратимо тормозят I-нейроны и исключают тем самым возможность немедленного повтора вдоха; начинается постинспирация. Все остальные нейроны респираторных сетей и нейроны, принадлежащие RAS, также затормаживаются.
Фаза постинспирации автоматически заканчивается, если адаптация PI-нейронов не компенсирует усиленное поступление возбуждающих сигналов (например, поступающих от коры полушарий при разговоре или от лимбической системы в случае приостановки дыхания из-за испуга).
4. Управление фазой экспирации. Наступление фазы активного выдоха (фаза E2) также происходит через дезингибирование, в этом случае за счет прекращения ингибирования PI-нейронами остальных нейронов. Фаза E2 заканчивается, как только возбуждаются пре-I-нейроны, которые через синапсы тормозят E2-нейроны (прекращение выдоха). В свою очередь, при прекращении торможения E2-нейронами (дезингибирование) I-нейронов последние могут инициировать следующий дыхательный цикл.
P.S. Фаза выдоха E2. К превышению порога и возбуждению экспираторных нейронов приводят возбуждающие сигналы от RAS, а также синаптическая активация периферическими афферентными нейронами (например, бронхиальными рецепторами). Как только происходит возбуждение, экспираторные нейроны затормаживают и инспирационные, и постинспирационные нейроны.
5. Дыхание с двумя активными фазами. При определенных условиях фаза активного выдоха может полностью отсутствовать. Под влиянием супрамедуллярных структур ЦНС (коры полушарий, лимбической системы, гипоталамуса) или срабатывания рефлексов (например, при лихорадке или поступлении афферентного сигнала от ноцирецепторов при восприятии боли) может происходить усиленная активация части инспираторных и постинспираторных сетей. Подобная активация уже может вызывать повторное наступление инспирации немедленно после прекращения постинспирации.
Активность респираторных сетей «осциллирует» в таком случае между двумя фазами дыхательного цикла, инспирацией и постинспирацией, в то время как фаза E2 отсутствует. Этот факт демонстрирует, что первичный осциллятор в принципе может существовать за счет антагонистических взаимодействий инспираторных и постинспираторных нейронов (рис. 2A).
д) Расстройство дыхательного ритма. Дыхательный ритм из-за различных патологических состояний может нарушаться. В диагностическом смысле важно, с какой именно фазой цикла связано отклонение от нормы.
1. Учащенное дыхание. Учащенное (поверхностное) дыхание может быть следствием сердечной недостаточности, отека легких, повышенной температуры, патологических процессов в стволе мозга и психических заболеваний (рис. 3).
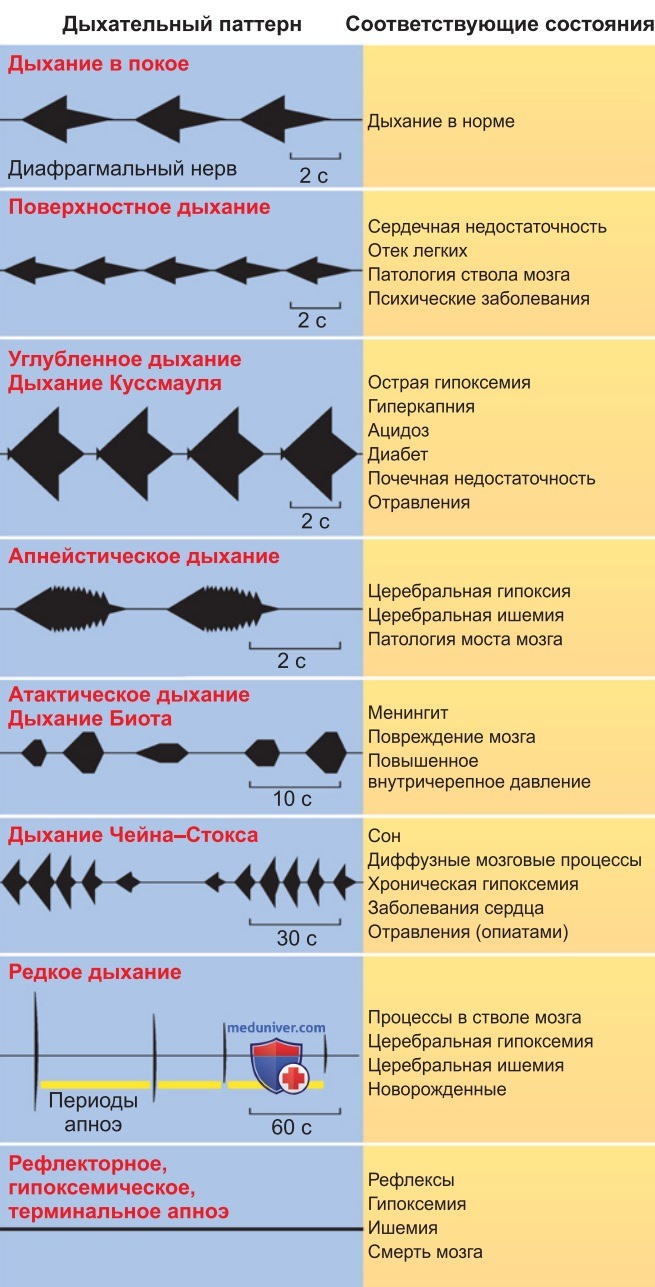
2. Большое дыхание Куссмауля. Первым признаком ацидозного расстройства кислотно-основного баланса (диабетическая кома, ацидоз при почечной недостаточности) служит более частое и ускоренное дыхание Куссмауля. Подобное дыхание может, однако, быть признаком артериальной гипоксии, гиперкапнии и отравлений (салициловой кислотой, метанолом).
3. Апнеуз. При нарушении кровоснабжения продолговатого мозга и Варолиева моста зачастую время, затрачиваемое на осуществление инспираторных движений, анормально удлиняется, что служит признаком (инспираторного) апнейстического, или заторможенного, дыханием.
4. Дыхание Бийота. При нарушениях работы мозга в области ствола мозга, менингитах и повышенном внутричерепном давлении дыхательные движения могут осуществляться не регулярно, а периодически и вовсе приостанавливаться. Такая клиническая картина характерна для атактического дыхания, или дыхания Биота.
5. Дыхание Чейна-Стокса. Дыхательные движения с периодически нарастающей и спадающей амплитудой типичны для дыхания Чейна-Стокса. Его можно наблюдать в незначительной степени во время сна, при пребывании на больших высотах и в особенно выраженном виде при сердечно-сосудистых заболеваниях, сопровождающихся хронической артериальной гипоксией, диффузными процессами в мозге, при кровоизлиянии, а также при отравлениях опиумными препаратами.
6. Сглаженное дыхание. При ознобе и заболеваниях, сопровождающихся демиелинизацией нервных волокон, в большинстве случаев можно, напротив, наблюдать регулярное, но поверхностное дыхание.
7. Апноэ. Апноэ представляет собой особенно сильно проявляющееся и важное в диагностическом смысле нарушение дыхания. Короткие периоды апноэ обычны для нормального дыхания спящих новорожденных детей и не относятся к патологическим проявлениям.
Длительные периоды апноэ — это признак нарушения энергоснабжения ствола мозга или последствие неправильных или не вполне сложившихся механизмов регуляции дыхания при недостатке центральных хеморецепторов (синдром проклятия Ундины, названный так по имени героини одноименной повести Жана Жироду). Продолжительная и тяжелая гипоксия и вызываемое ею апноэ также, вероятно, ответственны за скоропостижную смерть в раннем детском возрасте (синдром внезапной детской смерти). Изначально, по всей видимости, апноэ как рефлекторная реакция связано прежде всего с автоматической приостановкой дыхания при рефлексе ныряния (см. выше), в осуществлении которого оно принимает участие. При положении лежа на животе этот рефлекс у спящих младенцев стимулируется образованием водного конденсата в лицевой области.
8. Затрудненное дыхание. При затрудненном дыхании у человека можно наблюдать лишь отрывистые короткие инспирационные движения. Оно служит признаком нарушения дыхания во время агонии. Вдох происходит все реже и становится все более слабым, а затем наступает терминальное апноэ.
9. Смерть мозга. Не стоит забывать, что отсутствие каких-либо дыхательные движений не обязательно означает необратимое повреждение дыхательных центров и, таким образом, смерть мозга. Обратимое апноэ может возникать как следствие срабатывания рефлексов, гипоксии и/или высвобождения эндогенных нейромодуляторов (например, аденозина, эндорфинов) и продолжаться при этом чрезвычайно долго.
P.S. Апноэ. Апноэ (буквально «бездыханность») — это остановка дыхания. Оно может встречаться в различных повседневных ситуациях, в частности при испуге, а также как последствие рефлексов (ныряния, удушения, давления или аспирации). В результате любой приостановки дыхания снижается величина артериального парциального давления O2 (PO2) и поднимается артериальное парциальное давление CO2 Допустимый срок протекания этого процесса крайне ограничен (10-30 с), поэтому вскоре после приостановки начинается углубленное дыхание. Длительная приостановка угрожает гипоксией и опасна для жизни. Для установления диагноза важно обратить внимание на повторяющиеся без видимой причины периоды апноэ, которые продолжаются дольше 20 с.
Клинически важна форма апноэ, возникающего во время сна. Для синдрома ночного апноэ характерен такой тип дыхания, при котором во время сна снова и снова происходят его приостановки, продолжающиеся свыше 10 с, что в продолжение одной ночи может повторяться многократно. В качестве патологии расценивается появление более 10 пауз в час.
- Причины. Наиболее распространено «обструктивное» ночное апноэ, при котором верхние дыхательные пути суживаются в основном из-за нарушения развития, наличия воспаления, опухоли или из-за жировых отложений. Верхние дыхательные пути могут также значительно сужаться, если во время сна ослабевают мышцы глотки и языка. Опускание языка вниз может привести к полному перемещению верхних дыхательных путей. Срабатывающие при этом ларингеальные рефлексы и подъем PCO2 ведут к тому, что человек просыпается и дышит с трудом. В целом все это приводит не только к повторному падению PCO2, но и к хронической бессоннице.
- Диагностика. Признаками синдрома ночного апноэ могут служить дневная сонливость, головные боли при пробуждении, раздражение и повышенное артериальное давление неясной этиологии. Подробный опрос пациента, а также его партнера может предоставить важную информацию, так как партнер или партнерша нередко могут сообщить о нерегулярном храпе, прерывающемся на продолжительные паузы в дыхании. Возможно, стоит обратить внимание на имеющиеся сопутствующие заболевания, такие как повышенное артериальное давление или сердечная недостаточность, а также на принимаемые медикаменты. Обследование у отоларинголога позволяет исключить наличие злокачественных образований в верхних дыхательных путях или иных структур, ограничивающих их просвет (например, аденоидов).
- Терапия. Пациентам, имеющим избыточный вес, рекомендуется его сбросить. Следует избегать употребления алкоголя, а также успокоительных средств и снотворных. Эффективный метод лечения апноэ — вентиляция под давлением через маску, или СРАР-терапия (от англ. continous positive airway pressure). При помощи положительного регулируемого давления, развиваемого специальным аппаратом, дыхательные пути остаются открытыми, что позволяет избежать их перекрывания. Оперативное вмешательство оправдано только в отдельных случаях, например при подтвержденных патологических изменениях. Для их устранения применяют увулопалатофаригопластику, удаление аденоидов или глоточной миндалины или выпрямление искривленной носовой перегородки.
1. Дыхательные центры. Дыхательный ритм возникает в билатерально-симметрично расположенных сетях респираторных нейронов, находящихся в продолговатом мозге (medulla oblongata), которые носят название вентральной респираторной группы (VRG).
VRG содержит три различных класса нейронов, соединенных друг с другом синапсами:
• инспираторные нейроны, активные во время вдоха;
• постинспираторные нейроны, возбуждающиеся во время пассивного выдоха;
• эспираторные нейроны, возбуждающиеся во время активного выдоха.
Для этих нейронов характерна ритмичная активность; ритм по ретикулоспинальным путям передается мотонейронам в двигательной коре.
2. Ритмогенез. Дыхательный ритм представляет собой первичную осцилляцию смены активности инспираторных и постинспираторных классов нейронов. Важную роль играет принцип растормаживания (дезингибирования). Так, инспирация начинается, когда инспираторные нейроны не ингибируются притоком синаптических сигналов от экспираторных (или постинспираторных) нейронов.
Сбои в этих процессах ведут к нарушениям ритма.
Видео физиология регуляции дыхания - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Химический контроль дыхания - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 14.7.2025