

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Биология боли при опухолевом поражении кости - по руководству США
Боль — наиболее распространенный симптом у пациентов со скелетными метастазами и один из самых сложных для лечения болевых синдромов; боль прямо пропорциональна качеству жизни пациента. Существует два основных типа раковой боли: (1) базовая боль и (2) прорывная боль.
Базовая боль описывается как тупая и ноющая, она носит постоянный характер и прогрессирует в соответствии с процессом заболевания. Прорывная боль чаще всего связана с метастазами в кости, имеет резкий, прерывистый характер и усиливается при движении.
Боль, возникающая при движении, — наиболее известная причина прорывной боли, встречающаяся у 80% пациентов с прогрессирующим заболеванием. Значительный вклад в понимание патофизиологии боли при раке костей и разработку новых терапевтических стратегий лечения был сделан во многом благодаря новым животным моделям и клиническим испытаниям, показавшим, что боль при опухолевом поражении кости — это многофакторный процесс, который инициируется сложным взаимодействием между клетками-хозяевами пораженной кости и опухолевыми клетками.
Боль возникает при повреждении тканей в результате высвобождения нейротрансмиттеров, цитокинов и других факторов из поврежденных клеток, реактивных или активированных воспалительных клеток, прилегающих кровеносных сосудов и ноцицептивных нервных окончаний. Ноцицептивные сигналы передаются на уровне первичного афферентного нервного волокна, иннервирующего периферическую ткань, такую как кость.
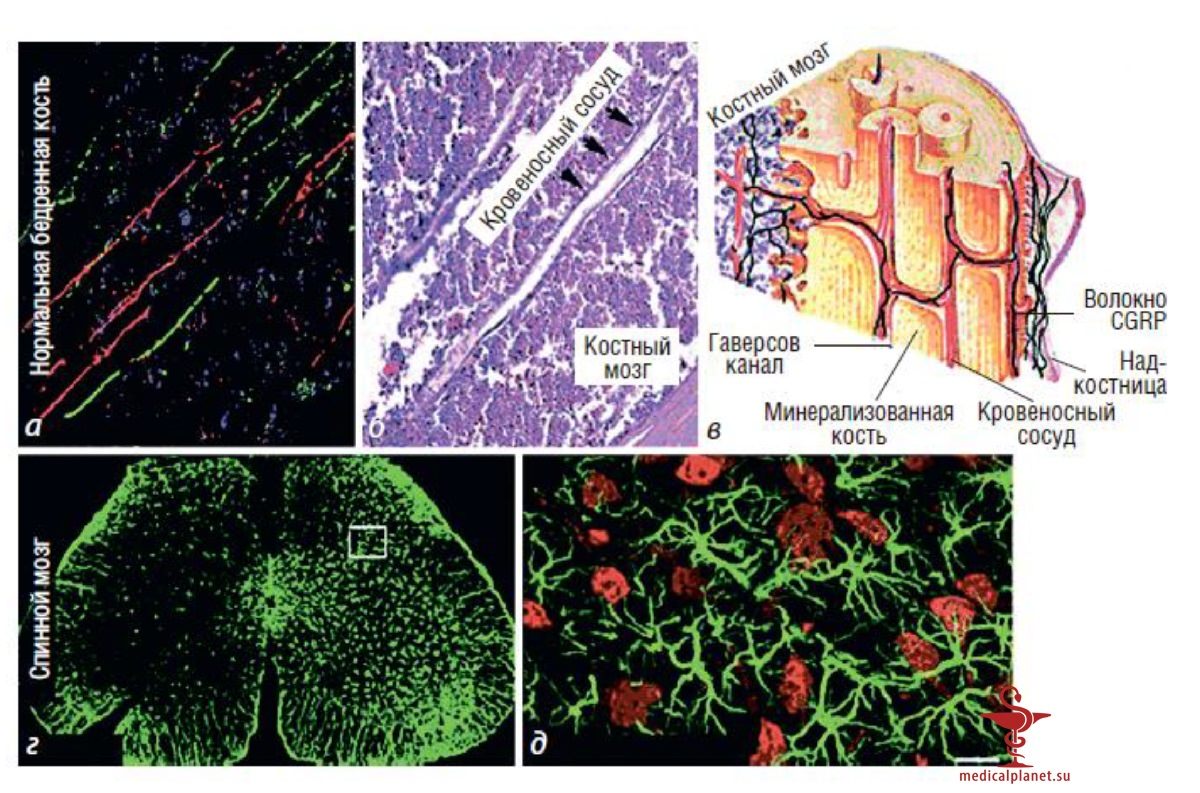
Кость густо иннервируется сенсорными нервными волокнами в костном мозге, минерализованной кости и надкостнице (рис. 1). Сенсорные и симпатические нейроны образуют сеть по всей надкостнице в сочетании с кровеносными сосудами, которые могут обнаруживать небольшие нарушения целостности скелета (рис. 2).
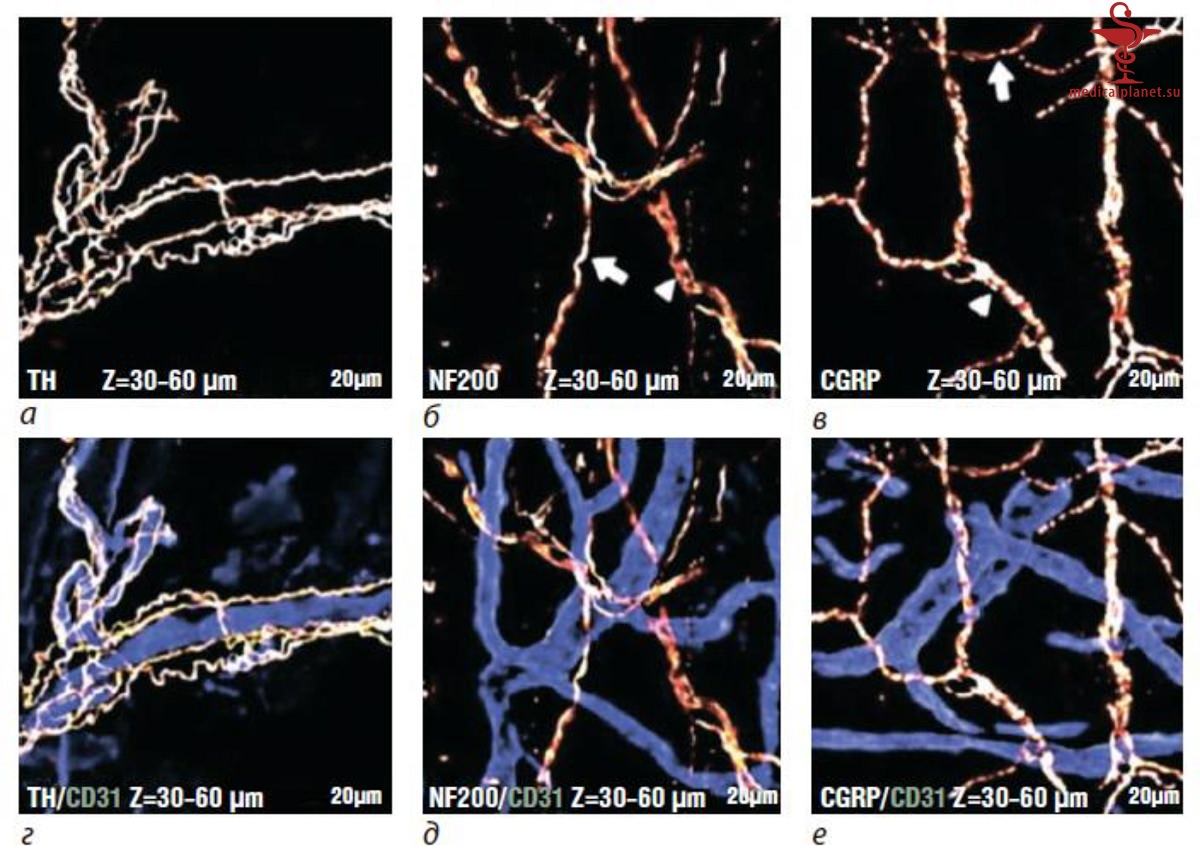
Было показано, что опухолевые цитокины, факторы роста и пептиды стимулируют первичные афферентные нервные волокна, иннервирующие кость. Простагландины, интерлейкины, протоны, брадикинин, хемокины, фактор некроза опухоли-α, фактор роста нервов (NGF) и эндотелины — все это примеры химических медиаторов, выделяемых опухолевыми клетками или воспалительной реакцией хозяина, которые сенсибилизируют нервные окончания, приводя к боли при поражении кости.
Боль при вовлечении кости также имеет невропатический компонент, который обусловлен ростом опухоли, непосредственно разрушающим дистальные концы нервных волокон, иннервирующих кость, а также патологическим разветвлением сенсорных и симпатических нервных волокон.
При хронической боли сенсибилизация отдельных нервных волокон может приводить к снижению порогов возбуждения, увеличению количества рецепторов в нервных окончаниях или привлечению ранее молчавших болевых рецепторов. Центральная сенсибилизация означает повышенную реактивность нейронов центральной нервной системы в ответ на постоянное периферическое нейронное возбуждение.
Эта устойчивая нейронная сигнализация вызывает повышенную реактивность нервной системы, вызывая центральную сенсибилизацию, и может привести к двум основным клиническим проявлениям — аллодинии и гипералгезии. Аллодиния — это болезненное состояние, при котором механические стимулы, обычно не воспринимаемые как беспокоящие, вызывают боль.
Первичная гипералгезия возникает, когда неприятный стимул воспринимается как более болезненный или продолжительный, чем обычно. При вторичной гипералгезии появляется боль, распространяющаяся за пределы первичного пораженного участка. Хотя центральная сенсибилизация может происходить в таламусе и коре головного мозга, чаще всего она наблюдается в дорсальном роге спинного мозга, что приводит к изменению активности и реактивности нейронов дорсального рога в ответ на постоянную болевую стимуляцию.
Центральная сенсибилизация может быть опосредована глутаматом, субстанцией Р, простагландинами и/или факторами роста.
При хронических болевых состояниях, таких как рак, существуют другие механизмы нервной сенсибилизации. Постоянная болевая стимуляция немиелинизированных С-волокон приводит к повышению нейронной чувствительности спинальных нейронов. Сенсибилизация может также происходить, когда постоянная стимуляция приводит к фенотипическим изменениям в нейронах, которые находятся рядом с нейронами, получающими постоянную болевую стимуляцию. Как правило, такая сенсибилизация соседних нейронов происходит в А-β-волокнах, которые в норме не передают болевые стимулы.
После сенсибилизации нейроны Д-β способны передавать как неболевую, так и болевую информацию. Кроме того, при сенсибилизации периферических нервов происходят фенотипические изменения с нейрохимической реорганизацией кости с метастазами. Центральная сенсибилизация опосредована многими факторами, включая глутамат, субстанцию Р, простагландины и факторы роста.
В потенцировании участвуют такие рецепторные каналы, как N-метил-D-аспартат (NMDA), нейрокинин-1 (NK-1), рецептор простагландина Е (EP), тирозинкиназа В (trkB), член 1-го подсемейства V канала переходного рецепторного потенциала катиона (TRPV1), и натриевые каналы. К специфическим изменениям, которые могут опосредовать боль, относятся гипертрофия астроцитов и снижение экспрессии транспортеров обратного захвата глутамата.
Повышение уровня внеклеточного глутамата приводит к экзитотоксичности центральной нервной системы, а длительная боль вызывает центральную сенсибилизацию, что приводит к усилению передачи ноцицептивной информации и аллодинии. Такое повреждение нейронов в результате чрезмерного воздействия на соответствующие рецепторы может способствовать невропатической боли.
Существует множество животных моделей нейронной сенсибилизации в моделях опухолей костей. У нормальных мышей нейромедиатор субстанция Р синтезируется ноцицепторами и высвобождается в спинном мозге при воздействии на бедренную кость раздражающего механического стресса. Субстанция Р, в свою очередь, связывается с рецептором нейрокинина-1, который экспрессируется подмножеством нейронов спинного мозга, и активирует его, вызывая болевой ответ.
У мышей с опухолями костей реорганизация ноцицептивных нервных волокон вызывает механическую аллодинию, когда то, что обычно вызывает выброс субстанции Р при не вызывающем боли уровне механического напряжения, делает стимулы болезненными.
На мышиных моделях было обнаружено локальное прорастание ноцицептивных и симпатических нервных волокон, что свидетельствует об их высокой плотности. В этих моделях флуоресцентно меченные клетки рака предстательной железы вводили в костный мозг мышей, не получавших лечение. Через 26 дней после инъекции ноцицептивные нервные волокна демонстрировали значительное прорастание с увеличением плотности и внешнего вида, образуя сеть патологических нервных волокон (рис. 3).
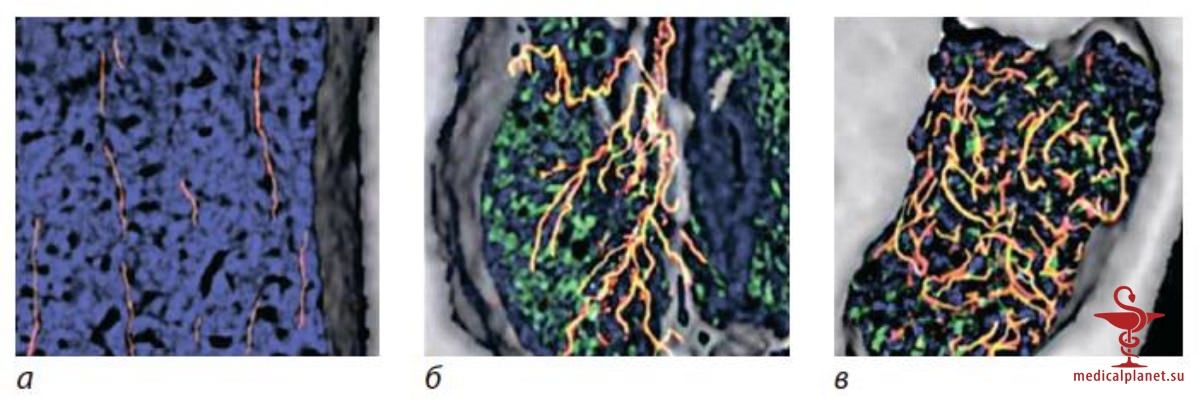
Эти данные свидетельствуют о том, что патологическое опухолевое прорастание ноцицептивных нервных волокон происходит на ранних стадиях метастатического процесса рака предстательной железы. Дальнейшая оценка движущей силы формирования новых ноцицептивных волокон с помощью анализа RT-PCR для NGF показала, что окружающие опухоль воспалительные, иммунные и стромальные клетки являются основным источником NGF в этих вызывающих боли опухолях.
- Читать далее "Борьба с болью при опухолевом поражении костей - по руководству США"
Редактор: Искандер Милевски. Дата публикации: 12.8.2026