

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Транспортные процессы в петле Генле и концентрирование мочи - с точки зрения физиологии человека
Оглавление статьи:- Транспортные процессы в петлях Генле
- Механизмы концентрирования мочи
- Регуляция концентрирования мочи
- Кровоток в мозговом веществе почек
- Нарушение механизмов концентрирования мочи
- Резюме
- Список использованной литературы
а) Транспортные процессы в петлях Генле. В петле Генле осуществляется в первую очередь концентрирование мочи; наиболее важный этап — реабсорбция NaCl в водонепроницаемом восходящем колене петли Генле — достигается в основном за счет Na+, K+, 2Cl--симпорта из просвета петли.
1. Нисходящее колено и тонкая часть восходящего колена петли Генле. Наиболее важной задачей петли Генле является создание гиперосмолярности в мозговом веществе почек, что служит необходимым условием для их способности к концентрированию мочи (см. ниже). Петля Генле представляет собой три совершенно отдельных сегмента нефрона: толстая часть нисходящего колена, затем тонкие части нисходящего и восходящего колена, затем толстая часть восходящего колена.
Нисходящая толстая часть колена петли Генле является продолжением проксимального канальца и обладает транспортными системами (рис. ниже). В тонких частях петли Генле практически не происходит активного транспорта. В этом сегменте катионы просачиваются в просвет петли между плотными межклеточными контактами, а Cl- переходит туда по Cl--каналам — как в люминальной, так и в базолатеральной мембране клетки.
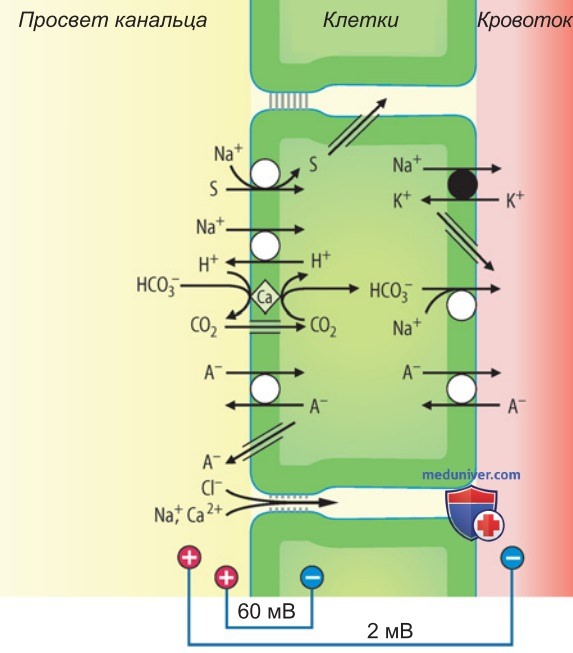
2. Толстая часть восходящего колена петли Генле. Наиболее важным отделом петли Генле является водонепроницаемая толстая часть восходящего колена (рис. 1): в этом сегменте в клетки переходит Na+ путем Na+,K+,2Cl -симпорта. Резкий электрохимический градиент для Na+ способствует переносу К+ и Cl- в клетку. Попадающий таким образом в клетки K+ по большей части возвращается через K+-каналы (ROMK) обратно в просвет петли, захваченные ионы Cl- покидают клетки преимущественно с помощью Cl--каналов (ClCKb) в их базолатеральной мембране.
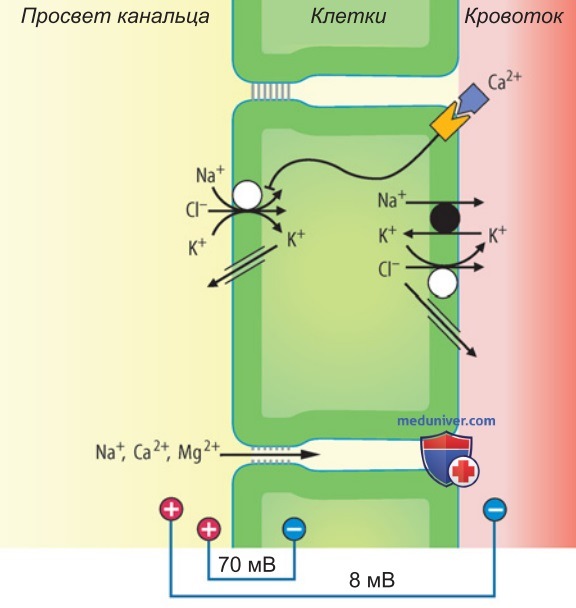
Na+ в обмен на К+ перекачивается из клеток благодаря Na+/К+-АТФазе базолатеральной клеточной мембраны. Поглощенный таким образом K' покидает клетку частично через KCl-симпортер.
P.S. Выход из строя Na+,К+,2Cl--симпортеров, К+-каналов (ROMK) или Cl--каналов (ClCKb) приводит к значительным потерям соли и воды, что может быть проявлением опасных для жизни генетических дефектов, но с другой стороны, также может использоваться при некоторых видах терапии.
3. Потенциал в просвете петли. Возвращение в просвет K+ и выход Cl- из клеток через базолатеральную мембрану создает в просвете петли органа относительный положительный трансэпителиальный потенциал (рис. 1), благодаря которому катионы (Na+, Ca2+, Mg2+) прогоняются через плотные межклеточные контакты из просвета. В дополнение к этим транспортным процессам в петле Генле может идти реабсорбция Na+ с использованием Na+/H+-обменников.
Тем не менее в типичном случае в этом сегменте такой транспорт играет подчиненную роль в реабсорбции Na+.
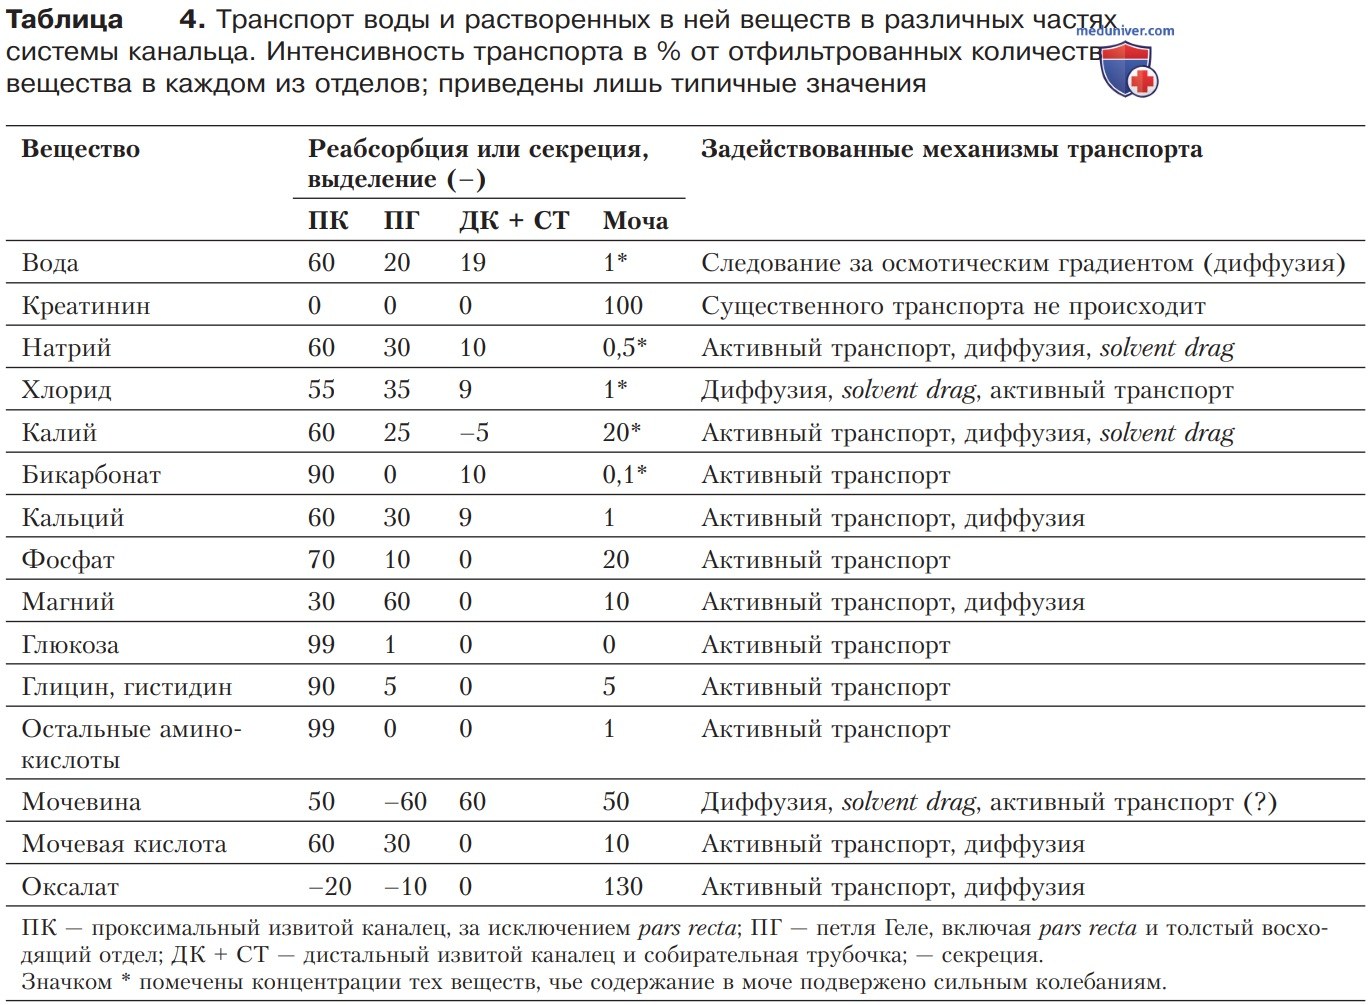
4. Транспорт Mg2+ и Са2+. На петлю Генле приходится значительная доля реабсорбции Ca2+ и Mg2+. (табл. 4). Ингибирование реабсорбции Na+ в этом сегменте, например петлевыми диуретиками, может привести к недостатку Mg2+ из-за чрезмерного выведения его почками. В отличие от Na+ и Са2+ Mg2+ не может больше реабсорбироваться далее в дистальных канальцах.
5. Рецептор Ca2+. Ca2+-рецептор (Са2+-sensing receptor, CаSR) при увеличении концентрации Ca2+ активирует Na+,K+,2Cl--симпортер, угнетая таким образом косвенно реабсорбцию Na+, Mg2+ и Са2+. Кроме того, остающаяся увеличенной концентрация Са2+, как и в проксимальных канальцах, приводит к снижению проницаемости межклеточных контактов, за счет чего уменьшаются объемы парацеллюлярного транспорта Са2+ (и других электролитов).
6. Транспорт NH+4 в петле Генле. Na+,K+,2Cl--симпортер может реабсорбировать NH+4 вместо K+. Реабсорбция NH+4 в толстой части петли Генле приводит к накоплению NH+4. Так как собирательные трубочки проницаемы для NH3/NH+4, высокая концентрация NH+4 в мозговом веществе почек гарантирует эффективное выведение NH+4 с мочой.
б) Механизмы концентрирования мочи. Способность к концентрированию мочи избавляет организм от необходимости постоянно потреблять воду; концентрирование мочи происходят за счет достижения гиперосмолярности в мозговом веществе почек путем накопления электролитов и мочевины, вода изымается из собирательных трубочек.
1. Важность концентрирования мочи для организма. В зависимости от потребностей организма, почки способны выводить как высококонцентрированную (до 1200 мосмолей/л), так и сильно разбавленную (до 50 мосмолей/л) мочу. Благодаря этому организм адаптируется к уровню поступления в него жидкости в широком диапозоне. Концентрированность мочи оказывается результатом реабсорбции воды в собирательных трубочках. Вода следует по осмотическому градиенту в сторону мозгового вещества почек, обладающего высокой осмолярностью. Высокая осмолярность мозгового вещества почек создается при помощи процессов транспорта в коленах петли Генле.
Таким образом, предел того, насколько концентрированная моча может быть получена в конечном счете, определяется осмолярностью мозгового вещества почек.
2. Транспорт электролитов в петле Генле. В восходящем колене петли Генле реабсорбируется NaCl, за которым не может последовать вода (рис. 2). Транспорт в восходящем колене петли Генле, таким образом, снижает осмолярность в просвете петли и увеличивает осмолярность в интерстициальном пространстве. Рост осмотического градиента в интерстициальной жидкости позволяет изымать из нисходящего колена петли Генле больше воды, чем осмотически активных растворенных в ней веществ, увеличивая осмолярность просвета петли по направлению к ее концу.
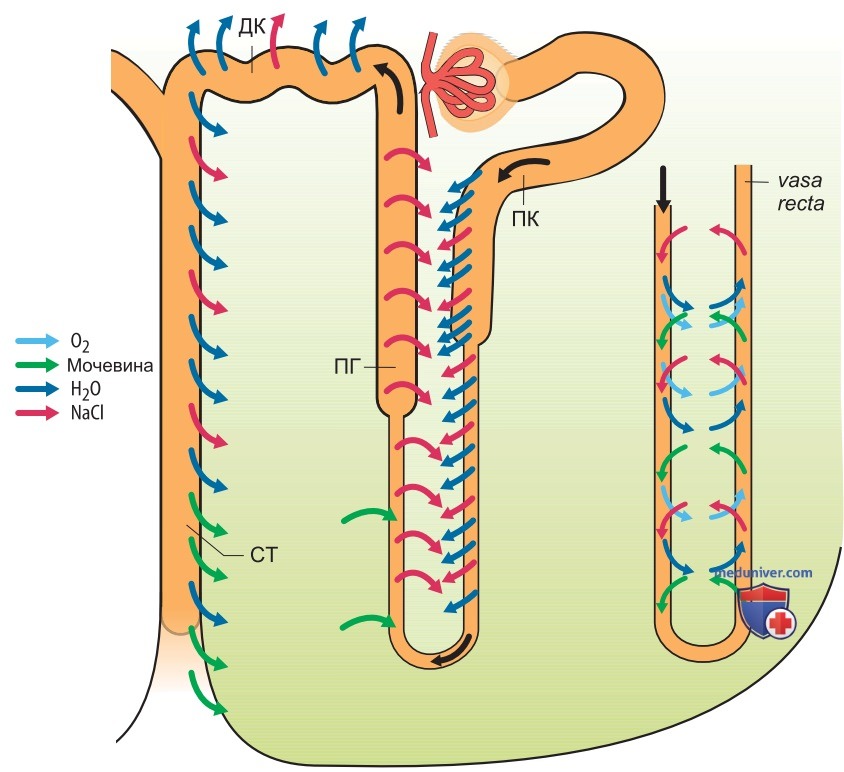
В толстой части петли Генле реабсорбция NaCl активная и энергозависимая. В тонкой части восходящего колена петли Генле реабсорбция NaCl пассивная. Попавший в интерстициальную жидкость NaCl способствует изъятию воды из относительно непроницаемой для NaCl тонкой части восходящего колена петли Генле и, таким образом, обусловливает концентрирование жидкости в ее просвете.
Расположение канальцев в виде петли позволяет в четыре раза превысить осмолярность крови в завитке петли (противоточная система; рис. 2), что достигается без необходимости создания резких градиентов на отдельных эпителиях ее колен. При возврате в корковое вещество почек петля Генле отдает в интерстициальную жидкость не воду, а только растворенные в ней вещества, и осмолярность снова падает. В конце петли Генли жидкость в ее просвете даже гипотоническая. Таким образом, при движении по петле Генле жидкость в ее просвете теряет в общей сложности меньше воды, чем растворенных в ней веществ.
3. Вклад мочевины в концентрирование мочи. Толстая часть петель Генле, дистальные канальцы и кортикальные собирательные трубочки мало проницаемы для мочевины. Реабсорбция воды в дистальных канальцах и кортикальных собирательных трубочках увеличивает концентрацию мочевины в их просветах, что приводит к резким градиентам мочевины между просветами и интерстициальным пространством.
Клетки медуллярных собирательных трубочек имеют переносчики мочевины и соответственно (в случае антидиуреза) обладают очень высокой проницаемостью для мочевины. Мочевина следует по химический градиенту из просвета медуллярной собирательной трубочки в интерстициальную жидкость мозгового вещества почек. Мозговое вещество почек способно аккумулировать в себе мочевину до концентраций в несколько сот ммоль/л (рис. 3). Мочевина в интерстициальном пространстве изымает воду из тонкой части нисходящего колена петли Генле, увеличивая тем самым концентрацию NaCl в ее просвете.
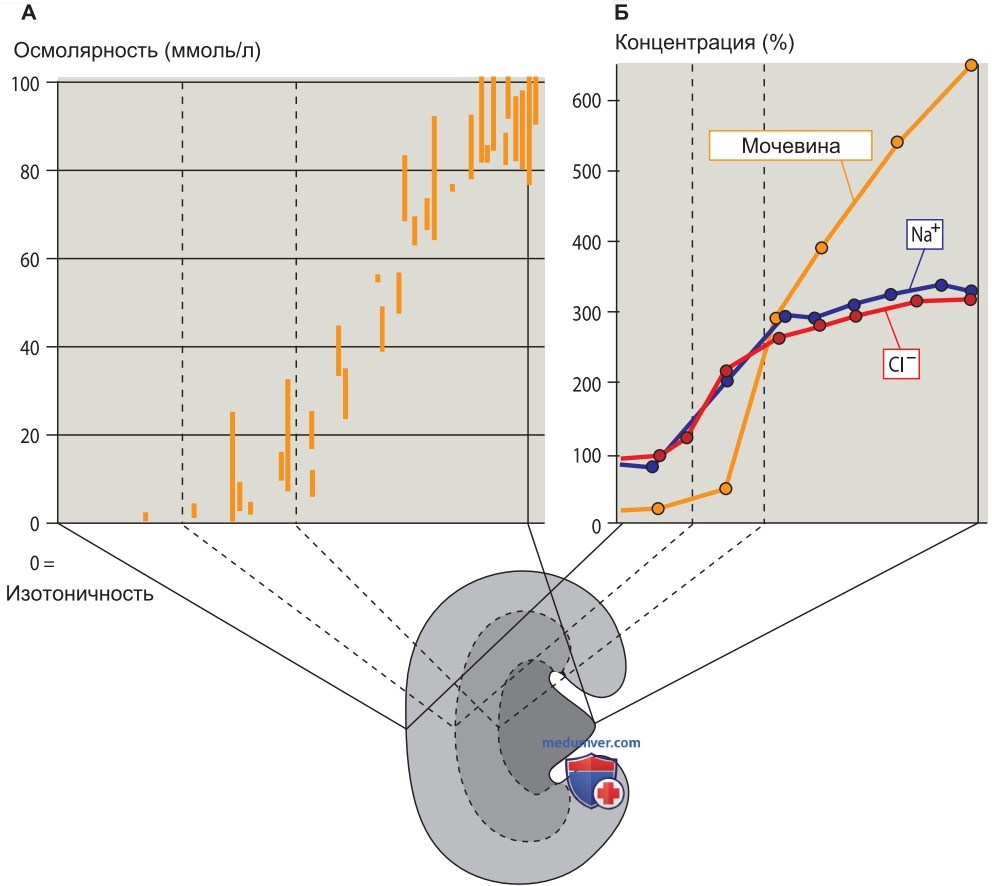
Так создается градиент NaCl между интерстициальным пространством и просветом петли Генле, служащий движущей силой для реабсорбции NaCl в тонкой части восходящего колена петли Генле. В этом выражается роль мочевины в концентрировании мочи.
в) Регуляция концентрирования мочи. Предпосылкой для концентрирования мочи служит активация водных каналов в собирательных трубочках под действием антидиуретического гормона (АДГ).
1. АДГ-зависимая реабсорбция воды. АДГ стимулирует (с помощью цАМФ) включение водных каналов (аквапорин 2) в люминальную мембрану клеток дистальных канальцев и собирательных трубочек, увеличивая тем самым ее проницаемость для воды. Под влиянием АДГ вода, таким образом, может быть реабсорбирована по направлению осмотического градиента (антидиурез).
Гормон также стимулирует транспорт Na+ в петле Генле и способствует активации транспортеров мочевины в медуллярных собирательных трубочках (см. выше).
2. Водный диурез. При недостатке гормона дистальные канальцы и собирательные трубочки остаются непроницаемыми для воды и, несмотря на высокую осмолярность в мозговом веществе почек, из организма выводится гипоосмолярная моча (водный диурез). Поэтому в общей сложности организмом теряется больше воды (за счет так называемой свободной воды), чем требовалось бы для плазмоизотоничного выделения растворенных в ней веществ.
г) Кровоток в мозговом веществе почек. Задачу кровоснабжения мозгового вещества почек осуществляют сосуды, организованные в виде петель; отличающееся выщелачивание предотвращается, но одновременно влияет на снабжение клеток мозгового вещества почки.
1. Механизм противотока в vasa recta. Гиперосмолярность мозгового вещества почек очень быстро бы уменьшалась и сходила на нет, если бы мозговое вещество кровоснабжалось обычным образом. Однако расположение vasa recta в виде длинных петель предотвращает быстрое вымывание оттуда хлорида натрия и мочевины. Нисходящее колено vasa recta, в самом деле, вбирает в себя NaCl и мочевину из интерстициального пространства и восходящего колена vasa recta (рис. 2) в соответствии с химическими градиентами, и, таким образом, на изгибе петли достигается столь же высокая осмолярность, как в интерстициальной жидкости.
В восходящем колене vasa recta NaCl и мочевина покидают кровь снова, так что в итоге сосуды перенимают только небольшую часть гиперосмолярности мозгового вещества, и в конце vasa recta осмолярность крови повышена лишь немного.
2. Недостаток питательных веществ в мозговом веществе почек. Расположение vasa recta петлями очевидно затрудняет отдачу веществ, таких как глюкоза и О2, а также удаление продуктов метаболизма, таких как CO2 и лактат. Например, из оксигенированных эритроцитов нисходящего колена vasa recta изымается О2 дезоксигенированными эритроцитами восходящего колена vasa recta, и в результате они обедняются О2 еще до того, как достигнут тканей мозгового вещества почек.
Таким образом, система противотока ведет к недостатку всего того, что в мозговом веществе почек потребляется, и накоплению всего того, что там продуцируется. По этой причине затратные для метаболизма энергоемкие процессы транспорта в расположенной более глубоко тонкой части петли Генле уже невозможны и концентрирование мочи должно осуществляться путем пассивной диффузии Cl- и мочевины.
д) Нарушение механизмов концентрирования мочи. К нарушениям концентрирования мочи ведут нарушения процессов транспорта в канальцах, нехватка мочевины и выщелачивание мозгового вещества почек.
1. Причины расстройства механизмов концентрирования мочи. Процесс концентрирования мочи может быть затруднен, если не будет достигнута гиперосмолярность в мозговом веществе почек или если в результате пониженной проницаемости для воды собирательных трубочек не произойдет выравнивания по осмосу между жидкостью в просвете трубочек и интерстициальным пространством. Осмолярность значительно снижается при нарушении реабсорбции NaCl в толстой части петли Генле. Помимо этого, гиперосмолярность мозгового вещества может быть сниженной по ряду причин:
- Петлевые диуретики, генетические дефекты: петлевые диуретики непосредственно ингибируют Na+,K+,2Cl--симпортер. Кроме того, генетические дефекты переносчиков, К+-каналов (ROMK) или Cl--каналов (ClCKb/Barttin) или их повреждение токсинами влияют на реабсорбцию NaCl в толстой и/или тонкой частях петли Генле.
- Дефицит калия: при недостаточной внутриклеточной концентрации К+ К+-каналы, обращенные в просвет, закрываются, концентрация К+ в них уменьшается, это замедляет активность Na+,K+,2C1--симпортера, и реабсорбция NaCl падает.
- Гиперкальциемия: высокие внеклеточные концентрации Ca2+ вызывают смыкание плотных контактов, уменьшая их проницаемость и тем самым препятствуя парацеллюлярной реабсорбции Na+, Ca2+ и Mg2+. Кроме того, высокая внеклеточная концентрация Ca2+ активирует рецепторы Ca2+ в клеточной мембране, которые оказывают ингибирующее влияние на процессы реабсорбции в толстой части петли Генле (рис. 1).
Повышение чувствительности рецепторов по генетическим причинам может привести к утрате почками нормальной способности к концентрированию мочи даже при нормальной концентрации Ca2+.
- Недостаток белка: осмолярность в мозговом веществе почек снижается даже из-за диеты с низким содержанием белка, так как это уменьшает количество доступной мочевины.
- Воспаления почек: наличие процессов воспаления в мозговом веществе почек (пиелонефрит, интерстициальный нефрит) стимулирует выброс медиаторов воспаления с последующей дилатацией vasa recta. В результате вещества, создающие гиперосмолярность в мозговом веществе почек, из него вымываются.
- Повышение артериального давления: мозговое вещество почек имеет низкую способность к авторегуляции в ответ на повышене кровяного давления, и увеличение интенсивности кровотока также приводит к вымыванию из него создающих гиперосмолярность веществ (прессорный диурез).
- Осмотический диурез: если отфильтрованные осмотически активные вещества частично и совсем не реабсорбируются, то страдает и реабсорбция жидкости, особенно в нисходящем колене петли Генле, из-за чего нарушается противоточный механизм. В итоге возникает осмотический диурез, происходит выделение большого количества изотонической мочи из организма.
- Несахарный диабет: при снижении проницаемости почечного эпителия для воды при дефиците АДГ (центральный несахарный диабет) или нечувствительности почечного эпителия к АДГ (почечный несахарный диабет) из организма может выводиться в сутки до 20 л гипотонической мочи.
1. Транспортные процессы в петле Генле и концентрирование мочи. Почки способны выделять как высококонцентрированную (1200 мосмоль/л), так и сильно разбавленную (до 50 мосмоль/л) мочу. Существуют факторы, поддерживающие высокую осмолярность мозгового вещества почек а следовательно, и концентрирование мочи:
- Очень важным этапом является реабсорбция NaCl в толстой части петли Генле, за которым не может последовать H2O. NaCl выводится из раствора в нисходящей части петли Генле и увеличивается осмотическое давление по направлению к изгибу петли. Благодаря организации в виде петли в мозговом веществе почек действует система противотока, что приводит к созданию высокой осмолярности, хотя эпителиальные клетки способны поддерживать на мембранах лишь умеренный хеми-осмотический градиент.
Повышению осмолярности в мозговом веществе почек способствует мочевина, которая переходит в интерстициальное пространство мозгового вещества из медуллярных собирательных канальцев.
- Высокая осмолярность в мозговом веществе почек создает осмотический градиент для реабсорбции воды через водные каналы, которые встраиваются в люминальную мембрану в дистальных канальцах и собирательных трубочках под влиянием антидиуретического гормона.
Организация vasa recta в виде петель предотвращает «вымывание» высокой осмолярности, однако приводит к затруднению обмена метаболитами между мозговым веществом почек с кровотоком.
2. Нарушение механизмов концентрации мочи. Способность почек к концентрированию мочи может быть ограничена:
• ингибированием Na+,K+,2Cl--симпортера в толстой части петли Генле (петлевыми диуретиками),
• дефицитом калия,
• гиперкальциемией,
• осмотическим диурезом,
• недостатком мочевины (при диете с низким содержанием белка),
• увеличением интенсивности кровотока по vasa recta (при воспалении почек, повышении артериального давления),
• дефицитом АДГ или его недостаточной эффективностью.
Видео физиология фильтрации в почках и поддержки осмотического давления крови - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Транспортные процессы в дистальной части нефрона - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 23.6.2025