

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Процессы транспорта в проксимальных канальцах - с точки зрения физиологии человека
Оглавление статьи:- Перенос Na+ и HCO-3 в проксимальных канальцах
- Процессы транспорта других электролитов в проксимальных канальцах
- Процессы транспорта углеводов в проксимальных канальцах
- Процессы транспорта аминокислот, протеинов и мочевины в проксимальных канальцах
- Процессы транспорта органических кислот и оснований в проксимальных канальцах
- Процессы транспорта ксенобиотиков в проксимальных канальцах
- Резюме
- Список использованной литературы
а) Перенос Na+ и HCO-3 в проксимальных канальцах. В проксимальных канальцах поглощается около двух третей отфильтровавшихся количеств воды и NaCl и 95% отфильтровавшегося карбоната.
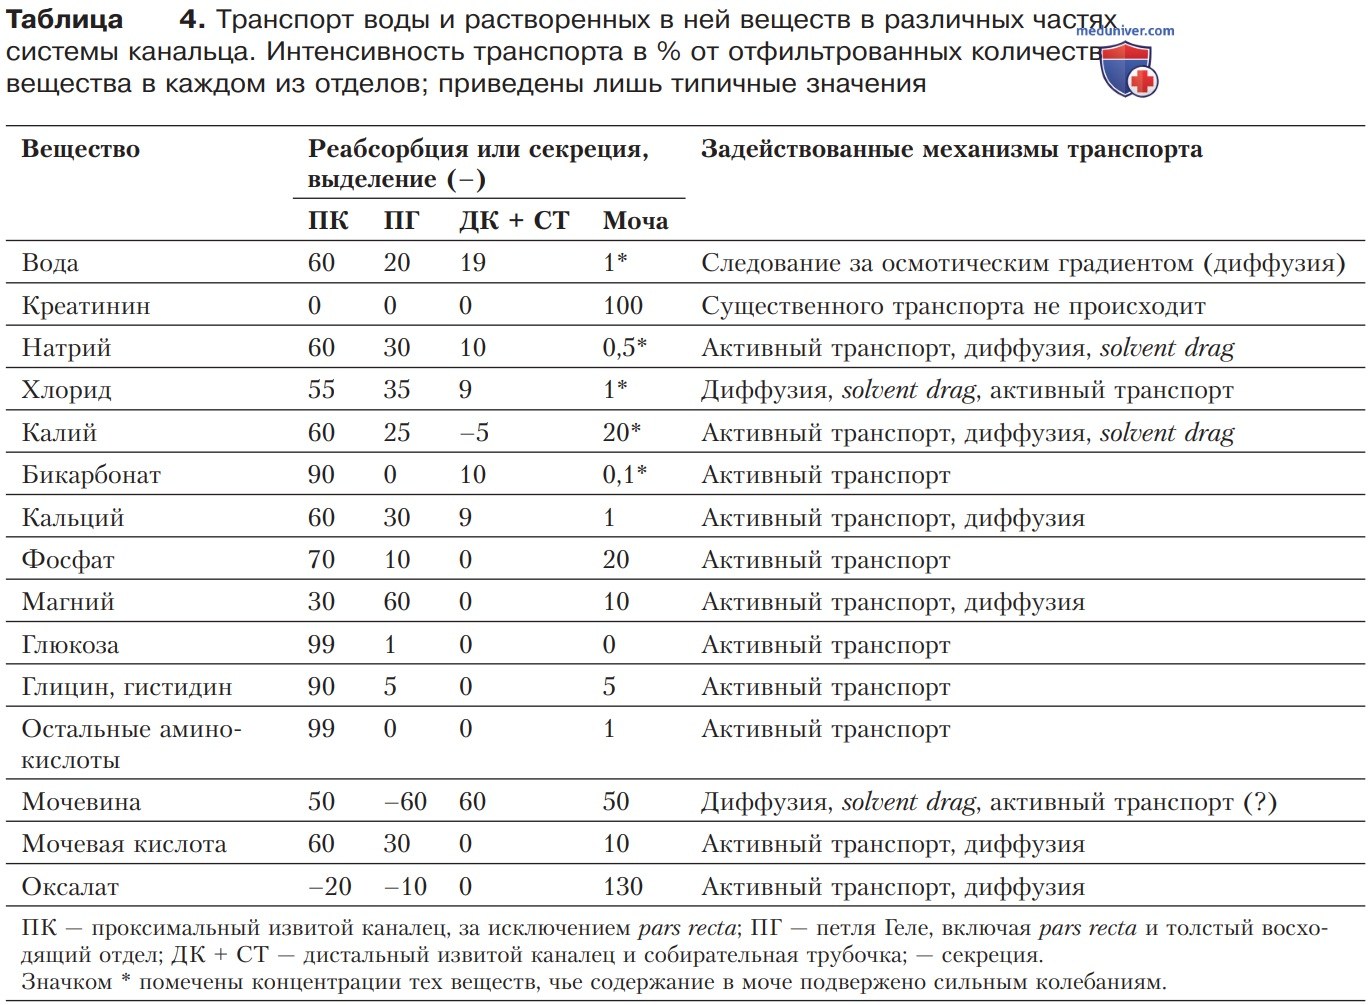
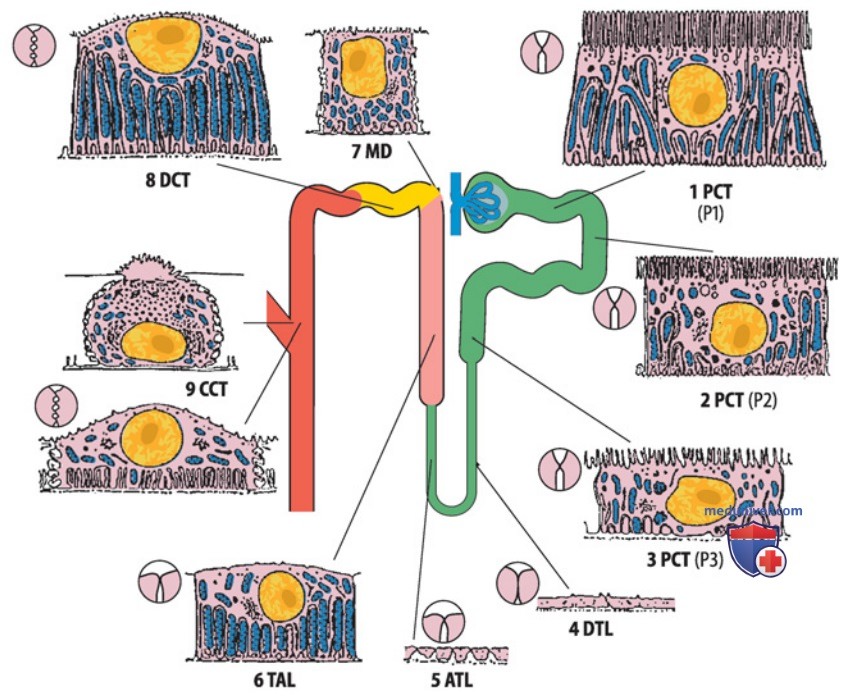
1. Массовый характер транспорта в проксимальных канальцах. В проксимальных канальцах реабсорбируется большая часть отфильтровавшейся воды и растворенных в ней веществ (табл. 4). В целом можно утверждать, что в проксимальных канальцах не может устанавливаться высокий градиент концентраций из-за очень большой пропускной способности их стенок (см. ниже). Основные транспортные системы в проксимальных канальцах показаны на рис. 1.
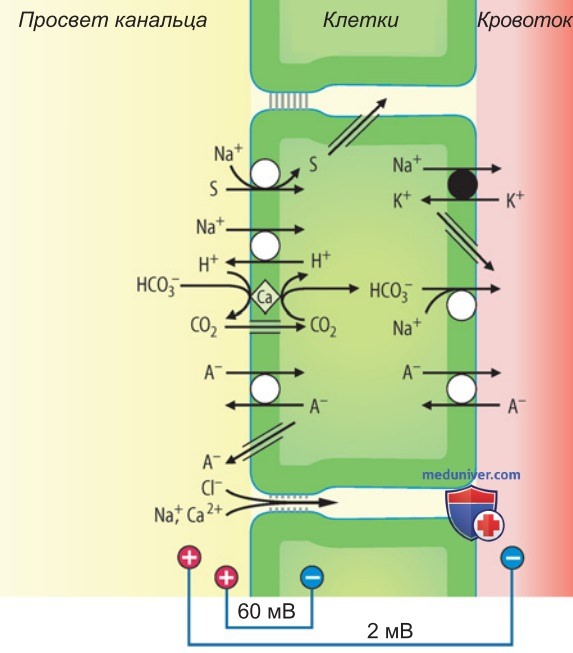
Общая характеристика транспортных процессов в эпителиальных клетках была представлена в отдельной статье на сайте - просим Вас пользоваться формой поиска по сайту выше. Через внешнюю мембрану клеток проксимального канальца идет последовательный согласованный транспорт Na+. Движущей силой этих процессов переноса является резкий электрохимический градиент Na+ между внеклеточным и внутриклеточным пространствами.
Он поддерживается при помощи Na+/K+-АТФа-зы на базолатеральной мембране клетки, которая выкачивает Na+ в обмен на K+ из клетки. Накапливающиеся таким образом в клетке ионы K+ выводятся частично через К+-каналы; так создается отрицательный внутриклеточный потенциал на мембране.
2. Реабсорбция бикарбоната. Количественно наиболее значимым транспортным процессом, связанным с Na+, является работа Na+/H+-обменника (антипортера), при которой Н+ накачивается в обмен на вывод ионов Na+ из клетки. В просвете канальцев ионы H+ вступают в реакцию с отфильтрованными количествами HCO-3, которая ведет к разложению угольной кислоты до CO2 и воды.
Эта реакция обычно протекает очень медленно, но ускоряется за счет встроенной во внешнюю клеточную мембрану карбоангидразы IV. Образующийся CO2 диффундирует в клетку, где он (вместе с водой) при катализе карбоангидразой конвертируется обратно в Н+ и HCO-3. HCO-3 переходит в межклеточное пространство благодаря Na+, 3HCO-3-симпорту.
Движущей силой для этого вида транспорта является потенциал на клеточной мембране, поскольку перенос как HCO-3, так и Na+ происходит против химического градиента концентрации в клетке. Приведенные механизмы вносят наибольший вклад в реабсорбцию HCO-3.
3. Сопряженный с Na+ симпорт. К другим процессам транспорта, связанным с совместным с Na+ переходом сквозь внешнюю мембрану, относятся реабсорбция глюкозы, аминокислот, лактата, других органические кислот, фосфата, сульфата и т. д. Накапливаемые таким образом в клетке субстраты покидают ее через различные пассивные процессы переноса в базолатеральной мембране.
4. Парацеллюлярный путь реабсорбции. Реабсорбция Na+, HCO-3, глюкозы и аминокислот происходит в значительной степени за счет изымания из жидкости в канальцах этих осмотически активных веществ. Вода втекает через аквапориновые каналы в клеточной мембране и между плотными межклеточными контактами. Вместе с этим током поглощающейся воды захватываются и растворенные в ней вещества, такие как Na+ или Cl- (solvent drag, перенос вместе с растворителем).
5. Потенциал в просвете канальца. Сопряженные с Na+ процессы транспорта выносят положительно заряженный Na+, за счет чего генерируют в просвете начала проксимального канальца относительный отрицательный потенциал. Во второй половине проксимальных канальцев большинство субстратов уже реабсорбируется, что вызывает его снижение. Концентрация в просвете канальца веществ, которые реабсорбируются сравнительно слабо либо вообще не реабсорбируются, немного увеличивается (рис. 2).
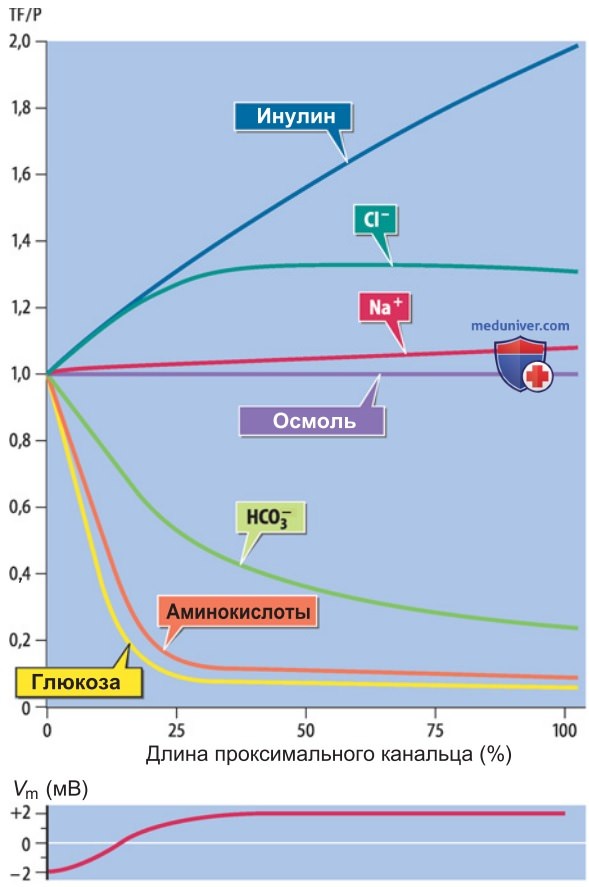
Одним из таких веществ, повышающих свою концентрацию в просвете, является хлор. Увеличение концентрации Cl- в просвете канальца способствует его диффузии из него. Диффузия Cl- приводит к тому, что ко второй половине проксимального канальца относительный потенциал в нем становится положительным. Этот потенциал перегоняет катионы, такие как Na+, K+ и Са2+, через плотные межклеточные контакты из люмена.
В целом до половины объема пассивной реабсорбции Na+ в проксимальных канальцах приходится на solvent drag и перемещение под действием электрического потенциала. Увеличение концентрации кальция в плазме снижает проницаемость межклеточных контактов, уменьшая в результате парацеллюлярный транспорт.
6. Значение пассивной реабсорбции Na+. На Na+,3HCO-3-симпорт (см. выше) и парацел-люлярный транспорт приходится большая часть пассивной, а также почти третья часть активной реабсорбции Na+. В то время как Na+/К+-АТФа-за расходует 1 молекулу АТФ для перекачки каждых трех ионов Na+, в проксимальных канальцах может реабсорбироваться до 10 ионов Na+ за каждую затраченную молекулу АТФ.
Поскольку почки потребляют энергию в первую очередь для Na+-реабсорбции, подобная экономия на механизмах реабсорбции Na+ имеет большое значение.
б) Процессы транспорта других электролитов в проксимальных канальцах. В проксимальных канальцах фосфат, сульфат, Mg2+ и Са2+ реабсорбируются, а NH+4 секретируется.
1. Фосфат. Фосфат попадает в клетку при помощи 3Na+,HPO4-симпортера (NaPi-IIa). Через унипортер он отдается клеткой в кровоток. Как правило, около 70% отфильтровавшегося количества фосфата реабсорбируется в проксимальных канальцах.
SO2-4. Сульфат реабсорбируется в проксимальных канальцах 3Na+SO2-4-симпортером. Он покидает клетки проксимальных канальцев при помощи анионного обменника.
2. Синтез и секреция NH+. В проксимальных канальцах NH+4 синтезируется при дезаминировании глутамина, который был получен клетками с помощью связанного с Na+ транспорта из крови. NH3 покидает клетку главным образом просто через внешнюю мембрану и связывается с H+ в кислой среде просвета канальцев. Образовывающийся при дезаминировании глутамина α-кетоглутарат используется в том числе для глюконеогенеза.
3. Mg2+. В проксимальных канальцах Mg2+ реабсорбируется лишь умеренно и поэтому его концентрация в просвете возрастает по направлению к концу проксимального канальца.
4. Са2+. Кальций реабсорбируется в проксимальных канальцах в основном пассивным образом, переходя из просвета канальцев в клетки парацеллюлярно.
P.S. Гомеостатический базолатеральный транспорт Н+ и Са2+. Na+/Са2+-антипортеры и Na+/H+-антипортеры в базолатеральной мембране клетки служат в первую очередь для регуляции внутриклеточных концентраций Са2+ и H+.
в) Процессы транспорта углеводов в проксимальных канальцах. Глюкоза, галактоза и другие сахара всасываются обратно в проксимальных канальцах почти полностью.
1. Глюкоза. Моносахариды, такие как глюкоза и галактоза (но не фруктоза), реабсорбируются в проксимальных канальцах связанным с Na+ симпортом сквозь люминальную клеточную мембрану. Моносахариды покидают клетку через унипортер (GLUT2) и не используются в дальнейшем для получения энергии.
Перенос глюкозы из полости канальца осуществляется по меньшей мере двумя различными транспортными процессами: при помощи переносчиков с несколько более низкой аффинностью, которые осуществляют сопряженный с ионами Na+ транспорт только глюкозы (SGLT2), и при помощи переносчиков с высоким сродством, которые осуществляют сопряженный с ионами Na+ транспорт глюкозы либо галактозы (SGLT1).
SGLT2 особенно хорошо представлены на протяжении первой половины длины проксимальных канальцев, и реабсорбируют с относительно малыми затратами расходуемой на свою работу энергии большую часть отфильтровавшейся глюкозы, SGLT1 работают ближе к концу проксимальных канальцев, делая возможным продолжение (хотя и энергоемкое) реабсорбции глюкозы, даже когда она достигает минимальных концентраций в просвете канальца, благодаря своему высокому сродству, а также большой движущей силе. SGLT1 встречаются также в тонком кишечнике.
2. Почечный порог для глюкозы. Максимальная пропускная способность транспорта в почках обычно достигается при концентрации в плазме крови 10 ммоль/л (почечный порог; рис. ниже). Ускорение фильтрации в клубочках не только увеличивает количество фильтрата, но и повышает — здесь нет уверенности в достоверности известных механизмов — реабсорбционную способность. В связи с этим почечный порог в значительной степени зависит от скорости фильтрации.
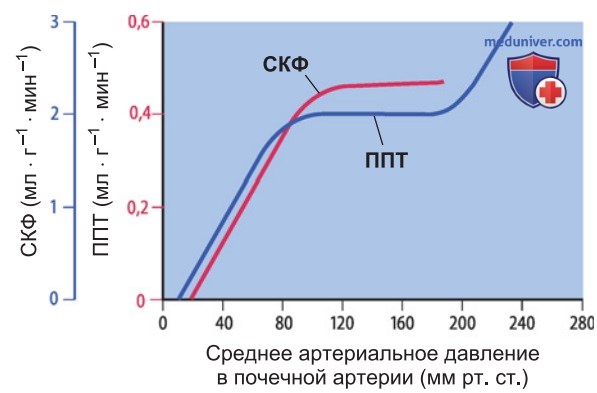
Натощак концентрация глюкозы в плазме держится на уровне 5 ммоль/л, таким образом почечный порог будет превышен лишь тогда, когда концентрация глюкозы в плазме удвоится.
3. Глюкозурия. При сахарном диабете концентрация глюкозы в плазме может подняться выше почечного порога и после этого глюкоза начнет выводиться из организма (переполнение мочи глюкозой, диабетическая глюкозурия). Отмеченное засахаривание мочи дало название соответствующему заболеванию. Тем не менее уменьшение максимальной пропускной способности в канальцах тоже может служить источником глюкозурии (почечная глюкозурия).
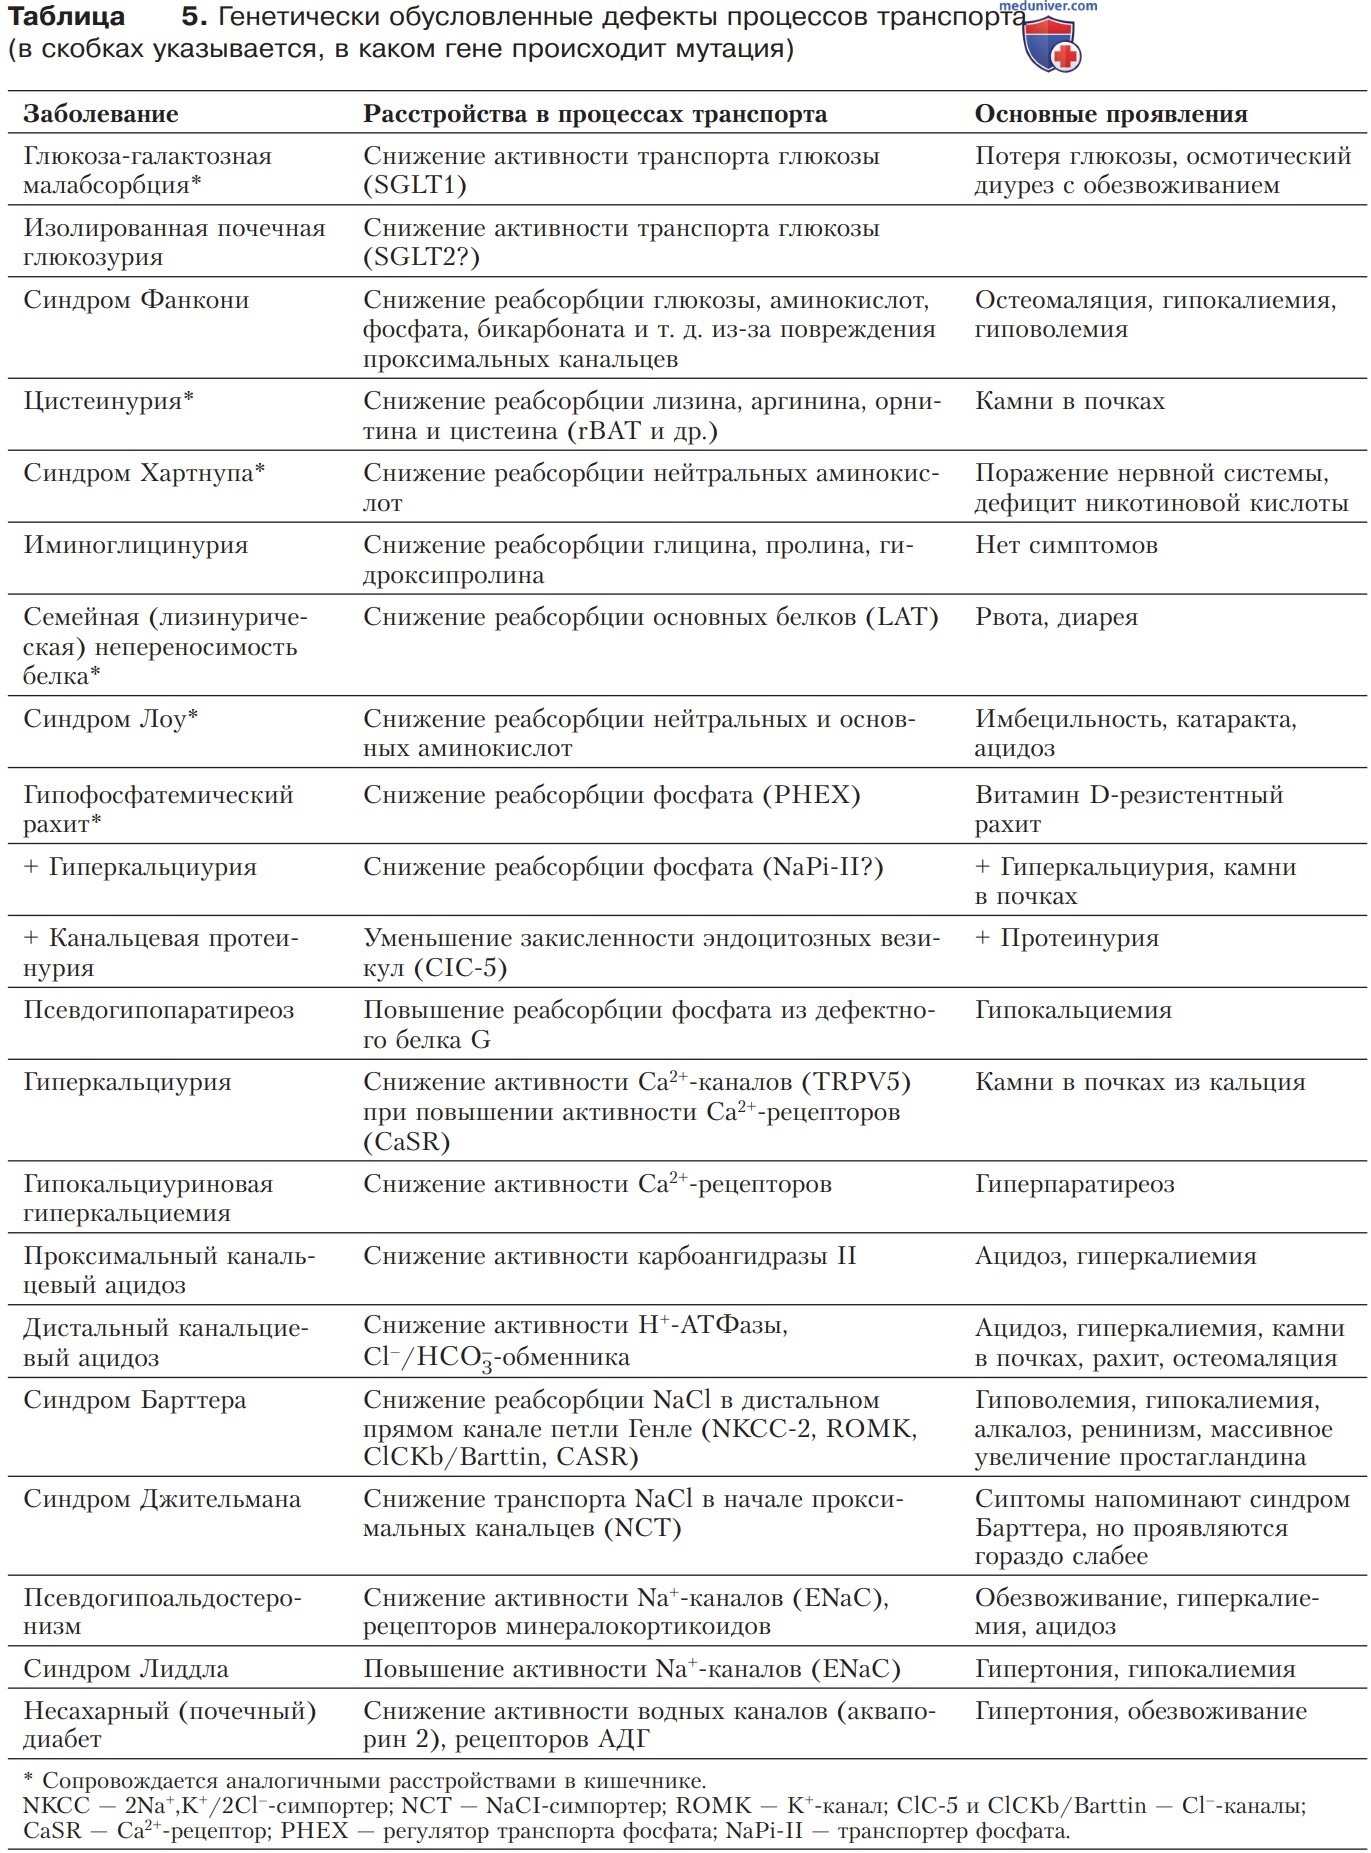
Максимальная пропускная способность транспорта зачастую снижается во время беременности, реже причинами глюкозурии могут быть генетические дефекты или повреждения эпителия канальцев (табл. 5). Переносчики глюкозы могут быть затронуты прямо или косвенно. Косвенно их активность может ингибироваться в том числе из-за влияния Na+/K+-АТФазы (недостаток поступающей энергии) или увеличения внутриклеточной концентрации Na+ (деполяризация и ослабление движущей силы для связанного с Na+ транспорта глюкозы.
При выходе из строя переносчиков глюкозы с низким сродством SGLT2 падает прежде всего пропускная способность транспорта (тип А), а при выходе из строя глюкозо-галактозных переносчиков с высоким сродством SGLT1 глюкоза начинает выводится уже задолго до достижения максимальной пропускной способности транспорта (тип В).
3. Остальные сахара. Галактоза активно вторично всасывается посредством SGLT1, как и глюкоза, а фруктоза реабсорбируется через пассивный унипортер (GLUT5). Некоторые дисахариды расщепляются ферментами (мальтаза, трегалаза) на внешней мембране, а моносахариды уже могут быть реабсорбированы.
г) Процессы транспорта аминокислот, протеинов и мочевины в проксимальных канальцах. Мочевина реабсорбируется в проксимальных канальцах частично, а аминокислоты, пептиды и белки — почти полностью.
1. Аминокислоты. Большинство отфильтрованных аминокислот практически полностью реабсорбируется. Реабсорбция осуществляется с помощью нескольких параллельно работающих переносчиков аминокислот, расположенных на внешней клеточной мембране (рис. 3). За транспорт кислых аминокислот (глутамата и аспартата) и нейтральных аминокислот (например, аланина или фенилаланина), а также пролина и таурина отвечают отдельные, сопряженные с Na+, переносчики.
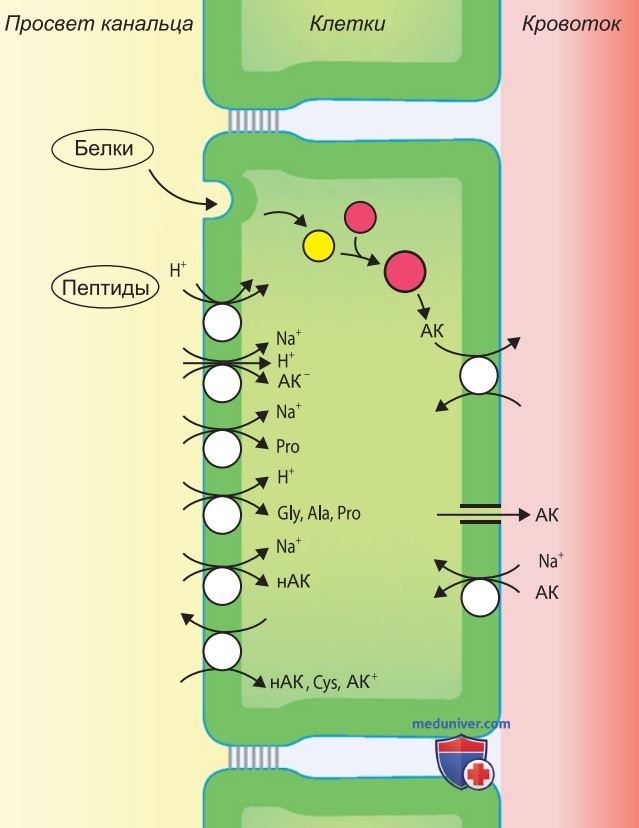
Основные аминокислоты (аргинин, лизин, орнитин) и серосодержащие аминокислоты (цистеин) реабсорбируются тем же переносчиком (rBAT), что и нейтральные аминокислоты. При насыщении транспортных систем аминокислот и превышении этого почечного порога можно говорить об аминоацидурии (переполнение мочи аминокислотами). Как и глюкозурия, аминоацидурия может тоже быть результатом расстройств процессов транспорта в почках (см. выше).
2. Пептиды и белки. Специфические ди- и трипептиды (в т. ч. карнитин) могут реабсорбироваться в проксимальных канальцах сопряженными с Na+ пептидными симпортерами (Pept1 и Pept2) (рис. 3). Кроме того, на люминальной мембране ферменты, пептиды и белки (в т. ч. гормоны пептидной природы) могут расщепляться (аминопептидазами, эндопептидазами, γ-глутамилпептидазой). Образующиеся в результате этого аминокислоты затем реабсорбируются.
Белки, имеющие большую молекулярную массу, а также белки и пептиды, в структуре которых присутствуют дисульфидные мостики (например, инсулин, альбумин), усваиваются клетками проксимальных канальцев в ходе эндоцитоза (рис. 3). В белоксодержащие эндоцитозные везикулы закачиваются ионы Н+ (с помощью Na+/H+-обменника и Н+-АТФазы), что сразу ведет к закислению их люмена.
На заключительном этапе везикулы сливаются с лизосомами, где содержащиеся в них белки гидролизуются под действием лизосомных ферментов. Аминокислоты затем транспортируются специфичным для каждого их типа путем из везикул в цитозоль, а оттуда сквозь базолатеральную мембрану поступают в контактирующий с мембраной кровоток.
Обычно реабсорбция в проксимальных канальцах предотвращает любое сколько-нибудь значительное выделение белков (для альбумина — менее <30 мг/сут.), хотя клубочковый фильтр даже в норме не является полностью непроницаемым для белков и позволяет нескольким граммам белков плазмы крови проникать в фильтрат (особенно белкам с небольшой молекулярной массой, таким как лизоцим, α- и β-микроглобулин, а также альбумин).
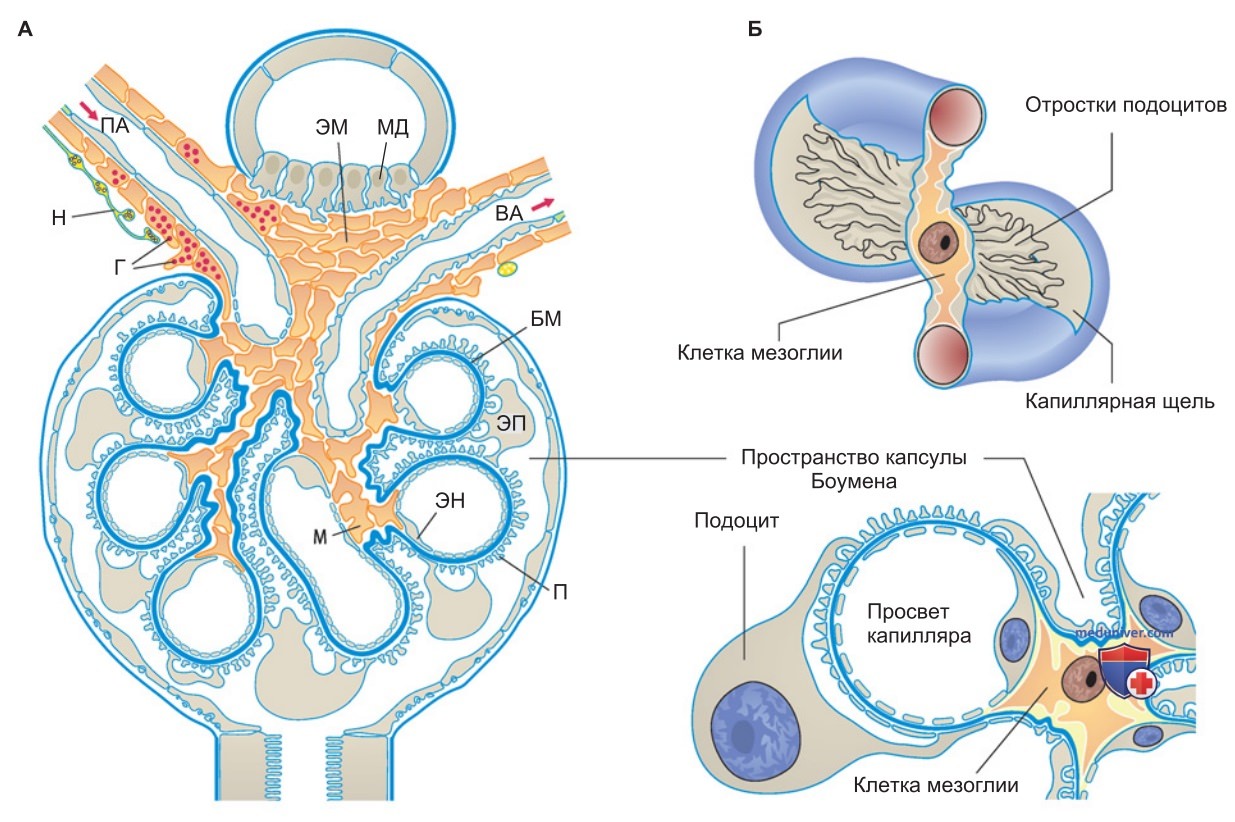
При различных нарушениях работы клубочкового фильтра в почке (рис. ниже) в фильтрат попадают, однако, уже такие количества белков, которые канальцы, имеющие к этому весьма ограниченную способность, реабсорбировать уже не успевают, и белки начинают постепенно выводиться из организма.
Причиной протеинурии может быть и наличие дефекта в работе канальцев, который совсем ухудшает реабсорбцию в них, из-за чего они перестают справляться даже с теми количествами белков, которые отфильтровываются в норме (табл. 5).
3. Мочевина. Мочевина хорошо проходит через эпителий проксимальных канальцев благодаря транспортным белкам. Соответственно чуть более половины отфильтрованной мочевины реабсорбируется в проксимальных канальцах. В мозговом веществе почек мочевина поступает в собирательные трубочки, а оттуда в тонкую часть петли Генле (рециркуляция мочевины). Около половины отфильтрованной мочевины в конечном счете выводится из организма.
д) Процессы транспорта органических кислот и оснований в проксимальных канальцах. Органические кислоты и основания в проксимальных канальцах реабсорбируются и секретируются при помощи анионных обменников, унипортеров и сопряженных с Na+ транспортных процессов.
1. Реабсорбция и секреция органических кислот. Некоторые органические кислоты (такие как лактат, цитрат, ацетат, ацетацетат) реабсорбируются из просвета канальцев сквозь люминальную клеточную мембрану за счет сопряженных с Na+ процессов транспорта.
С другой стороны, те же сопряженные с Na+ процессы транспорта позволяют клетке получать сквозь базолатеральную мембрану органические кислоты из крови. В клетке кислоты либо используются для получения энергии (особенно жирные кислоты), либо превращаются в глюкозу (лактат), или отдаются через анионные обменники в клеточной мембране в просвет канальца или кровь.
P.S. Дикарбоновые кислоты, получаемые клеткой посредством соответствующих дикарбоксилатных транспортеров, сопряженных с Na+, сопоставимы с другими доступными клетке органическими кислотами по уровню участия в получении энергии для метаболизма. α-Клетоглутарат также может быть рекрутирован для нужд метаболизма. Градиент дикарбоновых кислот и 2-оксоглутарата по разные строны клеточной мембраны обеспечивает его движущую силу для клеточного поглощения других органических кислот (третичный активный транспорт).
Накопленные в клетке кислоты выводятся в просвет канальца отчасти через анионные обменники или унипортеры в люминальной мембране. Этим же способом секретируется парааминогиппуровая кислота (PAH), используемая для измерения интенсивности почечного кровотока.
2. Мочевая кислота. Мочевая кислота, конечный продукт метаболизма пуринов, и реабсорбируется, и секретируется через анионные обменники. В типичном случае реабсорбция значительно превалирует над секрецией. В организме человека в проксимальных канальцах обычно реабсорбируется до 90% отфильтрованной мочевой кислоты. Однако ее секреция тоже имеет место, особенно ближе к концу проксимального канальца. В конечном счете около 10% мочевой кислоты выводится из организма.
Усиление реабсорбции мочевой кислоты усиливает и реабсорбцию Na+ и воды в проксимальных канальцах. Дефицит поваренной соли в организме приводит к стимуляции реабсорбции как натрия, так и мочевой кислоты в проксимальных канальцах и повышает концентрацию мочевой кислоты в плазме (гиперурикемия).
P.S. Гиперурикемия и подагра:
- Причины. К гиперурикемии может привести повышенное образование мочевой кислоты, что бывает вызвано чрезмерно богатой пуринами диетой (пуринов много прежде всего в блюдах из ливера и внутренних органов), массовым некрозом или апоптозом клеток (например, при раковой терапии) и в крайне редких случаях метаболическими расстройствами (например, синдром Леша-Нихана), при которых мочевая кислота синтезируется в чрезмерных количествах. Наиболее же распространенной причиной гиперурикемии служит ухудшение выделения мочевой кислоты в почках.
Это происходит особенно тогда, когда в проксимальных канальцах увеличивается реабсорбция натрия. Например, при лечении гипертонии ингибирующими реабсорбцию Na+ в дистальных канальцах мочегонными средствами; потеря солей вызывает автоматическое компенсаторное увеличение реабсорбции натрия в проксимальных канальцах. Развитие гиперурикемии возникает как побочный эффект.
- Последствия. Мочевая кислота обладает невысокой растворимостью и при гиперурикемии (> 0,4 ммоль/л) может кристаллизоваться прежде всего в суставах. Кристаллы мочевой кислоты затем приводят к чрезвычайно болезненному воспалению, которое в конечном итоге может стать причиной разрушения суставов (подагра). Мочевая кислота может, кроме того, кристаллизоваться также в почках и моче.
3. Оксалат. Формиат и анион дикарбоновой кислоты оксалат секретируются анионными обменниками в проксимальных канальцах в обмен на Cl-. При этом более 20% оксалата выводится после попадания в фильтрат почечных клубочков. Оксалат, как и мочевая кислота, плохо растворим и иногда кристаллизуется в моче.
4. Цитрат. Сопряженный с Na+ переносчик цитрата способен к полной его реабсорбции. Однако активность переносчика имеет выраженную зависимость от рН, и выделение цитрата увеличивается при алкалозе. Так как цитрат образует с Са2+ хорошо растворимые комплексы, он препятствует кристаллизации солей Са2+ в моче. По всей видимости, ради этого организм готов «терпеть» некоторую потерю энергетически ценного цитрата при алкалозе.
5. Процессы транспорта органических оснований. Органические катионы (холин, ацетилхолин, адреналин, дофамин, гистамин, серотонин и т.д.) также могут реабсорбироваться и/или секретироваться через унипортеры и антипортеры. Как правило, их секреция начинает преобладать по направлению к концу проксимального канальца, в результате чего катионы довольно эффективно выводятся. В практическом смысле переносчики катионов особенно важны для выведения фармацевтических препаратов.
е) Процессы транспорта ксенобиотиков в проксимальных канальцах. Нефротоксины. Важной функцией почек является выведение фармацевтических, ядовитых и других чуждых для организма веществ (ксенобиотиков).
1. Процессы транспорта поддающихся биотрансформации ксенобиотиков. Некоторые чужеродные вещества могут быть, главным образом в печени, преобразованы путем биотрансформации, так что становятся доступными для транспортных механизмов почек. Помимо других возможных химических реакций, к ним могут быть присоединены глюкуронат, глутатион, сульфат или ацетат, в результате чего они становятся опознаваемыми для транспортеров органических кислот и способными их переносить.
В проксимальных канальцах имеют место многие различные процессы транспорта органических анионов и катионов, и их взаимодействие определяет секрецию или реабсорбцию чужеродных веществ. Нередко в этом задействованы Na+- и Н+-симпортеры, антипортеры или унипортеры. Участвующие в выведении ксенобиотиков транспортные процессы могут иметь очень низкую специфичность по отношению к субстрату, что позволяет транспортировать совершенно разные вещества. Некоторые ксенобиотики разлагаются почками.
2. Нефротоксины. Иногда попадающие в клетки проксимальных канальцев чужеродные вещества достигают чрезвычайно высоких внутриклеточных концентраций. Если это ядовитые вещества (например, циклоспорин, цисплотин, тяжелые металлы), то клетки проксимальных канальцев оказываются более подвержеными риску по сравнению с другими клетками организма.
ж) Резюме. Процессы транспорта в проксимальных канальцах. В проксимальных канальцах имеется огромная пропускная способность транспортных процессов, однако там не может устанавливаться высокий градиент концентраций веществ. Клеточная концентрация Na+ поддерживается на низком уровне при помощи Na+/K+-АТФазы в базолатеральной мембране. Основные транспортные процессы в проксимальных канальцах также включают:
• Na+/Н+-антипорт;
• Na+,3НСО-3-симнорт;
• сопряженный с Na+ симпорт глюкозы и галактозы, кислых аминокислот (глутамата, аспартата), нейтральных аминокислот (например, аланина, фенилаланина), пролина и таурина, органических кислот (например, лактата, некоторых ксенобиотиков), фосфата, сульфата;
• связанный с Н+ транспорт пептидов и некоторых ксенобиотиков;
• обмен клеток с окружающим пространством основными (аргинин, лизин, орнитин) и нейтральными аминокислотами, включая цистеин, а также органическими кислотами и основаниями (мочевой кислотой, оксалатом, некоторыми ксенобиотиками);
• транспорт через каналы и унипортеры (например, K+, фруктозы, ксенобиотиков).
Глюкозурия или аминоацидурия возникают в случае достижения насыщения процессов транспорта при превышении концентрации соответствующих веществ в плазме крови почечного порога (например, при диабетической глюкозурии) либо при ингибировании или расстройстве процессов переноса. Пептиды и белки могут быть расщеплены на люминальной мембране на поддающиеся реабсорбции аминокислоты или захвачены эндоцитозом и гидролизованы в лизосомах внутриклеточно.
Видео физиология фильтрации в почках и поддержки осмотического давления крови - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Транспортные процессы в петле Генле и концентрирование мочи - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 23.6.2025