

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Сетчатка (строение, прием сигнала и его обработка) - с точки зрения физиологии человека
Оглавление статьи:- Задняя стенка глаза (глазное дно)
- Компоненты и слои сетчатки
- Трансдукция сигнала в сетчатке
- Рецепторный потенциал сетчатки
- Рецептивные поля сетчатки
- Классы ганглиозных клеток сетчатки
- Резюме
- Список использованной литературы
а) Задняя стенка глаза (глазное дно). С помощью офтальмоскопа можно увидеть сетчатку и сосуды сетчатки в глазном дне.
1. Методы исследования глазного дна. Если животное смотрит из темноты на свет фар машины, то водитель видит «отблеск» глаз животного, потому что свет фар отражается задней стенкой глаза. На рис. 1А в упрощенном виде представлен ход лучей при офтальмоскопии в вертикальном изображении (прямая офтальмоскопия).
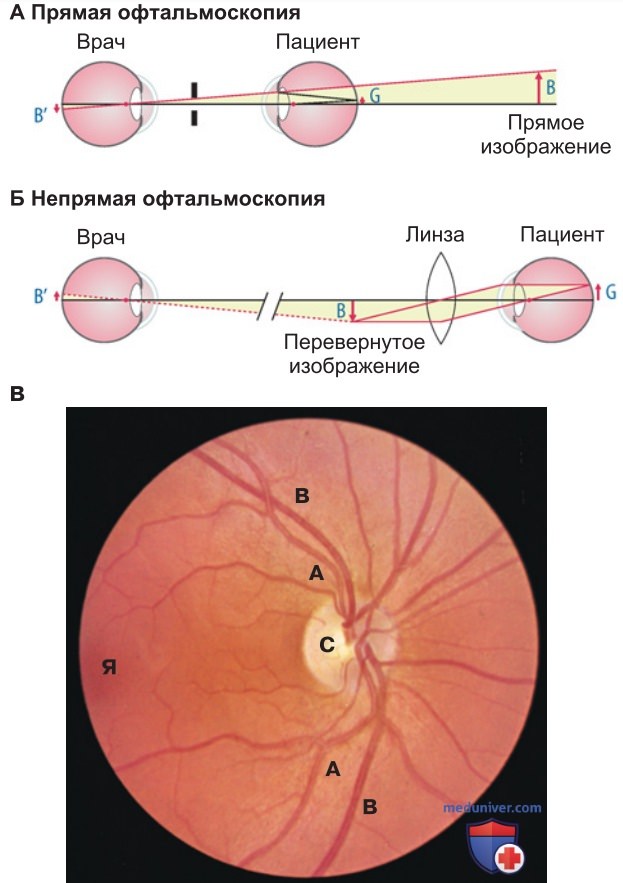
Исследователь непосредственно с помощью глазного зеркала создает дальнюю аккомодацию в глазу пациента и видит относительно небольшое четкое изображение участка глазного дна, увеличенного в 16 раз, в вертикальном изображении. При непрямой офтальмоскопии увеличительное стекло (+15 дптр) помещают перед глазом пациента; таким образом возникает увеличенное примерно в 4 раза и перевернутое изображение большей части глазного дна (рис. 1Б). На фотографии (рис. 1В) показано глазное дно с бледно-желтым соском зрительного нерва (ближе к носу), сосудами сетчатки и желтым пятном (более пигментированная зона) в свободной от сосудов области, в центре которой находится зона наиболее острого зрения — центральная ямка.
P.S. Клиническое значение исследования глазного дна. Исследование глазного дна важно не только для диагностики офтальмологических заболеваний (например, отслоения сетчатки, нарушения пигментного эпителия, опухолей сетчатки), но и для невролога (например, исследование застойного соска зрительного нерва при повышенном внутричерепном давлении) и терапевта. Поскольку центральная артерия сетчатки и ее основные ветви являются артериолами, то изменения в этом участке сосудистой системы могут быть обнаружены непосредственно при офтальмоскопии (важно, например, при сахарном диабете или гипертонических заболеваниях).
2. Кровоснабжение сетчатки. Ретинальные артерии, которые отходят от центральной артерии сетчатки и проходят в области соска зрительного нерва, снабжают внутренние две трети сетчатки (от ганглиозных клеток до внешнего плексиформного слоя). Внешняя треть (от пигментного эпителия и фоторецепторов до внешнего плексиформного слоя) обеспечивается диффузионным путем из венозного сплетения хориоидеи (сосудистой оболочки).
P.S. Нарушение функции сетчатки при нарушениях кровообращения. Различные области снабжения центральной артерии и хориоидеи обусловливают различные нарушения работы сетчатки при окклюзии центральных артерий или отслоении сетчатки. В обоих случаях в определенных пострадавших областях возникает острая слепота.
• При окклюзии центральных артерий из-за эмболии или тромба прекращается кровоснабжение внутренних клеточных слоев, и если в течение 1-2 ч не происходит реперфузия, например в результате тромболиза или мер по восстановлению кровоснабжения, эти слои необратимо дегенерируют и возникают дефекты поля зрения при сохранении интактного слоя фоторецепторов.
• При отслоении сетчатка отделяется от расположенного под ней слоя пигментного эпителия, тем самым нарушая кровоснабжение слоя рецепторов хориоидеи. Временной фактор здесь тоже важен, но терапевтическое окно больше, чем при окклюзии центральных артерий. Благодаря прикрепляемой снаружи пломбе в склере образуется углубление, и сетчатка вновь возвращается на место; искусственный рубец в большинстве случаев создается холодом для стабилизации соединения. Если эта конструкция выходит из строя в течение нескольких дней, то дегенерация направленного наружу от хориоидеи слоя рецепторов становится необратимой, а определенные части поля зрения остаются слепыми, хотя внутренние слои сетчатки продолжают снабжаться центральной артерией.
б) Компоненты и слои сетчатки. Сетчатка представляет собой многослойную сеть; она содержит два различных класса фоторецепторов, позволяющих видеть при свете солнца и луны.
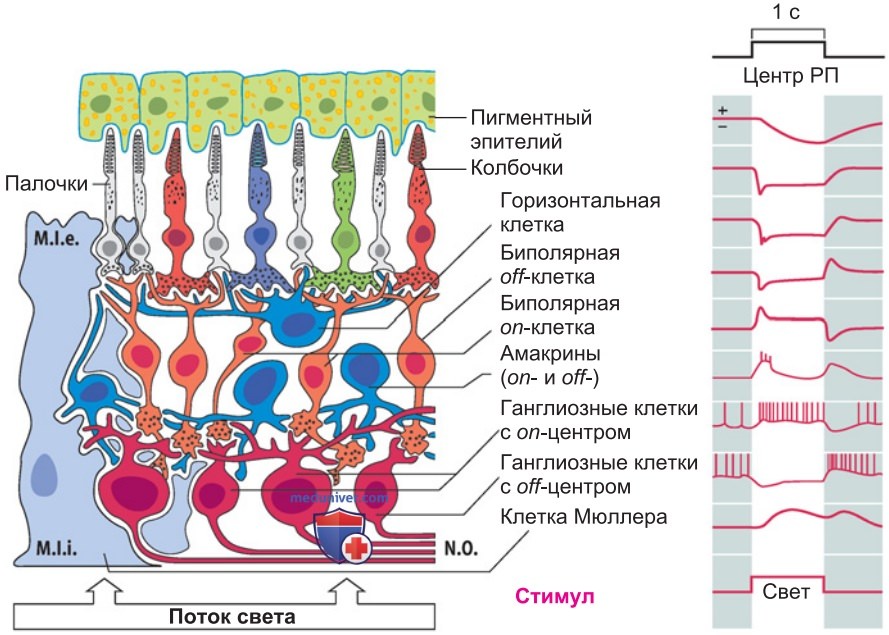
1. Строение сетчатки. В ходе эмбрионального развития сетчатка формируется из выпячивания среднего мозга; она тоже является частью мозга, поэтому неудивительно, что представлена сложной нейронной сетью, важнейшие компоненты которой схематично даны на рис. 2. Начиная с хориоидеи, если двигаться снаружи внутрь, можно увидеть пигментный эпителий и фоторецепторы (колбочки и палочки), горизонтальные клетки, биполярные клетки, амакриновые клетки и ганглиозные клетки. Аксоны ганглиозных клеток образуют зрительный нерв. Глиальные клетки сетчатки (клетки Мюллера) распространены в качестве опорных и транспортных клеток во всех слоях сетчатки, которая в среднем имеет толщину около 200 мкм. Свет, падающий через зрачок, попадает на внешнюю сторону сетчатки, где расположены фоторецепторы.
2. Палочки и колбочки. Адаптация к условиям освещения окружающей среды происходит с помощью двух типов рецепторов сетчатки с различными абсолютными порогами (теория двойственности):
- Палочки сетчатки обеспечивают зрение при звездном свете (скотопическое зрение). При этом можно видеть различия в яркости, но не различать цвета.
- Колбочки отвечают за зрение днем (фотопическое зрение). Эти рецепторы позволяют различать цвета и светотеневые контрасты предметов.
- Зрение в сумерках, в переходной фазе между скотопическим и фотопическим зрением, называется мезопическим зрением и сопровождается ограниченным восприятием цвета.
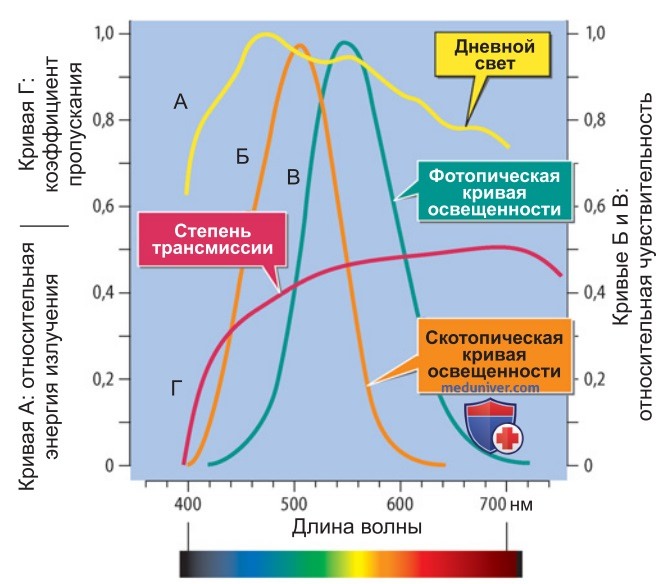
P.S. Спектральная чувствительность днем и ночью. Спектральная чувствительность человеческого глаза имеет максимум около 500 нм для скотопического зрения, а при фотопическом зрении — приблизительно 555 нм (рис. ниже). Процентное соотношение палочек и колбочек в сетчатке различных млекопитающих зависит, помимо всего прочего, от того, активны они преимущественно днем или ночью.
3. Число и распределение фоторецепторов. Рецепторный слой человеческого глаза включает около 120 млн палочек и 6 млн колбочек (рис. 2). Плотность рецепторов (число рецепторов на единицу поверхности) максимальна для колбочек в центре ямки, для палочек — в расположенной рядом парафовеальной области. В центральной ямке нет палочек, поэтому она специализируется на зрении при дневном свете. Колбочки ямки образуют регулярную мозаичную структуру. В центре ямки диаметр внешних частей колбочек составляет примерно 2 мкм, что соответствует углу зрения, равному примерно 0,4 угловых минут.
в) Трансдукция сигнала в сетчатке. Процесс зрительной трансдукции инициируется поглощением света молекулами зрительных пигментов.
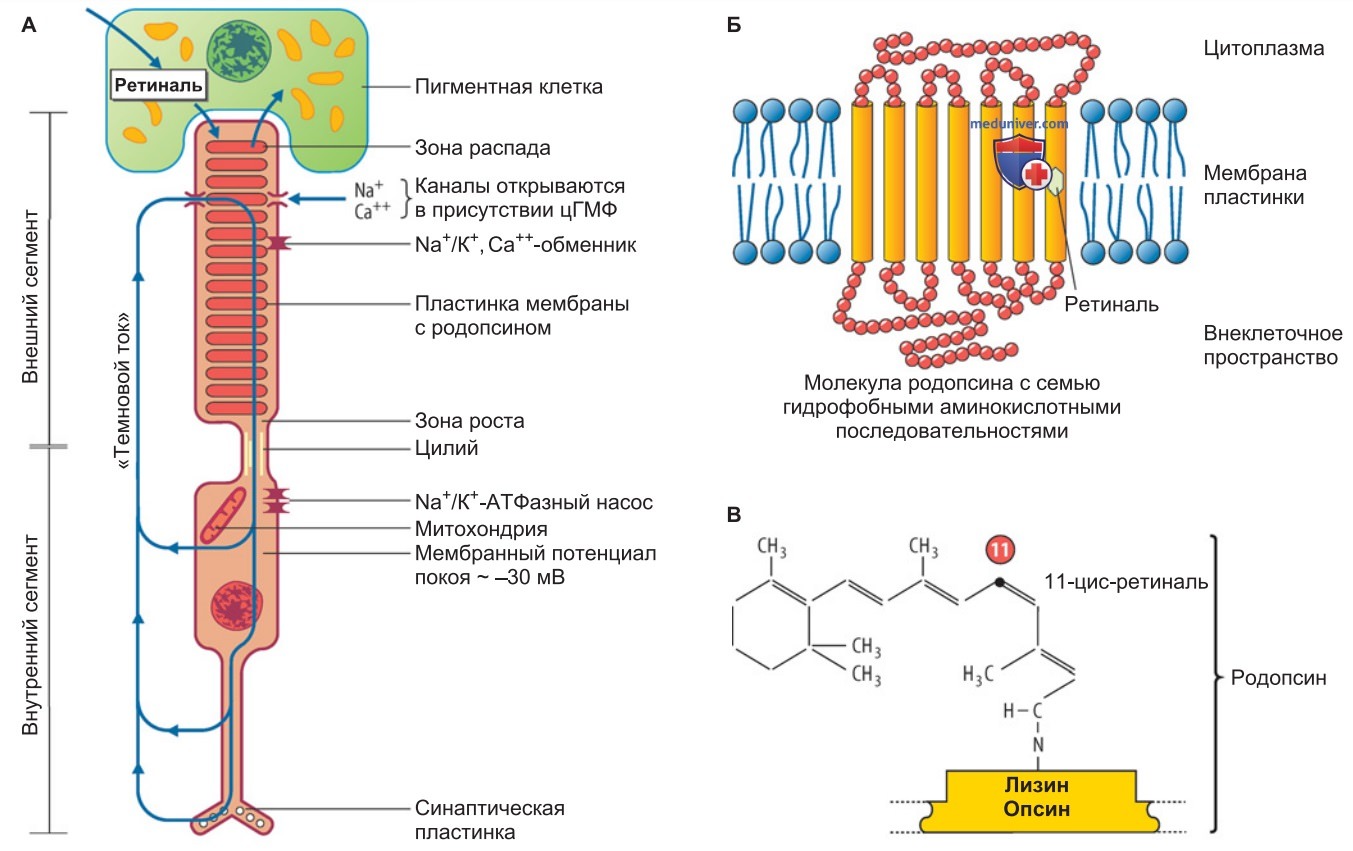
1. Зрительные пигменты. Внешний сегмент фоторецепторной клетки состоит примерно из 1000 мембранных дисков (палочки) или складок (колбочки) и связан тонким тяжом с остальной частью клеточного тела (рис. 3А). Молекулы зрительных пигментов регулярно расположены в липидном бислое клеточной мембраны внешних сегментов (рис. 3Б). Зрительный пигмент палочек называется родопсином («зрительный пурпур») и имеет красный цвет, потому что особенно хорошо поглощает зеленый и голубой цвета. Это можно определить, построив спектральную кривую поглощения. У родопсина два максимума поглощения: в видимой области спектра около 500 нм и в ультрафиолетовой области примерно 350 нм. Родопсин состоит из гликопротеина (опсина) и хромофорной группы, 11-цис-ретиналя (альдегида витамина А1).
Три типа колбочек имеют другие зрительные пигменты, в которых 11-цис-ретиналь конъюгирован с тремя различными гликопротеинами («йодопсины» или «опсины колбочек»), благодаря чему колбочки имеют максимумы поглощения в коротковолновой (420 нм), средневолновой (535 нм) и длинноволновой областях спектра (565 нм). Средневолновые и длинноволновые пигменты колбочек, как и палочки, имеют второй максимум поглощения в ультрафиолетовой области.
2. Распад зрительных пигментов после поглощения света. Процесс зрительной трансдукции начинается с поглощения фотона в п-электронной области сопряженных двойных связей ретиналя в молекуле зрительного пигмента (рис. 3В). Таким образом молекула переходит на более высокий энергетический уровень и начинает колебаться сильнее, что с вероятностью около 0,5-0,65 приводит к стереоизомеризации 11-цис-ретиналя в полный трансретиналь («квантовый выход»). Запускается сложный молекулярно-биологический каскад, который приводит к закрыванию натриевых каналов в мембране внешних сегментов рецепторов (рис. 4).
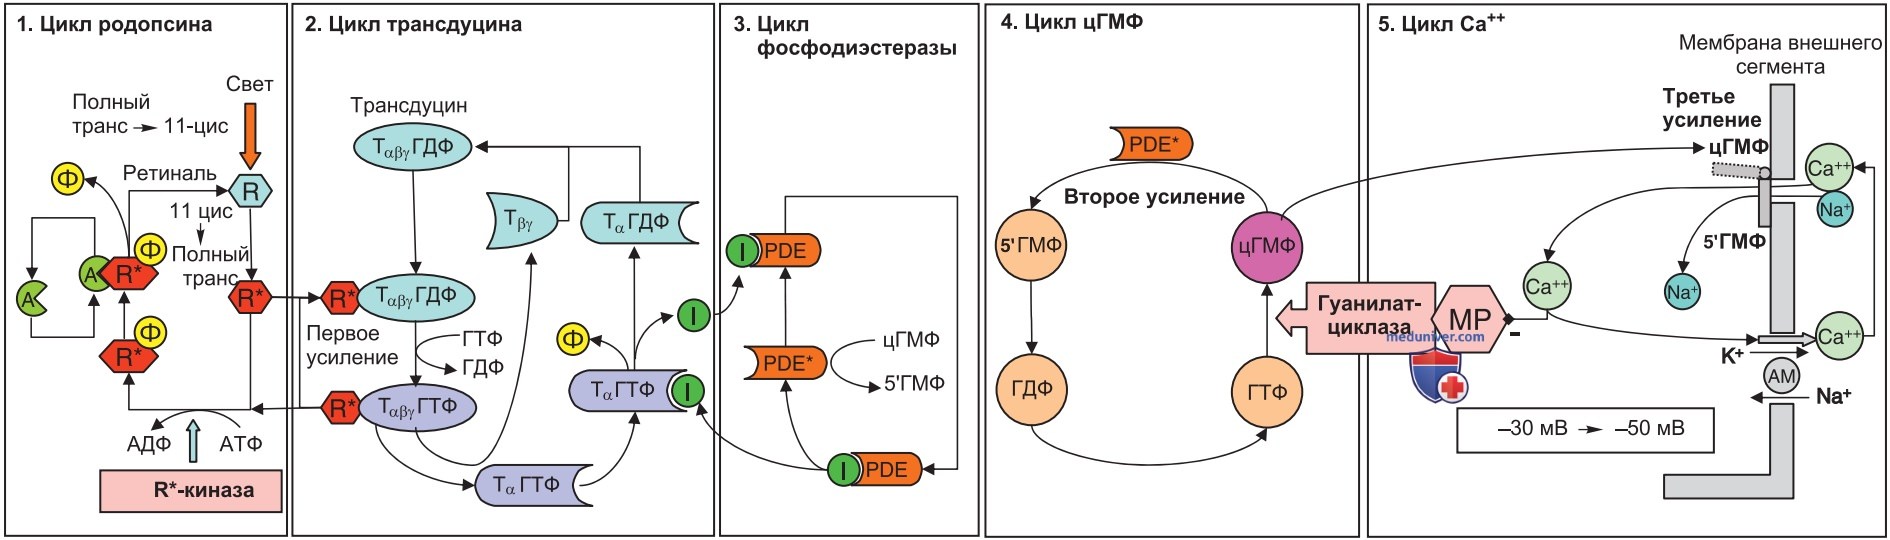
г) Рецепторный потенциал сетчатки. Световая реакция фоторецепторов позвоночных животных является гиперполяризующим рецепторным потенциалом.
1. Мембранный потенциал покоя и реакция на стимул. В темноте натриевая и кальциевая проводимости мембраны gNa и gCa весьма высоки (темновой ток; рис. 3А), и потенциал покоя мембраны фоторецепторов составляет всего -30 мВ. Темновой ток обеспечивается на 85% ионами натрия и на 15% ионами кальция. Поскольку освещение фоторецептора приводит к уменьшению gNa и gCa, а затемнение, напротив, приводит к их увеличению, то при освещении фоторецепторов происходит гиперполяризация мембранного потенциала, а при затемнении — его деполяризация (рис. 5А и Б). Этот тип реакции фоторецепторов отличается от обычного поведения рецепторов других сенсорных систем, которые деполяризируются при адекватной стимуляции.
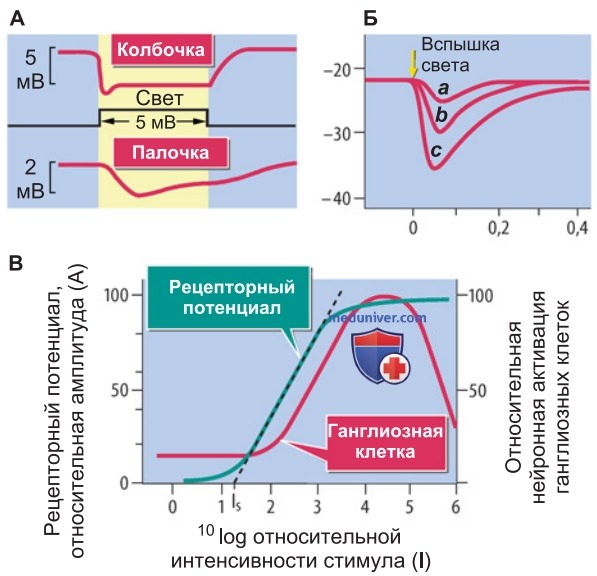
2. Влияние интенсивности стимула. Амплитуда фоторецепторного потенциала увеличивается с интенсивностью световых стимулов (рис. 5Б и В). Рецепторный потенциал палочек имеет более медленный временной ход, чем рецепторный потенциал колбочек (рис. 13А). Спектральная чувствительность рецепторных потенциалов колбочек и палочек трех различных типов приблизительно соответствует результатам микроспектрофотометрии.
P.S. Между интенсивностью стимула Is (количество фотонов, попадающих в единицу времени на единицу поверхности сетчатки) и амплитудой рецепторного потенциала A существует следующее соотношение (рис. 5Б и В):
А = aIs/(1 + kIs) [мВ]. (3)
Это гиперболическое уравнение Геринга при логарифмическом наложении яркости света Is дает на графике S-образную линию, которая может быть аппроксимирована с помощью логарифмической функции для среднего диапазона интенсивности (закон Вебера-Фехнера):
А = K* * log Is/I0[мВ], (4)
где I0 — интенсивность порогового стимула, зависящая от состояния адаптации. Постоянные a, k и K* в уравнениях (3) и (4) зависят от длины волн света в соответствии со спектральной чувствительностью рецепторов.
3. Медиатор. Медиатором фоторецепторов служит L-глутамат. В темноте, когда мембрана клеток деполяризована, медиатор непрерывно высвобождается в синапсах фоторецепторов; при освещении из-за гиперполяризации мембраны его выброс снижается.
д) Рецептивные поля сетчатки. Синаптическая конвергенция сигналов в сетчатке определяет протяженность и функцию рецептивных полей нейронов сетчатки.
1. Определение. Рецептивным полем (РП) зрительного нейрона называется та область зрительного поля или сетчатки, адекватная стимуляция которой приводит к изменению активности нейрона. В сетчатке РП обычно организованы концентрически: центр РП окружен кольцевой периферией РП (рис. 6). Пространственная протяженность РП увеличивается в пределах класса клеток в направлении от ямки к периферии сетчатки. РП является проявлением конвергенции и дивергенции сигналов нервных клеток ретинальной нейронной сети (рис. 2). В сетчатке различают «прямой» поток сигнала (фоторецепторы — биполярные клетки -ганглиозные клетки) и «латеральный» поток сигнала через интернейроны (горизонтальные и амакриновые клетки) к биполярным и ганглиозным клеткам.
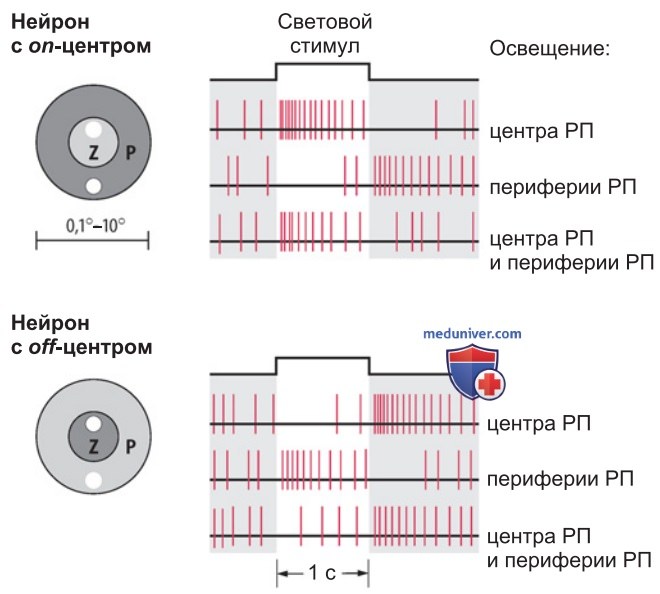
2. Биполярные клетки. Существует три типа биполярных клеток: on-, off-колбочковые, а также палочковые биполярные клетки.
- В случае on-колбочковых биполярных клеток при освещении колбочек в центре РП мембранный потенциал сдвигается в сторону деполяризации. Первичная гиперполяризация колбочек обращается вспять при прямой связи с on-клетками через тормозный синапс с метаботропными рецепторами глутамата. При освещении периферии РП происходит гиперполяризация on-биполярных клеток (в основе лежит латеральное торможение соседних фоторецепторов горизонтальными клетками, см. ниже).
- РП off-колбочковых биполярных клеток организованы функционально зеркально: при освещении центра РП происходит гиперполяризация (возбуждающий синапс с ионотропными рецепторами глутамата передает гиперполяризацию колбочек на биполярные клетки). Деполяризация при освещении периферии РП также основана на латеральном торможении через горизонтальные клетки.
- Палочковые биполярные клетки функционируют так же, как on-колбочковые биполярные клетки.
3. Горизонтальные клетки. Горизонтальные клетки передают сигналы между соседними фоторецепторами и определяют антагонистический ответ при раздражении периферии РП за счет латерального торможения. Горизонтальные клетки имеют обширные РП и гиперполяризуются при освещении фоторецепторов во всем РП. Тормозные синапсы вызывают деполяризацию во внутренних сегментах соседних фоторецепторов.
4. Амакриновые клетки. Амакрины, как и горизонтальные клетки, являются интернейронами (рис. 2). Особое значение имеют амакрины палочек (AII), которые при скотопическом зрении распространяют сигнал палочковых биполяров на on- и off-биполярные колбочки и дофаминергические амакрины, отвечающие за переключение зрения с колбочкового на палочковое (см. ниже).
5. Ганглиозные клетки. Как и в случае с биполярными клетками, среди ганглиозных клеток сетчатки выделяют клетки с on- и off-центром.
- Ганглиозные клетки с on-центром реагируют на освещение центра РП активацией, на затемнение — торможением. Их реакция на стимуляцию периферии РП зеркальна: торможение на свету и активация в темноте.
- Ганглиозные клетки с off-центром реагируют противоположным образом (торможение в ответ на освещение и возбуждение при затемнении центра РП; возбуждение при освещении и торможение при затемнении периферии).
При одновременном раздражении центра и периферии процессы возбуждения и торможения суммируются, причем реакция на раздражение центра немного преобладает над реакцией периферии (рис. 6).
е) Классы ганглиозных клеток сетчатки. Различные ганглиозные клетки сетчатки являются началом параллельных афферентных систем.
1. Морфологические классы клеток. Ганглиозные клетки сетчатки можно условно разделить на три морфологически и функционально разных класса:
- ганглиозные клетки с крупным клеточным телом, относительно широко разветвленным плотным дендритным полем и большим диаметром аксона (10%);
- ганглиозные клетки со средними по величине клеточными телами и аксонами и небольшими плотными дендритными полями (80%);
- гетерогенная клеточная группа (10%) с мелкими клеточными телами и аксонами, однако с крупными и слабо разветвленными дендритными полями. Различные клеточные группы образуют начало трех параллельных систем стриарного зрительного тракта, которые проецируют зрительную информацию непосредственно в клетки латерального коленчатого тела в таламусе:
- крупные ганглиозные клетки являются началом магноцеллюлярной (М) системы;
- средние по величине ганглиозные клетки образуют парвоцеллюлярную (P) систему;
- мелкоклеточная гетерогенная группа клеток включает начальные клетки кониоцеллюлярной (K) системы.
Гетерогенная группа мелких клеток является также гетерогенной по функции и проекциям и содержит клетки, которые проецируют в претектальную область (путь зрачкового рефлекса) и к верхнему двухолмию.
2. Функциональная специализация. М-, P- и К-системы принимают различное участие в зрительной функции. М-клетки имеют большие рецептивные поля и реагируют с высоким временным разрешением (фазически); они очень чувствительны к контрастам и не «различают» цвета. P-клетки имеют более мелкие рецептивные поля, реагируют с более высоким пространственным и низким временным разрешением (тонически); это цветоспецифичные (красный/зеленый) клетки, которые имеют более низкую чувствительность к контрастам. Начальные клетки К-системы приматов тоже чувствительны к цветам (к синему). Клетки пути зрачкового рефлекса, которые проецируют в претектальную область, характеризуются зависимой от освещения, неадаптивной активностью.
P.S. Параллельная обработка. Разделение нейронов на различные классы в пределах слоя ганглиозных клеток сетчатки показывает, что оптическое изображение, возбуждающее слой фоторецепторов, уже в сетчатке преобразуется в паттерн множественного возбуждения функционально различных типов ганглиозных клеток (принцип параллельной обработки сигнала в ЦНС).
ж) Резюме. Структура, прием сигнала и дальнейшая его обработка в сетчатке. С помощью офтальмоскопа мы можем наблюдать глазное дно и при этом оценить возможные патологические изменения сетчатки, соска зрительного нерва, кровеносных сосудов сетчатки и зрительного нерва.
Сетчатка возникает в развитии как часть мозга и представляет собой сложную нейронную сеть. Раздражение воспринимается двумя различными классами фоторецепторов, которые различаются своей чувствительностью к свету Колбочки требуют для своей активности дневной свет, палочки возбудимы даже в сумерках и темноте. Существует только один вид палочек и три класса колбочек с различными спектральными максимумами поглощения, вместе они обеспечивают цветное зрение. В центральной ямке (fovea), области наиболее острого зрения, есть только колбочки. Остальная сетчатка содержит колбочки и палочки. Восприятие стимула в колбочковых и палочковых фоторецепторах происходит посредством одинакового процесса фототрансдукции.
Поглощение света молекулами зрительного пигмента инициирует процесс зрительной трансдукции. Это приводит к стереоизомеризации зрительного пигмента 11-цис-ретиналя в транс-ретиналь. В результате происходит закрывание натриевых каналов в мембране рецепторов и, следовательно, развивается гиперполяризующий рецепторный потенциал, в результате чего снижается выброс глутамата в синапсах фоторецепторов.
Биполярные и ганглиозные клетки следуют за фоторецепторами в вертикальном пути передачи сигнала, горизонтальные и амакриновые клетки — в горизонтальном. Обработка сигнала в этой сети приводит через механизмы конвергенции возбуждения и латерального торможения к формированию антагонистически организованных рецептивных полей нейронов сетчатки с возбуждающим центром и тормозной периферией. Различают on-нейроны, которые активируются при освещении центра, и off-нейроны, которые реагируют возбуждением на затемнение центра.
Обработанные в ретинальной сети сигналы конвергируют в ганглиозных клетках сетчатки, которые подразделяются на морфологически и функционально разные классы и являются отправной точкой массивной параллельной обработки различных аспектов в афферентном зрительном пути.
Крупные ганглиозные клетки (магноцеллюлярная система) с большими дендритными полями и крупными рецептивными полями реагируют фазически, чувствительны к контрастам и не «различают» цвета. Мелкие ганглиозные клетки (парвоцеллюлярная система) с мелкими дендритными и рецептивными полями реагируют тонически, с высоким пространственным разрешением, чувствительны к цвету (красному/зеленому), однако нечувствительны к движениям. Третья, кониоцеллюлярная, система характеризуется мелкими клетками с крупными дендритными полями, их рецептивные поля также чувствительны к цвету (синему/желтому).
Видео гистология сетчатки, сосудистой оболочки глаза, склеры (препарат заднего отдела глаза)
- Вернуться в раздел "Физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 12.3.2025