

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Регулирование выделения воды и соли - с точки зрения физиологии человека
Оглавление статьи:- Установление величины осмоляльности и объема различных компартменов
- Объем экскреции
- Ренин-ангиотензиновая система
- Резюме
- Список использованной литературы
а) Установление величины осмоляльности и объема различных компартменов. Выпитая сверх необходимого количества жидкость стимулирует выделение мочи; в основе первого этапа регуляторной цепи, обеспечивающей это, лежит количественная оценка объема и осмоляльности жидкости.
1. Нарушение равновесия между объемом и осмоляльностью различных компартментов. Находясь в хорошей компании, человек может пить «в три горла», вследствие чего потребляет больше жидкости, чем это в самом деле необходимо для выравнивания объема внутренней среды организма.
Большинство выпитых напитков не являются изоосмолярными, поэтому тело должно измерить разницу в осмоляльности и принять соответствующие контрмеры. В то же время изменение объема компартментов может происходить и не в связи со смещением значения осмоляльности.
Достаточно вспомнить об обычных больничных инфузиях соли, распространяемой по венам по всему организму. Таким образом, организм сталкивается с двумя основными задачами:
- определение осмоляльности;
- обнаружение изменений в объеме компартментов.
2. Определение осмоляльности. Незначительные изменения в осмоляльности регистрируются нейронами в гипоталамусе, в циркумвентрикулярных (околожелудочковых) органах третьего желудочка мозга (в первую очередь в сосудистом органе (organum vasculosum) терминальной пластинки (lamina terminalis)).
Вода имеет свободный доступ ко всем заполняемым жидкостью компартментам, и ее приток ведет к опуханию клеток. Набухание этих нейронов позволяет определить распределение осмоляльности в организме.
P.S. Чувствительные к осмосу нейроны имеют инактивирующиеся при их расширении катионные каналы. Если при увеличении внеклеточной осмоляльности эти нейроны сжимаются, вероятность открывания катионных каналов увеличивается, что приводит к деполяризации, возбуждению и передаче через синапс сигнала секретирующим АДГ нейронам.
Этот процесс путем открывания специфических натриевых каналов ведет к увеличению концентрации внеклеточного натрия. В то же время пептид окситоцин способствует натрийурезу в почках, воздействуя на окситоцинэргические нейроны, распределенные в нейрогипофизе.
3. Антидиуретический гормон. В находящихся в тесной связи с чувствительными к осмосу нейронами супраоптическом и паравентрикулярном ядрах (nuclei supraopticus, paraventricularis) секретируется АДГ (рис. 1). Эти клетки и сами чувствительны к осмосу.
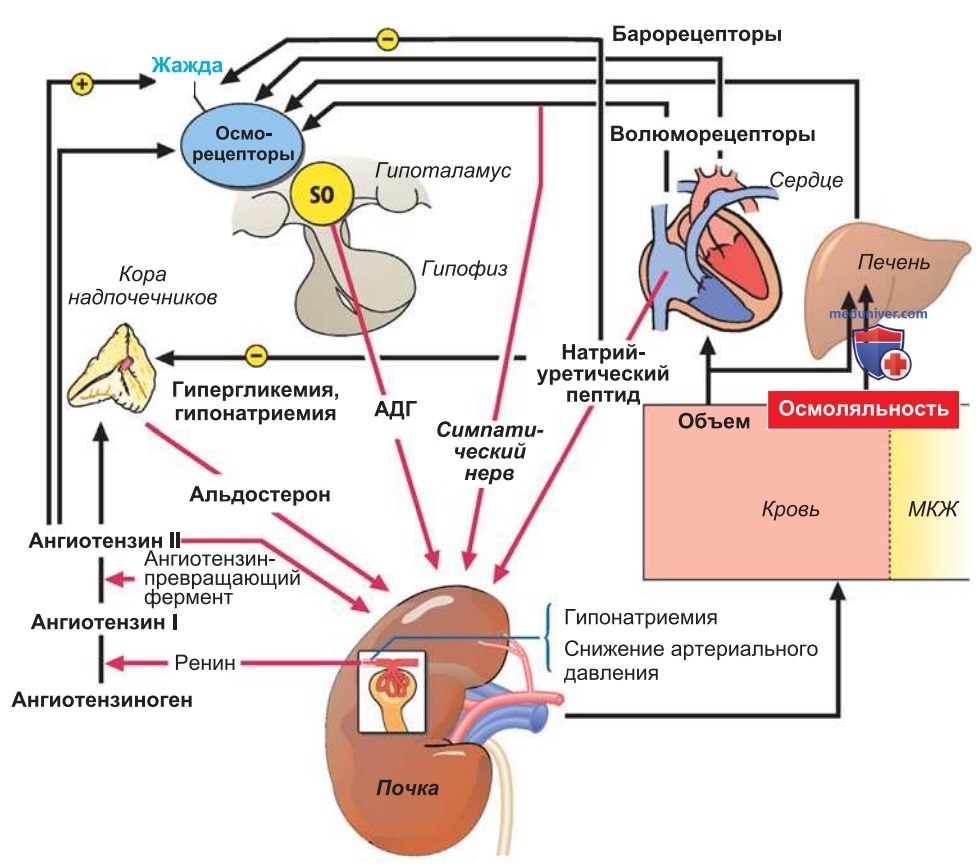
При повышении осмоляльности высвобождение АДГ увеличивается. Его выброс осуществляется путем экзоцитоза запасающих гранул в задней доле гипофиза. Уже небольшой подъем осмоляльности (около 1%) приводит к значительному повышению уровня АДГ в плазме, схема регуляции этого процесса имеет зависимость от уровня эстрогена и потому подвержена изменениям у женщин в зависимости от фазы менструального цикла.
4. Измерение объема компартментов. Уловить изменения в объеме компартментов для организма непросто из-за распределения этих изменений по частям тела. Информация об изменениях в конечном счете собирается и предоставляется нервной системе рецепторами растяжения. Для поддержания объемного гомеостаза измеряется степень деформации определенных регионов — мест впадения вен в правое и левое предсердия, а также клеток печени.
Именно эти места были выбраны в процессе эволюции не случайно, так как давление в центральных венах сопряжено с объемом межклеточного пространства; печень же хорошо подходит для измерения осмоляльности и объема крови, поступающей в нее из воротной вены и полой вены.
5. Рефлекс Гауэра-Генри. Результатом растяжения рецепторов объема является ограничение экзоцитоза АДГ и ингибирование активности симпатической нервной системы в почках. Рецепторы растяжения, расположенные в месте перехода полой вены (v. cava) в правое предсердие, обладают особенно сильным влиянием на выброс АДГ.
Уменьшенное высвобождение АДГ, вызываемое передачей сигнала от афферентных ветвей блуждающего нерва (n. vagus) о расширении предсердия, в литературе принято называть рефлексом Гауэра-Генри. Наглядной демонстрацией работы рефлекса могут служить раздражающие позывы к мочеиспусканию во время купания: кровь под действием повышенного давления окружающей среды снаружи выталкивается из вен в нижней части тела в пути венозного оттока.
Увеличивающееся набухание вышеупомянутых рецепторов растяжения снижает уровень АДГ и ингибирует активность нервов в почках, что приводит к повышенному мочеиспусканию.
6. Регулирование объема при помощи рецепторов давления. Регулирование объема происходит также через рецепторы, расположенные в крупных артериях и желудочках. Появление потенциала действия в рецепторах натяжения в желудочках и крупных артериях (рецепторах давления в каротидном синусе и дуге аорты) вызывает изменение уровня высвобождения АДГ и активности нервов в почках.
Давление в левом предсердии и артериях, входящих в указанную систему, высокое, и только значительные изменения объема жидкости в организме, какие могут быть, в частности, в случае кровопотери, способны на него повлиять. Поэтому рецепторы давления в артериях и рецепторы растяжения в левом желудочке играют главную роль в формировании шоковых состояний.
В этих условиях уровень АДГ повышается достаточно для того, чтобы проявилась другая выполняемая этим пептидным гормоном функция, а именно стимулирование вазоконстрикции. Отсюда происходит английское название АДГ — вазопрессин или arginine-vasopressin (AVP). АДГ вызывает вазоконстрикцию, связываясь с V1-рецепторами в клетках гладкой мускулатуры сосудов.
б) Объем экскреции. Последним этапом в цепи, регулирующей выделение воды и солей, является ответная реакция почек и нижней части кишечника; схема регуляции включает в себя работу симпатической нервной системы, а также АДГ.
1. АДГ. Регуляция выделения воды через почки опосредована в основном АДГ.
В ходе своей работы почки способны по мере необходимости менять осмоляльность мочи в пределах от 50 до 1400 мосмоль на 1 кг Н2О, а количество выделяемой мочи за сутки от менее половины литра до 20 л. Падение осмоляльности ниже критического предела между 280 и 290 мосмоль/л вызывает быстрый выброс АДГ. Период полураспада циркулирующих в кровотоке молекул АДГ составляет 15-20 мин.
Таким образом, проходит примерно один час, прежде чем выпитая в чрезмерных количествах жидкость вызывает позывы к мочеиспусканию. Алкоголь, кроме того, ингибирует высвобождение АДГ, в результате чего из организма выводится больше воды, чем следует. Головная боль наутро после употребления алкоголя связана именно с этим ингибированием выброса АДГ алкоголем: повышение осмоляльности и наступающее вслед за этим вытягивание из клеток содержащейся в них жидкости приводит к их сморщиванию даже в мозге.
2. Симпатические нервы почек. Густая сеть симпатических нервных волокон окружает сосуды почек и почечные канальцы. Если организм находится в состоянии шока, активность нервов может возрастать до такой степени, что почечный кровоток на какое-то время доходит до полной остановки. Как правило, изменения объема жидкости влияют на динамику прохождения потенциала действия в почечных нервах, и это действует в первую очередь на выделение натрия и выброс ренина, хотя и в небольшой степени.
Вклад почечных нервов в поддержание баланса натрия невелик и не является строго обязательным, поскольку почки в лишенном иннервации состоянии (например, в первое время после трансплантации) также надежно справляются с этой задачей.
3. Выведение жидкости из организма с калом. Кишечник также способствует регуляции баланса жидкости. Многие протекающие в кишечнике процессы транспорта идентичны таковым процессам в почках. Из-за этого под влиянием альдостерона здесь также увеличивается удержание воды, особенно в толстом кишечнике.
Альдостерон, таким образом, может делать кал более твердым, а испражнения — более редкими (вызывать запор). Пациенты с запором должны пить много жидкости. Кроме того, регуляция насыщенности пота солями находится в зависимости от альдостерона.
в) Ренин-ангиотензиновая система. Ренин синтезируется прежде всего в почках, главными стимулами для его секреции служат недостаток соли, снижение перфузионного давления в почках и активация β1-адренергических рецепторов; натрийуретические пептиды важны при патофизиологических условиях.
1. Выброс ренина. Высвобождение ренина зависит от потребления соли и изменения объема жидкости (рис. 2). Обычные колебания в объеме жидкости и солевом балансе не сказываются заметным образом на артериальном давлении. Но если значение давления падает до определенного порога, то происходит резкое увеличение выброса ренина.
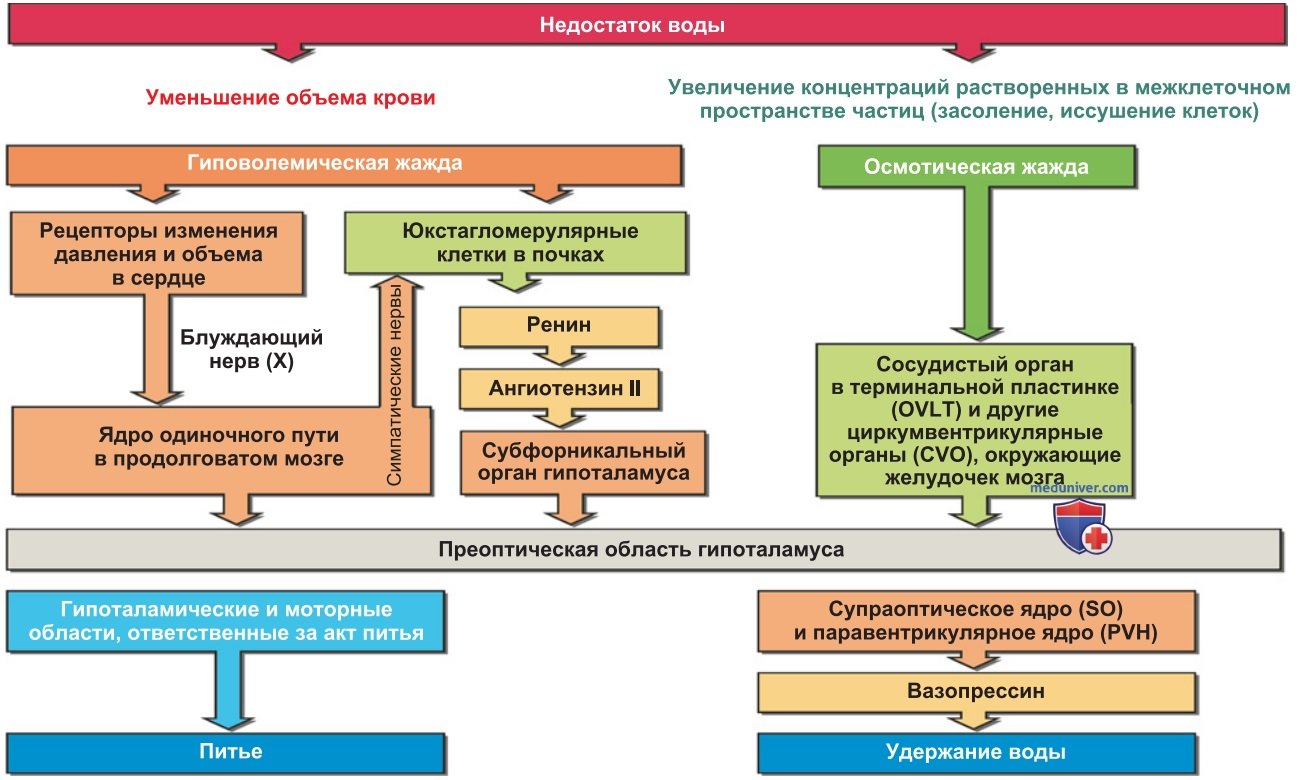
В обычных условиях ренин высвобождается в кровоток вследствие повышенной активности симпатической нервной системы (в чем участвуют β1-адренергические рецепторы). При уменьшении объема плазмы, например из-за жажды, рецепторы натяжения в крупных венах и предсердиях тормозятся, активность симпатических нервов увеличивается и ренин начинает секретироваться. Пониженное потребление соли также ведет к увеличению концентрации ренина в плазме. В этом, вероятно, играют роль несколько механизмов, таких как рецепция солей в растворе в macula densa.
2. Оказываемые ренин-ангиотензиновой системой эффекты. Ренин является фактором превращения ангиотензиногена в ангиотензин II. Через повышение обратного всасывания в канальцах ангиотензин II влияет на удержание натрия, кроме того при помощи ангиотензина II центральная нервная система создает ощущение жажды. В физиологическом растворе сохраняющаяся активность ангиотензина II поддерживается с помощью альдостерона.
Альдостерон является еще одним участником ренин-ангиотензинового каскада, так как его высвобождение из клубочковой зоны (zona glomerulosa) коры надпочечников находится под влиянием ангиотензина II (высвобождение альдостерона регулируют также внеклеточные концентрации натрия и калия и предсердный натрийуретический пептид; см. ниже). Альдостерон способствует обратному всасыванию Na+ в области дистальных извитых канальцев.
3. Натрийуретические пептиды. Гормоны синтезируются и в сердце. Предсердный (атриальный) натрийуретический пептид (atrial natriuretic peptide, ANP) секретируется в ответ на растяжение предсердия и, в соответствии с названием увеличивает выделение натрия. Существует два других натрийуретических пептида, которые первоначально были идентифицированы в головном мозге, это натрийуретический пептиды BNP (brain natriuretic peptide) и натрийуретический пептид С-типа (CNP).
В нормальных физиологических условиях ренин-ангиотензиновая система более важна, но в случае сердечной недостаточности эти гормоны приобретают большую значимость. Натрийуритические пептиды во многих отношениях выступают в качестве антагонистов ренин-ангиотензиновой системы. К их влияниям относятся ингибирование ощущения жажды, ускорение выведения натрия и (в очень высоких концентрациях) дилатация сосудов.
1. Равновесие объема и осмоляльности. Поддержание равновесия объема и осмоляльности обеспечивает сложная схема регуляции. Величина объема плазмы и ее осмоляльность постоянно отслеживаются:
• рецепторы растяжения в месте впадения полой вены в правое предсердие предоставляют информацию о степени наполненности сосудов,
• клетки печени принимают участие в измерении объема жидкости,
• осмолярность определяется в гипоталамусе.
2. Контроль выведения воды и солей. При отклонении величин объема и осмоляльности регуляция пищевого поведения и интенсивность выведения почками воды и солей соответствующим образом подстраиваются:
• выделение воды осуществляется под контролем АДГ,
• интенсивность выделения солей определена в первую очередь ренин-ангиотензиновой системой. Кроме того, определенное влияние на это оказывают симпатические почечные нервы и натрийуретические пептиды.
Видео физиология водно-солевого баланса - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Регулирование потребления воды и соли - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 1.7.2025