

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Приобретенный иммунитет - с точки зрения физиологии человека
Оглавление статьи:- Компоненты системы приобретенного иммунитета
- Т-лимфоциты
- Антитела
- В-лимфоциты
- Естественные киллеры
- Иммунологическая память
- Резюме
- Список использованной литературы
а) Компоненты системы приобретенного иммунитета. Специфическая иммунная система состоит в основном из Т- и В-лифоцитов, которые сначала должны быть активированы антигенами возбудителей болезни.
1. Основной принцип. Специфический иммуннитет распознает определенные структуры возбудителя заболевания (антигены), на которые может реагировать иммунная система. Эти структуры связываются на поверхности лимфоцитов рецепторами или секретируемыми антителами.
2. Происхождение лимфоцитов. Стволовые клетки костного мозга образуют эритроидные (дифференцируются в эритроциты), миелоидные (дифференцируются в макрофаги и гранулоциты) и лимфоидные (дифференцируются в лимфоциты) клетки-предшественники.
Лимфоидные клетки-предшественники дифференцируются далее в В-лимфоциты (созревание в костном мозге, bone marrow) и Т-лимфоциты (созревание в тимусе, или вилочковой железе).
б) Т-лимфоциты. CD4-T-лимфоциты могут стимулировать другие иммунокомпетентные клетки путем образования цитокинов; CD8-T-лимфоциты убивают собственные клетки организма, инфицированные возбудителем болезни.
1. Рецепторы Т-клеток. Все Т-клетки несут на своей поверхности Т-клеточные рецепторы. Рецептор Т-клеток состоит из одной α- и одной β-цепи, которые различаются от Т-клетки к Т-клетке (рис. 1). Цепи α и β образуют вариабельные части рецепторов Т-клеток и ассоциированы с γ-, δ-, ε- и ζ-цепями, одинаковыми для всех Т-клеток.
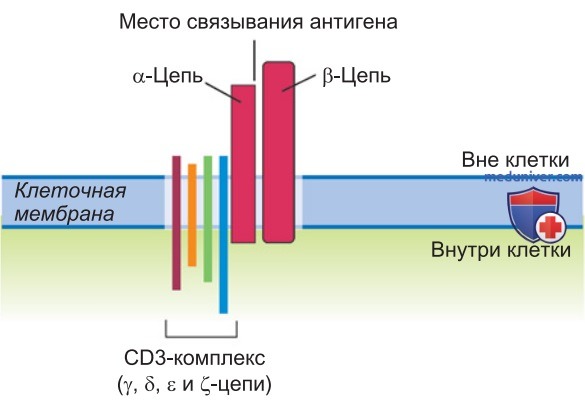
2. CD4 и CD8. Помимо Т-клеточных рецепторов Т-лимфоиты экспрессируют на своей поверхности рецепторы CD4 или CD8. В зависимости от того, какая из этих двух молекул экспрессируется, различают CD4+- и CD8+-Т-клетки. В связи с их функцией CD4+-клетки называют также вспомогательными Т-клетками (Т-хелперами), а CD8+-клетки — цитотоксическими Т-клетками (Т-киллерами).
Функция CD8+-Т-клеток в несколько упрощенном виде заключается в удалении инфицированных вирусом собственных клеток организма, тогда как CD4+-Т-клетки в инфицированных вирусом тканях, а также при бактериальных инфекциях продуцируют цитокины, активирующие другие иммунные клетки.
3. Активация. Т-клетки распознают чужеродные белки, которые называются антигенами. Белки не могут быть распознаны Т-клетками непосредственно: сначала они должны быть к этому «подготовлены», например макрофагами. Макрофаги захватывают и поглощают возбудителей болезней, например бактерии, переваривая их до коротких белковых фрагментов.
Последние уже в транспортных везикулах эндоплазматической сети связываются с молекулами главного комплекса гистосовместимости МНС (major histocompatibility complex). При встраивании комплекса из фрагмента антигена и молекулы МНС в клеточную мембрану на поверхности клетки появляется новая структура (рис. 2). Т-клетка при помощи своего рецептора распознает как антигенный белок, так и молекулу МНС, которая относится к организму хозяина, поэтому говорят о гипотезе измененного своего (altered self), служащего объектом распознавания.
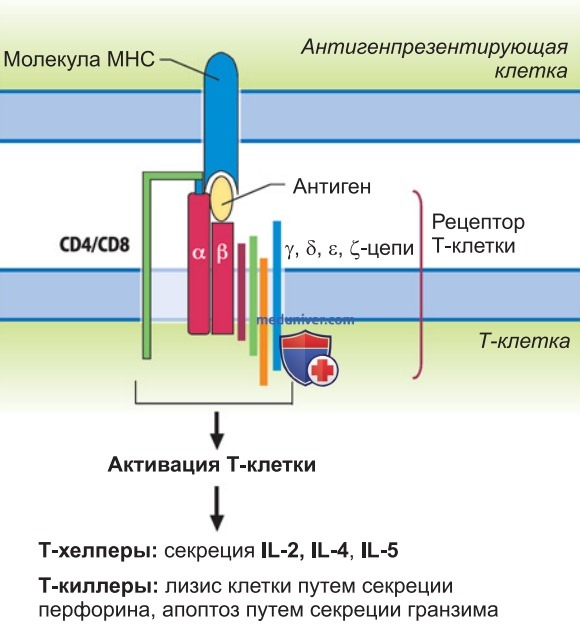
К тому же молекулы CD4 или CD8 взаимодействуют с МНС-комплексом, стимулируя связывание рецепторов Т-клеток с антигеном.
4. Система МНС. Молекулы МНС, у человека обозначаемые как HLA (human leukocyte antigen), подразделяются на два класса (МНС класса I и МНС класса II). CD8+-Т-клетки всегда распознают свой антиген в комплексе с молекулами МНС класса I, тогда как CD4+-Т-клеткам для распознавания антигена требуются молекулы МНС класса II (таким образом, клетки МНС класса II «ограничены»).
Молекулы МНС класса II экспрессируются только иммунокомпетентными клетками и презентируют фагоцитированные белки на поверхности лимфоцитов. Макрофаги и дендритные клетки могут посредством различных поверхностных рецепторов фагоцитировать патогены. Внутриклеточные фагосомы превращаются в лизосомы, а фагоцитированные белки деградируют при участии ферментов до пептидных фрагментов. Лизосомы затем сливаются с везикулами аппарата Гольджи, содержащими молекулы МНС класса II.
Часть пептидных фрагментов связываются с молекулами МНС класса II и, таким образом, вместе с молекулами МНС класса II презентируются на клеточной поверхности CD4+-Т-клетками.
5. Презентация антигена и стимуляция наивных Т-клеток. Для первичного ответа наивные Т-клетки сначала должны встретиться с антигеном. Для этого макрофаги связывают антигенные пептиды с молекулами МНС и презентируют их на своей поверхности (см. выше). Возникает связь между системами врожденного и приобретенного иммунитета (макрофагами и Т-клетками соответственно). Для каждого антигена имеется только один специфический рецептор Т-клеток.
Поскольку в окружающей нас среде содержатся миллиарды возможных патогенных антигенов, необходимо соответствующее число рецепторов Т-клеток. Многочисленные рецепторы Т-клеток различаются только α- и β-цепями — вариабельными компонентами Т-клеточных рецепторов. Вариабельные компоненты служат для связывания с антигеном, тогда как инвариабельные компоненты Т-клеточных рецепторов служат для дальнейшей передачи сигнала в Т-клетку.
Молекулярный механизм возникновения этого колоссального разнообразия Т-клеток объясняется соматической рекомбинацией генных сегментов (см. ниже). Активируется только та Т-клетка, рецептор которой подходит к антигену, презентированному в комплексе с молекулой МНС. Стимуляция Т-клеточного рецептора приводит к пролиферации Т-клеток (рис. 2).
6. Созревание Т-лимфоцитов. Предшественники Т-клеток не экспрессируют ни CD8, ни CD4 (CD8-/CD4--Т-клетки) и в таком виде мигрируют в субкапсулярную область тимуса. Там они начинают экспрессировать Т-клеточный рецептор путем перегруппировки генных сегментов (см. ниже). За счет этого возникает множество рецепторов Т-клеток, обладающих различной специфичностью.
Т-клетки, несущие теперь на поверхности комплекс CD3/Т-клеточный-рецептор, экспрессируют молекулы CD4 и CD8 (CD4+/CD8+) и мигрируют далее в кору тимуса. На двух последующих этапах отбора выявляется, подходят ли случайно возникшие рецепторы Т-клеток для связывания антигена. Тимоциты, которые надлежащим образом распознают чужеродные антигены, в итоге созревают и покидают железу, тогда как Т-клетки, распознающие собственные антигены, гибнут.
7. Т-хелперы. Центральную роль в дальнейшей регуляции иммунного ответа играют CD4+-Т-хел-перы, которые после стимуляции посредством Т-клеточного рецептора выделяют специфические цитокины: интерлейкины 2, 4, 5 и 6 (рис. 2). Интерлейкин 2 — это гормон роста Т-клеток, стимулирующий их пролиферацию. Он действует только на те Т-клетки, которые были предварительно стимулированы через свои рецепторы и связались с каким-либо антигеном.
Таким образом начинается стремительное размножение первично активированных Т-клеток. В случае если пролиферация фактически начинается с одной клетки, речь идет о клональной экспансии. Интерлейкин индуцирует пролиферацию как Т-хелперов, так и Т-киллеров, которые распознают соответствующий антиген.
8. Т-киллеры. Цитотоксические Т-клетки, или Т-киллеры, способны непосредственно разрушать клетки-мишени (рис. 2). Например, для разрушения клеток, инфицированных вирусом, Т-клетки используют в основном три белка: перфорин, гранзим и CD95-лиганды (CD95L). Перфорин имеет структуру и функции, сходные с комплексом С5b-9 системы комплемента (рис. ниже), и пермеабилизует мембрану клетки-мишени, вследствие чего та погибает. Каким образом сам лимфоцит защищен от такой судьбы, пока неясно.
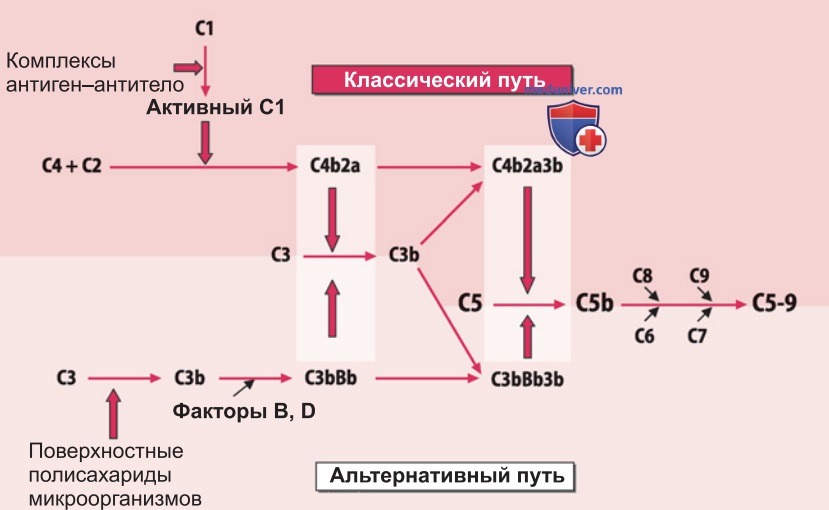
CD95L и гранзим индуцируют апоптоз в клетке-мишени. Чтобы не допустить гибели каждой клетки, встретившейся с Т-киллером, нападению подвергаются только те клетки, которые на своей поверхности несут антиген, распознаваемый Т-клеточным рецептором в комплексе с молекулами МНС. В то время как Т-хелперные клетки не имеют собственной эффекторной функции и оказывают на другие иммунные клетки только регуляторное воздействие, Т-киллеры активно элиминируют клетки-мишени, в особенности клетки, инфицированные вирусом.
в) Антитела. Антитела образуются активированными В-лимфоцитами. После связывания антител с патогеном последний может нейтрализоваться, подвергнуться эффективному фагоцитозу или разрушиться за счет активации системы комплемента.
1. Структура антител. Иммуноглобулины (Ig) подразделяют на пять классов: IgM, IgG, IgA, IgD и IgE. Все антитела имеют сходное строение (рис. 3). Они состоят из четырех белковых цепей, которые объединены друг с другом дисульфидными мостиками. Две из этих цепей имеют молекулярную массу около 50 кДа и называются тяжелыми цепями. Другие две цепи с молекулярной массой около 30 кДа называются легкими (рис. 3).
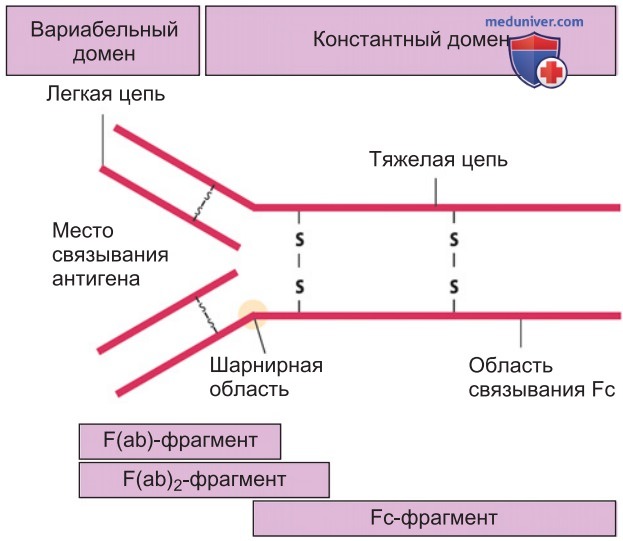
Все цепи, подобно Т-клеточным рецепторам, состоят из константных частей, которые у иммуноглобулинов одного класса (например, IgG) одинаковы, но различаются у разных классов антител. Таким образом, константная часть (особенно тяжелых цепей) определяет тип иммуноглобулина. Вторая часть каждой цепи, напротив, вариабельна и различается у антител даже одного класса.
Свойства антител. Антитела различных классов обладают различными свойствами.
- IgM секретируются зрелыми В-клетками, формируют пентамер (из пяти связанных субъединиц). Из-за своего размера IgM не могут проходить через плаценту и поэтому не обеспечивают защиту эмбриона. Эти важнейшие антитела первыми контактируют с патогеном (обеспечивают первичный иммунный ответ).
- IgG обнаруживаются в сыворотке. Это важнейшие антитела, участвующие во вторичном ответе, т. е. после стимуляции специфической иммунной защиты.
- IgA обнаруживаются на слизистых оболочках большинства (но не всех) людей и защищают слизистые оболочки от возбудителей болезней.
- IgE присутствуют в растворимой форме в крови. В связанном с клетками состоянии находятся на поверхности тучных клеток. Обусловливают аллергические реакции.
- IgD секретируются на поверхности зрелых В-клеток. Их функция еще полностью не выяснена.
2. Многообразие иммуноглобулинов. Как обеспечивается разнообразие образующихся иммуноглобулинов? Если бы для каждого иммуноглобулина существовал свой собственный ген, то наш геном должен был состоять только из генов, кодирующих многие миллиарды различных антител. Так как это невозможно, для создания многообразия иммуноглобулинов природа изобрела «модульную систему» (рис. 4).
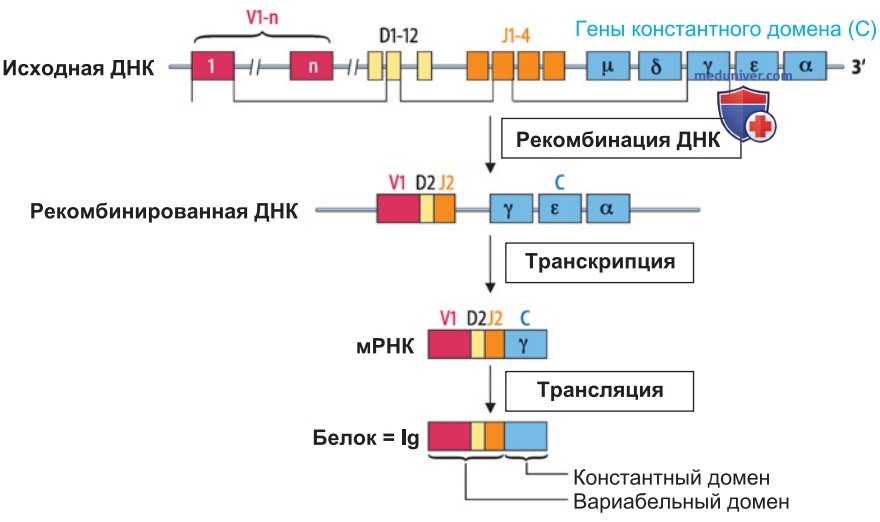
В геноме имеется ограниченное число (например, n = 1000) вариабельных (V) генов, двенадцать (D) diversity-минигенов, четыре (J) junction-сегмента и по одному гену для константного региона соответствующего типа антител: μ-ген для IgM, γ-ген для IgA, ε-ген для IgE и δ-ген для IgD.
В ходе созревания В-клеток на уровне ДНК происходит соматическая рекомбинация, т. е. перегруппировка. Так, вариабельный ген № V10 составляет вместе с diversity-геном № D4 и junction-геном № J2 единый вариабельный домен (или кодирующий его ген), тогда как другая В-клетка выбирает совершенно другую комбинацию. Благодаря комбинации относительно небольшого числа генов возникает огромное разнообразие вариабельных генов, которое дополнительно увеличивается за счет неточностей процессов разрыва/соединения и мутаций в вариабельных генах.
Новый ген V10D4J2 в конце концов соединяется с p-геном, и после транскрипции и трансляции образуется соответствующая молекула IgM.
3. Созревание иммуноглобулинов. В первые дни после заражения происходит образование и секреция молекул IgM т. е. иммуноглобулинов, которые присутствуют на поверхности покоящейся В-клетки. Однако молекулы IgM в растворе образуют пентамеры и поэтому из-за стерических препятствий не очень эффективно устраняют возбудителей болезней.
Поэтому через 4-8 дней В-клетка изменяет геном, а именно вырезает p-ген и объединяет вариабельную часть гена иммуноглобулина с γ-геном. В результате синтезируются молекулы IgG, которые имеют значительно более высокое сродство к соответствующему антигену, нежели молекулы ^М, и, следовательно, могут гораздо более эффективно бороться с патогенами. Поскольку произошла замена лишь μ-гена на γ-ген, вариабельный домен остается прежним и образующаяся молекула IgG способна распознавать тот же антиген, что и ранее синтезированная молекула IgM.
4. Способ действия антител. При связывании антител с поверхностью бактериальных клеток последние гораздо лучше распознаются и поглощаются фагоцитами. Этот процесс называют опсонизацией. Антитело присоединяется к бактерии антигенраспознающим участком молекулы, а своей константной частью, так называемой Fc-частью, связывается со специальными рецепторами на поверхности фагоцитов, так называемыми Fc-рецепторами.
В результате бактерия активно захватывается фагоцитом и может быть легко им поглощена. Бактерии, нагруженные антителами, вызывают активацию системы комплемента, что приводит к лизису бактериальной стенки (см. выше). Антитела могут нейтрализовать возбудителя заболевания или токсины, так что собственные клетки хозяина больше не инфицируются, а токсины не оказывают своего действия.
г) В-лимфоциты. В-лимфоциты распознают антигены, связанные с антителами на мембране. Связывание антигена стимулирует антигенспецифичные В-клетки к синтезу растворимых антител с идентичной антигенсвязыващей структурой.
1. Активация В-лимфоцитов. В-клетки стимулируются при связывании подходящих антигенов с антителами на их мембране и продуцируют соответствующие растворимые антитела. Последние действуют вне клеток и подавляют распространение патогена в организме. Это играет важную роль в иммунном ответе в случае как внеклеточных возбудителей (бактерий или паразитов), так и внутриклеточных (например, вирусов). Антитела могут мгновенно нейтрализовать патогенный организм и представляют собой важнейший компонент иммунологической памяти.
2. Созревание В-лимфоцитов. В-лимфоциты созревают в костном мозге. Сначала гены иммуноглобулина перегруппировываются и экспрессируются на поверхности В-клеток как IgM. Незрелая В-клетка взаимодействует с антигенами, которые встречаются в ее окружении. Если какая-либо В-клетка распознает собственный антиген организма в костном мозге, она погибает путем апоптоза. Так элиминируются В-клетки, действие которых направлено против собственных структур организма (аутореактивно). Если В-клетка не выбраковывается, то она мигрирует как зрелая В-клетка в лимфатические узлы или в селезенку.
3. Независимая от Т-клеток активация В-клеток и образование антител. Если какая-либо В-клетка свяжется своим В-клеточным рецептором с соответствующим антигеном, это повлечет за собой ее активацию и пролиферацию и, наконец, секрецию IgM-антител. Такая В-клетка будет секретировать IgM-антитела без участия Т-лимфоцитов.
4. Рецепторы В-клеток. На поверхности В-кле-ток находятся также рецепторы, аналогичные рецепторам Т-клеток, распознающим определенный антиген. У В-клеток это иммуноглобулины типа IgD или самого IgM, которые отличаются от секретируемых иммуноглобулинов только коротким трансмембранным и очень коротким внутриклеточным доменами (рис. 5). Такие поверхностные иммуноглобулины называют антигенными рецепторами В-клеток. В-клеточный рецептор имеет очень специфичный вариабельный домен, способный распознавать только один соответствующий антиген.
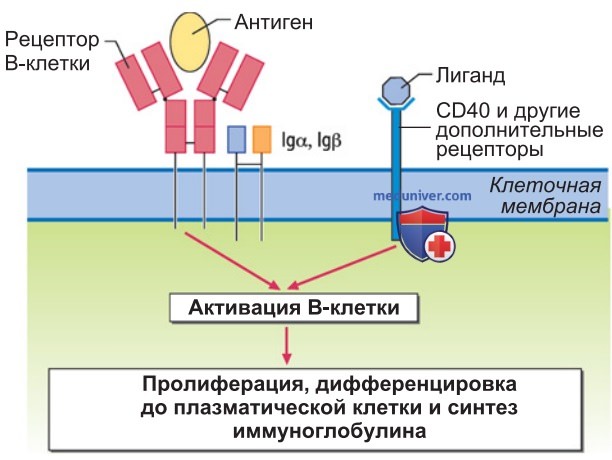
Антигены, распознаваемые В-клетками, — это не только короткие молекулы, представленные системой МНС, но и целые белки. При связывании антигена с В-клеточным рецептором (т. е. с поверхностным Ig с соответствующим вариабельным доменом) происходит активация последнего. Благодаря специфичности вариабельных доменов было установлено, что определенный антиген стимулирует только соответствующую В-клетку.
6. Зависимая от Т-клеток активация В-клеток. Если В-клетка связывает какой-либо антиген своим В-клеточным рецептором, то происходит интернализация комплекса антитело-антиген. В лизосомах антиген расщепляется на пептидные фрагменты (рис. 6). Эти фрагменты связываются с молекулами МНС класса II и презентируются на поверхности В-клетки. Теперь CD4+-Т-клетка, специфичная к этому антигену, может распознавать его в комплексе с молекулами МНС класса II и стимулировать В-клетку через рецепторы (CD40L—CD40), а также посредством цитокинов.
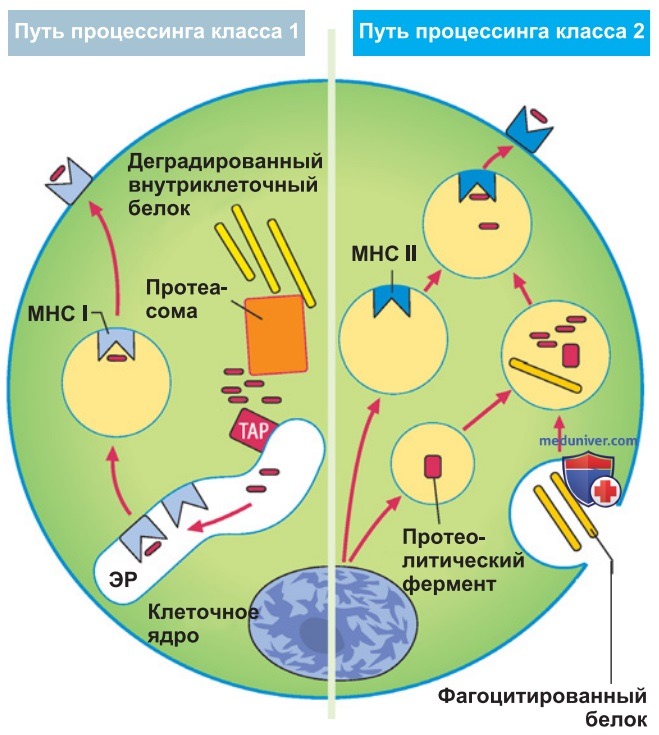
Поскольку Т-клетки, покинувшие тимус, могут распознавать только чужеродные антигены, то В-клетка за счет стимуляции Т-клеткой «знает», что распознанный и интерна-лизованный ей антиген был чужим для организма. В-клетка пролиферирует и секретирует IgM-и IgG-антитела.
7. Соматическая гипермутация. Часто сродство IgG (по сравнению с IgM) оказывается недостаточным для нейтрализации антигенов. В ходе дальнейшего процесса сродство антител к антигену может быть повышено (соматическая гипермутация). В зародышевых центрах (germinal centers) различная доля антител мутирует случайным образом. В результате многие В-клетки образуют антитела, больше не способные связывать антиген. Однако часть В-клеток образует антитела, которые связываются с ним лучше.
Такие В-клетки захватывают антиген гораздо быстрее (так как их рецептор имеет значительно большее сродство) и снова презентируют его CD4+-T-клеткам на МНС класса II. Таким образом, они опять стимулируются Т-клетками, тогда как В-клетки, не способные более связывать антигены из-за отсутствия стимуляции, умирают путем апоптоза.
8. Образование антител. После нескольких циклов гипермутаций образуется В-клетка, способная продуцировать высокоаффинные нейтрализующие IgG. В-клетки пролиферируют, и часть их дифференцируется в плазматические клетки. Последние мигрируют в костный мозг и выделяют антитела, которые могут нейтрализовать антигены во всем организме. Плазматические клетки образуют антитела с таким же вариабельным доменом, как у поверхностных иммуноглобулинов. Это является гарантией того, что возбудитель болезни или антиген будет распознан секретируемым антителом.
Таким образом, иммуноглобулины могут служить как поверхностными рецепторами, так и секретируемыми эффекторными молекулами.
д) Естественные киллеры. Естественные киллеры (NK-клетки) могут удалять из тела инфицированные или опухолевые клетки.
1. Уничтожение МНС-отрицательных клеток. Как упоминалось выше, цитотоксические Т-лимфоциты могут убивать клетки, инфицированные вирусом, только при презентировании вирусных антигенов в комплексе с молекулами МНС. Некоторые вирусы (например, цитомегаловирус) избегают атаки цитотоксичных Т-клеток за счет подавления экспрессии МНС в инфицированной клетке. Однако эти клетки могут быть распознаны и уничтожены естественными киллерами, которые не нуждаются в созревании (поэтому называются «натуральными» киллерами) и способны выполнять свою функцию с момента рождения.
P.S. Развитие иммунного ответа при папилломах:
- Первичное заражение. Эффективный иммунный ответ требует наличия функциональных иммунных клеток в месте инфекции. При первичном заражении часто проходят годы, прежде чем вирус встретит иммунные клетки. При заражении вирусом (например, папилломавирусом кожи, или HPV 12) он будет сначала воспроизводиться локально (с образованием папилломы). Пока вирус остается в коже, он не встретится с Т-лимфоцитом, так как в отличие от лимфатических узлов и селезенки в коже наивные Т-клетки отсутствуют и иммунный ответ на зараженные вирусом клетки развиваться не будет. Поэтому часто папиллома может годами развиваться беспрепятственно.
- Развитие иммунного ответа. Однако если при усиленном воспроизведении вируса или при механическом воздействии на кожу (например, когда по пальцу ползет улитка) происходит интенсивное распространение вируса, это приводит к заражению дендритных клеток кожи (клеток Лангерганса) и/или к попаданию вируса через лимфатические сосуды в лимфатические узлы. Там также происходит заражение макрофагов или дендритных клеток и презентация вирусных антигенов CD4+- и CD8+-T-клеткам. Аналогичный эффект достигается за счет активации дендритных клеток (например, через toll-подобный рецептор TLR 7 при использовании лечебных кремов на основе имиквимода).
Теперь, если среди многих наивных CD4+-T-клеток находится CD4+-лимфоцит, специфичный вирусу, он будет пролиферировать и продуцировать цитокины. Последние способствуют пролиферации CD8+-T-клеток, которые распознали свой антиген на эмигрировавших клетках Лангерганса. Кроме того, В-клетки, связывающие антиген на своей поверхности, стимулируются к фагоцитозу. Теперь вирусспецифичные В-лимфоциты также презентируют вирусные антигены на молекулы МНС класса II и далее стимулируются при участии CD4+-T-клеток к пролиферации и смене класса антител (см. выше). Дифференцировавшиеся В-клетки мигрируют в костный мозг и продуцируют там HPV-12-специфичные антитела.
Активированные Т-клетки мигрируют из лимфатических узлов и проникают в пораженный участок ткани. Там они обнаруживают инфицированные HPV-12 клетки и разрушают их (что приводит к исчезновению папилломы). В итоге благодаря вновь образованным антителам и увеличенному числу CD4+-T-клеток и CD8+-T-клеток человек приобретает иммунитет к папилломам вирусного происхождения.
2. Уничтожение клеток, нагруженных антителами. Связывание антител на поверхности клетки-мишени повышает способность NK-клеток лизировать ее. NK-клетки убивают клетки-мишени путем индукции апоптоза.
е) Иммунологическая память. Формирование иммунологической памяти предотвращает повторное заболевание при заражении организма тем же возбудителем.
1. Клетки памяти. Описанная выше активация Т- и В-клеток приводит к их массивной пролиферации, созреванию Т-хелперов и Т-киллеров и синтезу антител, которые элиминируют патоген чаще всего в течение нескольких дней. Как только возбудитель исчезает, клетки погибают путем апоптоза в отсутсвие стимулирующего антигена. Лишь незначительная часть клеток переживает этот процесс и переходит в покоящееся состояние, в котором может находиться годами. Эти клетки называют клетками памяти.
2. Иммунитет. Клетки памяти способны очень быстро реагировать на повторное заражение тем же патогеном, так как все процессы созревания уже завершены. В случае В-клеток уже произошли переход от синтеза IgM к синтезу IgG и соматическая гипермутация. Благодаря очень быстрой реакции клеток памяти на повторное столкновение с возбудителем инфекции или с антигеном, заболевание может быть предотвращено или, по крайней мере, значительно ослаблено.
3. Иммунизация. Описанные выше механизмы лежат в основе вакцинации, когда в организм вводят ослабленных или убитых возбудителей болезни или их токсины. При этом происходит активация В-клеток с индукцией нейтрализующих антител. Теперь в случае заражения организма соответствующим патогеном последний сразу же элиминируется антителами еще до появления симптомов. Этот вид прививок называют активной иммунизацией. Если в организм вводят только антитела или же смесь иммуноглобулинов, то такой прием называют пассивной иммунизацией.
Она проводится в случаях, когда заражение уже произошло или точно произойдет и прибегать к активной иммунизации уже поздно.
ж) Резюме. Специфическая иммунная система. Специфическая иммунная система состоит из Т-и В-лимфоцитов, а также из естественных киллеров (NK-клеток). Среди Т-клеток различают Т-хелперные и Т-киллерные клетки. Т-хелперы регулируют все другие клетки специфической иммунной системы посредством секреции цитокинов. Т-киллеры могут непосредственно убивать пораженные вирусом клетки.
В-лимфоциты после активации образуют антитела, которые направлены против бактерий, паразитов, а также вирусов.
Естественные киллеры убивают клетки независимо от молекул МНС класса I. Все клетки специфической иммунной системы активируются путем связывания антигенов со специфическими рецепторами (антигенными рецепторами). Т- и В-лимфоциты созревают соответственно в зобной железе, или тимусе, и костном мозге. При этом клетки, которые потенциально могут распознавать собственные клетки организма или антигены организма, элиминируются. Иммунная защита может быть поддержана активной или пассивной вакцинацией.
Видео физиология иммунитета
- Рекомендуем ознакомиться далее "Патофизиология иммунной системы - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 28.5.2025