

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Переработка информации от рецепторов в нейронной сети - с точки зрения физиологии человека
Оглавление статьи:- Периферические (первичные) и центральные (вторичные) рецептивные поля
- Сенсорные пути как нейронные сети
- Тормозные синапсы в нейронной сети
- Тормозящие рецептивные поля
- Мультимодальные области головного мозга
- Резюме
- Список использованной литературы
а) Периферические (первичные) и центральные (вторичные) рецептивные поля. Все рецепторы нервного волокна образуют свое первичное рецептивное поле; разветвление афферентных нервных волокон в ткани выражено по-разному, таким образом, они по-разному образуют крупные рецептивные поля.
1. Первичные рецептивные поля. Афферентные нервные волокна разветвляются в области иннервации (в области периферической нервной системы) в основном на несколько ветвей, которые оканчиваются на рецепторах; все рецепторы одного нервного волокна образуют первичное рецептивное поле.
Механорецептор в коже возбуждается прежде всего раздражителями, которые действуют непосредственно на него. Афферентное нервное волокно этого рецептора, однако, разветвляется на конце ветви. Ствол афферентного аксона в таких случаях может разветвляться в различных участках кожи (рис. 1).
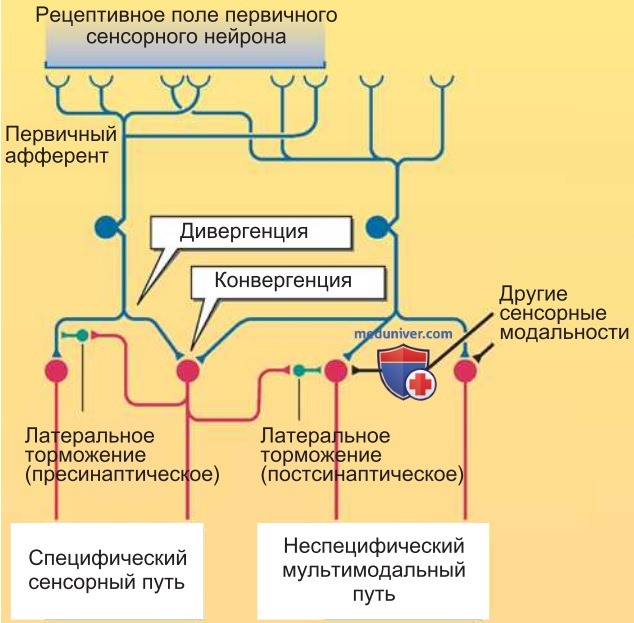
Если рецепторы афферентного аксона расположены близко друг к другу, то выявляется взаимозависимое рецептивное поле, если они располагаются далеко, то выявляется рецептивное поле, которое состоит из нескольких независимых чувствительных участков кожи. Чтобы отличать от рецептивных полей центральных нейронов, у первичных чувствительных нейронов рецептивные поля принято называть первичными рецептивными полями.
2. Вторичные рецептивные поля и функциональное приспособление. Количество ветвей первичных афферентных аксонов и их более или менее широкое распространение в иннервированной ткани определяют форму и величину периферических рецептивных полей.
В последующих нейронах в центральной нервной системе размер рецептивных полей определяется конвергенцией (соединением) различных афферентных нейронов. Многие первичные афферентные нервные волокна конвергируют по-разному и имеют синаптические контакты с отдельными центральными сенсорными нейронами.
Таким образом, рецептивные поля этих центральных нейронов (центральные рецептивные поля) могут быть больше, чем первичные поля афферентных нервных волокон (например, правый нейрон специфического сенсорного пути; рис. 1).
Величина периферических и центральных рецептивных полей согласована с их функцией. Маленькие поля обусловливают лучшую чувствительность. Рецептивные поля механорецепторов кожи, расположенных на кончиках пальцев, важнейшего осязательного органа, обычно меньше, чем поля механорецепторов, расположенных в коже под мышкой или даже на туловище.
В чувствительных нейронах высшего порядка это различие увеличивается: в соматосенсорном проекционном поле коры нейроны «подушечек пальцев» имеют намного меньшие по размеру рецептивные поля, чем нейроны «туловища». Сказанное относится и к сетчатке. Рецептивные поля ганглиозных клеток, которые связаны с рецепторами центральной ямки глаза, меньше, чем те, которые иннервируются рецепторами периферии сетчатки.
б) Сенсорные пути как нейронные сети. Пути органов чувств являются не просто пучками аксонов, которые проводят информацию линейно к центральным нейронам; проекционные нейроны этих путей связаны друг с другом синапсами, поэтому возникает структура, имеющая форму сети.
1. Общая структура сенсорных путей. Первичные афферентные нервные волокна оканчиваются во вторичных сенсорных нейронах после вхождения в спинной мозг или в ствол головного мозга (рис. 1 и 2). Их аксоны собираются в сенсорные пути, которые оканчиваются в ядрах высших областей. При формировании системы органов чувств несколько сенсорных центров последовательно включаются друг за другом.
Последним элементом почти у всех органов чувств являются нейроны в проекционном поле коры головного мозга. Во многих системах органов чувств им подчинены нейроны в таламическом проекционном ядре. В соматовисцеральной сенсорной системе им подчинена сенсорная основная область в спинном мозге или стволе головного мозга, на нейронах которого заканчиваются афферентные нервные волокна, идущие от периферии.
Таким образом, сенсорный путь состоит из цепочки центральных нейронов, которые возбуждаются импульсами определенных рецепторов и связаны между собой синапсами. Вся совокупность нейронов в пределах такого сенсорного пути и тормозные системы, связанные с ними, образуют вместе сенсорную систему.
2. Дивергенция и конвергенция сенсорных путей. На рис. 1 схематично представлены некоторые характерные черты сенсорной системы. Первичные афферентные нейроны обычно разветвляются на конечные ветви в органе, каждая из которых подходит к своему рецептору и, таким образом, создают первичное рецептивное поле.
Однако при разветвлении на проксимальных окончаниях они образуют синаптические контакты с различными вторичными нейронами. Такое разветвление называется дивергенцией. Между тем с каждым вторичным сенсорным нейроном образуют синаптические контакты несколько первичных афферентов. Это называется конвергенцией. В высших сенсорных центрах происходит такое же ветвление.
3. Избыточность сенсорных путей. Сенсорный путь, с одной стороны, можно понимать как цепочку включенных друг за другом нейронов (последовательно расположенных друг за другом). С другой стороны, информация органа чувств одновременно передается за счет конвергенции и дивергенции через многие параллельные каналы. Параллельная передача в нейронной сети приводит к избыточности.
Она, вероятно, служит важнейшим условием высокой «надежности в работе» сенсорных систем. Выпадение отдельных нейронов из-за болезни или старения касается функции сенсорных систем, только если повреждение затронуло большое количество нейронов.
в) Тормозные синапсы в нейронной сети. Сеть в сенсорных путях охватывает не только возбуждающие синаптические контакты; торможение так же важно для переработки информации, как и возбуждение.
Различные формы торможения встречаются в сенсорных системах закономерно. В следующем разделе описывается функция торможения для выделения информации. Однако оно служит и другим целям:
- Ограничение возбуждения в нейронной сети. Торможение требуется, чтобы препятствовать неконтролируемому распространению возбуждения по нейронной сети. Выключение одного из типов тормозящих синапсов стрихнином приводит к разрыву упорядоченного процесса передачи информации в ЦНС, в результате — к судорогам и смерти.
- Регуляция усиления. Часто высшие сенсорные нейроны отдают коллатеральные ветви, которые иннервируют вставочные нейроны, тормозящие нижележащие сенсорные нейроны этого же пути. Такое торможение по принципу обратной связи служит для получения усиления в данном сенсорном пути. Вероятно, этой цели служит и деполяризация первичных афферентов (ДПА) в соматосенсорной системе.
- Функциональная адаптация. Высшие мозговые центры могут влиять на передачу информации в системах органов чувств посредством нисходящих тормозных путей (нисходящее торможение). Эти тормозящие механизмы служат в том числе фильтрации сенсорной информации при фокусировке внимания.
Другой важной функцией нисходящего торможения является адаптация получения сенсорной информации к моторике, например в глазном яблоке приспособление процесса зрения к моторной активности глазных мышц приводит к фильтрации зрительных сигналов во время саккад.
- Образование контраста. Рецептивные поля центральных сенсорных нейронов являются зачастую комплексными, т. е. эти нейроны возбуждаются под действием одной группы рецепторов, в то время как другие рецепторы их тормозят.
P.S. Отравление стрихнином. Этот чрезвычайно ядовитый токсин применялся раньше в качестве крысиного яда. Иногда при этом происходило и отравление человека. Стрихнин — высокоаффинный лиганд глицинового рецептора, поэтому действует как конкурентный антагонист ингибиторного комплекса канал-рецептор.
Последствием выключения этих важнейших для моторной системы тормозных синапсов являются генерализованные судороги, которые могут быстро привести к смерти из-за прерывания координированного дыхания. Примечательно, что вызывать мышечные судороги могут и очень небольшие по силе зрительные, слуховые или тактильные стимулы, что демонстрирует экстремальную гипервозбудимость сенсорных каналов и рефлекторных путей в результате снятия торможения, опосредуемого глицином.
г) Тормозящие рецептивные поля. Возбуждающие рецептивные поля центральных нейронов часто окружены тормозящими рецептивными полями, которые служат усилению контраста.
1. Латеральное торможение. Многие нейроны в зрительной и соматосенсорной системах возбуждаются, например, центром рецептивного поля и, напротив, тормозятся большими или меньшими по размеру и более или менее упорядоченными окружающими клетками. Тормозящие рецептивные поля возникают потому, что первичные чувствительные нейроны связаны со вставочными нейронами, которые образуют тормозящие синапсы на лежащих рядом центральных сенсорных нейронах.
Поскольку торможение исходит от нейронов того же сенсорного пути, расположенных «в стороне», мы говорим о латеральном торможении.
2. Усиление контраста. Сложные рецептивные поля центральных сенсорных нейронов служат для того, чтобы выделить определенные черты сенсорной информации (выделение признаков). Важной функцией является усиление контраста. В конечном счете усиление контраста приводит, например, к тому, что глаза поставляют нам меньше информации об абсолютном уровне яркости, зато больше точных данных о различиях в уровнях яркости в изображении, т. е. о границах отдельных элементов изображения.
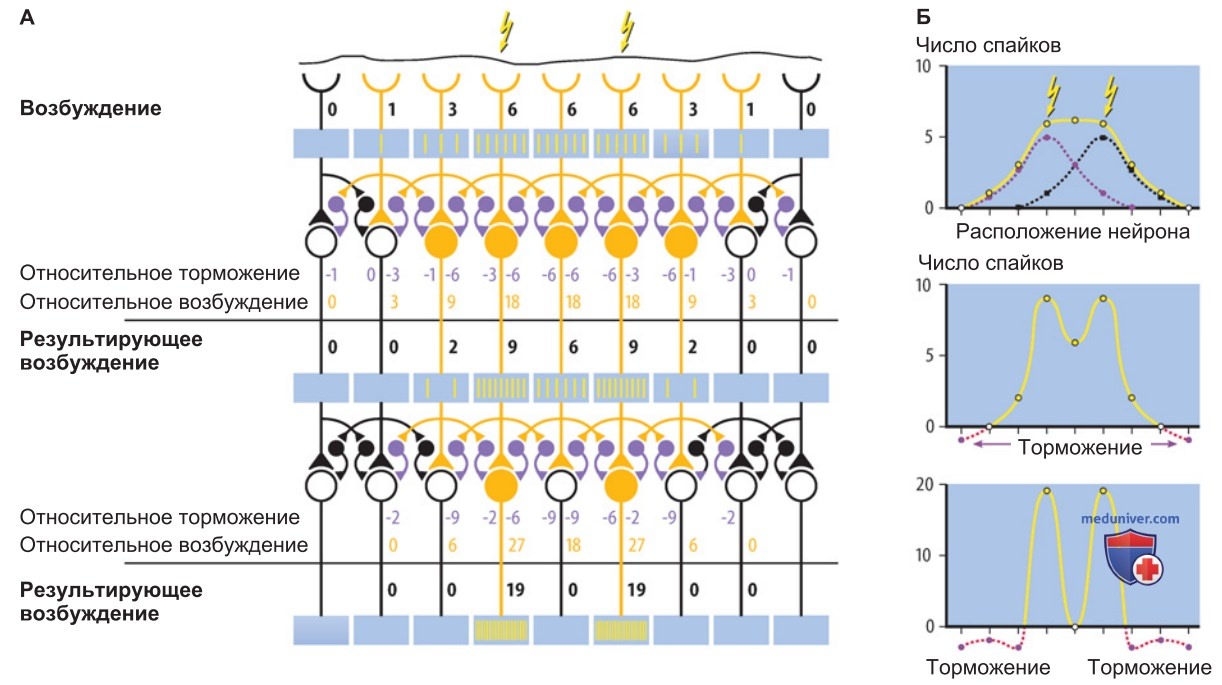
Контраст усиливается посредством латерального торможения. Далее описывается простая расчетная модель, которая должна объяснять эффективность латерального торможения при усилении контраста (рис. 2).
P.S. Назначение модели. Условно считаем, что на рецепторах этой системы очень близко друг к другу одновременно появляются два точечных раздражителя. Результирующее возбуждение рецепторов накладывается друг на друга, и оба раздражителя не могут восприниматься по отдельности. С помощью параметров латерального возбуждения, допущенных в модели, можно достичь полного разделения обоих раздражителей, которые действуют одновременно, с помощью двух этапов синаптической передачи.
P.S. Описание модели. Чтобы стимулировать латеральное торможение, афференты (рис. 2) подключаются таким образом, что каждый из них возбуждает через коллатеральные ветви аксонов вставочные нейроны (черные или синие клеточные тела на рисунке), которые тормозят соседние вторичные сенсорные нейроны (белые или желтые клеточные тела на рисунке). Степень торможения, естественно, зависит от силы возбуждения вставочных нейронов, а степень возбуждения вставочных нейронов зависит от тех или иных первичных афферентов.
В модели предполагается, что при каждой синаптической передаче между первичными афферентами и их вторичными нейронами осуществляется синаптическое усиление с коэффициентом 3, торможение через вставочные нейроны (возбуждающий или тормозящий синапсы, расположенные последовательно) должно иметь общее синаптическое усиление с коэффициентом 1. Тормозные постсинаптические потенциалы (ТПСП) вычитаются из возбуждающих постсинаптических потенциалов (ВПСП). На следующем этапе синаптической передачи этот процесс повторяется с теми же коэффициентами передачи.
На рис. 2 в виде численных значений представлены полученные в модели серии возбуждения и торможения, которые в зависимости от полученного возбуждения можно интерпретировать, например, как число потенциалов действия. В синей рамке показаны соответствующие исходящие импульсы отдельных аксонов. Изменения, которые возникают в этой матрице от этапа к этапу, можно легко вычислить на основе изложенных предположений.
3. Функции выделения признаков в нейронной сети. Представленное здесь усиление контраста не единственный способ выделения информации в высших сенсорных нейронах. В проекционных и ассоциативных областях коры из сенсорного возбуждения отдельные нейроны выделяют, как правило, более сложную информацию. Так, в соматосенсорной системе есть нейроны, которые кодируют скорость и направление раздражителя, движущегося по коже.
В зрительной коре находятся простые и сложные клетки, которые отображают определенные геометрические и двигательные параметры зрительных раздражителей.
Подробная организация тех или иных сенсорных проекционных областей коры головного мозга освещается в отдельных статьях на сайте, посвященных соответствующим системам органов чувств - просим Вас пользоваться формой поиска по сайту выше. В целом считается, что наши центральные сенсорные системы, прежде всего кортикальные, проводят анализ поступающей информации и производят выделение или абстрагирование сенсорной информации для сознательного процесса восприятия.
д) Мультимодальные области головного мозга. Все системы органов чувств тоже имеют связь с «неспецифическими» мультимодальными системами, которые обеспечивают в том числе контроль внимания.
Неспецифические нейронные группы с сенсорным входом обычно получают информацию от многих систем органов чувств, т. е. они мультимодальны. Важная неспецифическая система охватывает область ретикулярных ядер в стволе головного мозга и таламус.
Вероятно, специфические (унимодальные) сенсорные пути передают точную информацию посредством стимулов от рецепторов (они сообщают, что происходит), в то время как неспецифические, мультимодальные, отвечают за сенсорную интеграцию и за изменение поведения, которое требуют эти раздражители (они сообщают, как важно то, что происходит). Часто такое приспособление заключается в активизации и изменении направленности внимания. По всей видимости, это важная функция восходящей активирующей ретикулярной системы (ВАРС).
1. Нейронная сеть. В центральной нервной системе компоненты систем органов чувств представлены цепочками конвергентно и дивергентно связанных нейронов, расположенных последовательно; они организованы в виде нейронной сети. Цепочки принимают информацию первичных афферентных волокон, идущих от рецепторов, которые далее переключаются на вторичные, третичные и т. д. нейроны. Последним пунктом часто является кора головного мозга. На основе этих включений возникают первичные и вторичные рецептивные поля:
• Афферентные нервные волокна разветвляются в области иннервации на несколько коллате-рально расположенных ветвей, которые оканчиваются на рецепторах; все рецепторы нервного волокна образуют свое первичное рецептивное поле.
• Рецептивные поля центральных нейронов (центральные или вторичные поля) могут быть больше, чем первичные поля афферентных нервных волокон, поскольку многие первичные афферентные нервные волокна по-разному сходятся к отдельным центральным сенсорным нейронам.
2. Переработка информации. В нейронных сетях тормозные синапсы играют важную роль в ограничении возбуждения, а также при усилении и корректировке функций.
Рецептивные поля центральных сенсорных нейронов часто сложны. Они, например, могут состоять из возбуждающего центра и тормозящего окружения. Подобная структура служит для усиления контраста в форме латерального торможения. Это только особый случай выделения признаков в центральных нейронах. Все сенсорные системы имеют связи с неспецифическими мультимодальными популяциями нейронов, которые, например, служат для управления вниманием и состоянием бодрствования.
- Вернуться в раздел "Физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 16.1.2025