

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Передача информации в рецепторы и афферентные нейроны - с точки зрения физиологии человека
Оглавление статьи:- Процесс трансдукции
- Кодирование интенсивности раздражения
- Процесс трансформации
- Возникновение реакции, зависимой от скорости и пропорциональной раздражению
- Резюме
- Список использованной литературы
а) Процесс трансдукции. Рецепторы являются участками клеточной мембраны сенсорных нейронов, которые специализируются на приеме раздражителей и их «переводе» (трансдукции) в нервное возбуждение.
1. Рецепторы. В каждом органе чувств есть рецепторы, возбуждение которых вызывает сенсорный процесс. Однако понятие рецептор на сегодняшний день, к сожалению, больше не однозначно. Первоначально под ним понималась чувствительная клетка.
Сегодня этот термин используется молекулярными биологами, которые понимают под ним комплекс молекул в клеточной мембране, специфически реагирующих с другими молекулами (например, гормонами). Психологи чувств понимают под понятием «рецептор» область мембраны чувствительной клетки или афферентного нейрона, который специализируется на том, чтобы перевести раздражители в нейронную информацию.
В области соматовисцеральной чувствительности рецепторы представлены периферическими окончаниями аксонов и дендритов афферентных нервных волокон. Такие окончания могут свободно располагаться в ткани в виде оголенных нервных окончаний или заложены в специальных структурах, например в капсулах или мышечных веретенах.
В некоторых органах чувств афферентные нервные окончания, напротив, связаны со специализированными чувствительными клетками не нейронного происхождения, например в улитке уха с волосковыми клетками. В сетчатке, наконец, есть чувствительные клетки нейронного происхождения, палочки и колбочки, наружным частям которых также соответствует используемое здесь определение рецептора.
2. Трансдукция. Раздражение рецепторов приводит к локальным изменениям потенциала мембраны — рецепторному потенциалу. Этот процесс перевода раздражения в изменение потенциала мембраны называется трансдукцией. Поскольку рецепторные потенциалы в прилежащих афферентных нервных волокнах ведут к генерации потенциалов действия, их назвали также генераторными потенциалами.
3. Локализация области рецептора. Рецепторы можно определить как участки мембраны клеток, которые образуют рецепторные потенциалы. Они перекодируются в прилежащих афферентных нервных волокнах в потенциалы действия. Для некоторых рецепторов изменения внутриклеточного потенциала можно определить микроэлектродами при раздражении. На рис. 1 представлены примеры рецепторов.
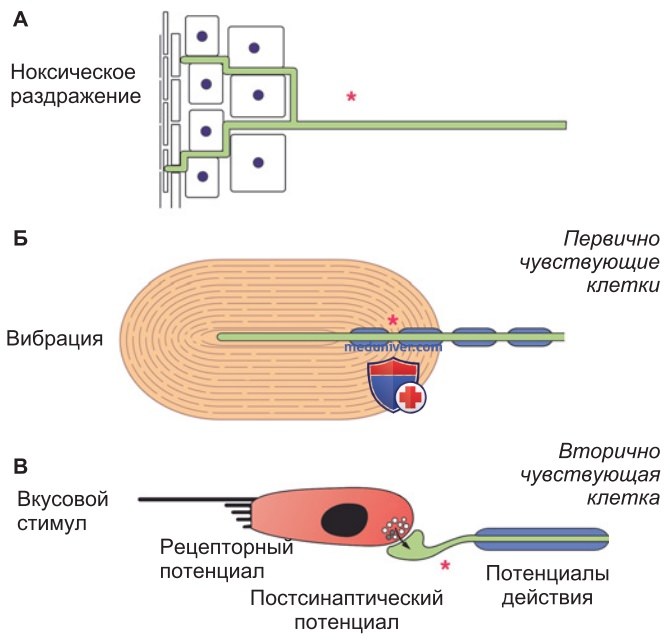
В ноцицепторе (А) и окончании Пачини (Б) рецепторный потенциал генерируется окончаниями афферентных нервных волокон. На рис. 1В представлено вкусовое волокно. Здесь рецепторный потенциал возникает не в нейронной клетке (вторично чувствующая клетка). В последнем случае афферентный аксон возбуждается через синаптический механизм.
б) Кодирование интенсивности раздражения. Рецепторные потенциалы являются градуальными местными ответами, т. е. отражают величину раздражения с помощью своей амплитуды.
1. Порог и область работы рецепторов. Как правило, адекватный раздражитель, с одной стороны, должен достигать минимального размера, чтобы превысить порог возбуждения. С другой стороны, экстремально сильные раздражители часто не приводят к увеличению рецепторного потенциала. Каждый рецептор, таким образом, имеет область чувствительности, или работы.
2. Изменение потенциала мембраны при рецепторных потенциалах. Для большинства рецепторов их потенциалы являются деполяризующими. У фоторецепторов в сетчатке, палочках и колбочках, поток ионов идет преимущественно в темноте. Появившиеся фотоны изменяют конфигурацию фоточувствительной молекулы в наружных сегментах рецепторов, что вызывает появление «вторичного мессенджера», который и приводит к снижению проводимости натриевых каналов. Здесь генерируется гиперполяризующий рецепторный потенциал.
3. Чувствительность процесса трансдукции. Раздражение не служит непосредственным источником энергии рецепторного потенциала. Он управляет — как уже отмечалось — только потоками ионов с помощью мембраны. В некоторых случаях процесс трансдукции может быть таким чувствительным, что достигается теоретический предел. Так, волосковые клетки улитки способны возбуждаться уже при перемещениях на расстояния не больше, чем диаметр атома водорода.
Уже одного кванта света достаточно, чтобы вызвать мембранный ток в отдельных палочках сетчатки такой силы, что возникающий генераторный потенциал заметно повлияет на активность последующих ганглиозных клеток сетчатки. В этих случаях с трансдукцией связан значительный процесс усиления.
в) Процесс трансформации. Рецепторные потенциалы перекодируются в афферентных нейронах в серии потенциалов действия; этот процесс называют трансформацией; величина изменения рецепторного потенциала трансформируется в последовательности потенциалов действия различной частоты, которые проводятся дальше.
1. Рецепторный потенциал как генераторный потенциал. На следующем этапе сенсорного процесса возбуждения рецепторный потенциал вызывает серии потенциалов действия, поэтому он называется генераторным потенциалом. В тельцах Пачини (ТП-рецептор) эта трансформация происходит в первом перехвате Ранвье афферентного нервного волокна. Генераторный потенциал должен электротонически распространяться до этого участка возникновения потенциалов действий, т. е. так же как и синаптические потенциалы к аксонному холмику (рис. ниже).
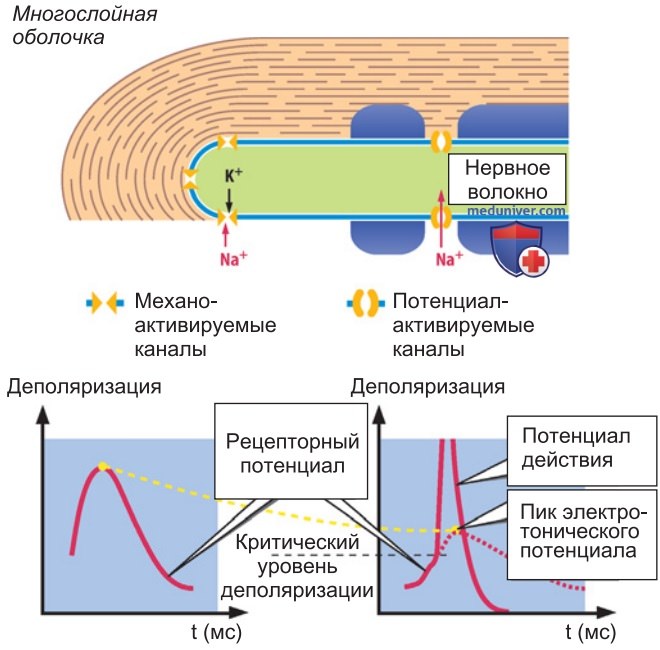
В некоторых рецепторных клетках, например, в волосковых клетках внутреннего уха и в фоторецепторах сетчатки, потенциалы действия вызываются в клетках, расположенных позже. В таких случаях между рецепторным потенциалом и возникновением серии потенциалов действия имеются синаптические процессы. В палочках и колбочках функцию генераторного потенциала выполняют постсинаптические потенциалы в ганглиозных клетках сетчатки.
2. Перекодирование в потенциалы действия. На рис. 2 представлены генераторные потенциалы и вызванные ими потенциалы действия на примере мышечного веретена лягушки. В то время как в генераторном потенциале интенсивность раздражения отражается в величине деполяризации, амплитуды распространиющихся потенциалов действия подчиняются закону «все или ничего». Отражение интенсивности раздражения осуществляется посредством изменения частоты. Частота импульса афферентных нервных волокон постоянно отражает амплитуду генераторного потенциала.
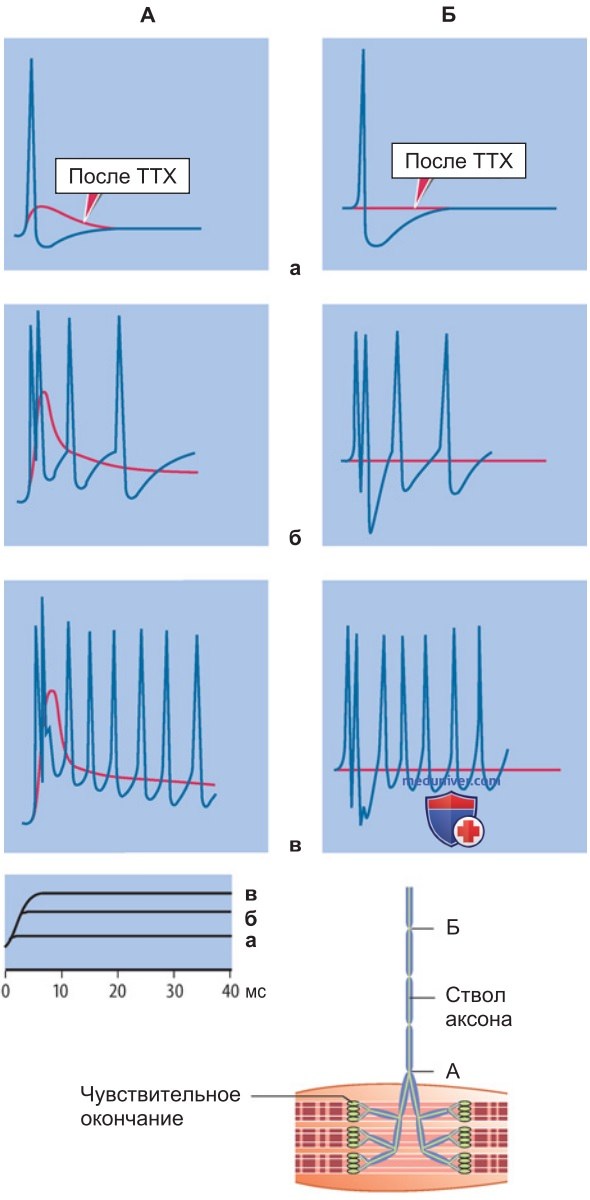
Схожее перекодирование локального потенциала, амплитуда которого варьирует в распространяющиеся сигналы с переменной частотой, снова происходит в синапсах центральной нервной системы.
г) Возникновение реакции, зависимой от скорости и пропорциональной раздражению. Многие рецепторы в процессе возникновения реакции кодируют скорость изменений раздражения, другие кодируют величину раздражения или оба параметра.
1. Динамическое возникновение реакции. Реакции афферентных волокон мышечного веретена не могут точно передать процесс стимуляции (рис. 2). Этот рецептор и его афферентное волокно реагируют непропорционально: если стимуляция резко усиливается, они сигнализируют о скорости изменения раздражения. Такой аспект реакции раздражения называют динамическим, фазическим или дифференциальным ответом (отношение производной расстояния к единице времени соответствует скорости, или dL/dt = v).
2. Пропорциональное возникновение реакции. Если рецептор, наоборот, кодирует раздражение независимо от скорости, с которой оно изменяется, то говорят о тоническом, статическом или пропорциональном ответе. Во многих рецепторах тоническая реакция тоже медленно снижается при достаточно продолжительной одинаковой стимуляции. Снижение возбуждения в течение времени при сохраняющейся стимуляции называют адаптацией. Следует отличать адаптацию от привыкания, под которым подразумевается ограниченная реакция целого организма на продолжительное воздействие раздражителя.
3. Пропорционально-дифференциальное возникновение реакции. В сенсорных системах возникают афференты с экстремально быстрой адаптацией, например тельца Пачини, и с экстремально долгой адаптацией, например вторичные афференты мышечных волокон. Большинство афферентов, однако, имеют пропорционально-дифференциальную характеристику, или ПД-характеристику (рис. 2). Они передают в ЦНС информацию о силе раздражения (пропорциональный ответ), а также выделяют особо важные для регулярных процессов (рефлексов) стремительные изменения стимуляции с помощью повышенной частоты импульсации (дифференциальный ответ).
Эта первоочередная передача информации о быстрых изменениях раздражения еще больше усиливается во многих сенсорных путях при передаче в высшие отделы ЦНС.
4. Определяющие факторы возникновения реакции. Различная скорость адаптации нейронов частично определяется строением рецепторов, частично характеристиками процесса трансформации. У тельца Пачини важной основой чрезвычайно быстрой адаптации, которая делает этот рецептор детектором ускорения, служит многослойная структура вокруг рецептора. Структура очень грубая и действует как механический фильтр верхних частот, защищающий сенсорное окончание, т. е. рецептор, от постоянного давления и передающий только высокочастотные вибрации.
Различная скорость адаптации, однако, обусловлена не только строением рецепторов, но и процессом трансформации. Если деполяризовать, например, первый перехват Ранвье тельца Пачини длительным импульсом тока, это вызовет только краткосрочную реакцию в виде 1-2 потенциалов действия. Если провести похожий эксперимент на первом перехвате Ранвье афферента мышечного веретена лягушки, то такая продолжительная деполяризация вызывает длительную серию потенциалов действия.
Окончательное установление скорости адаптации афферентного нервного волокна осуществляется, таким образом, только в проводящей мембране при перекодировании в серию потенциалов действия.
1. Передача информации в рецепторах и афферентных нейронах. Информация о раздражении дважды «переводится» при передаче в ЦНС:
• Трансдукция: интенсивность физических и химических раздражений переводится специальными участками клеточной мембраны, рецепторами, в изменение потенциала мембраны. Амплитуда возникшего таким образом потенциала (рецепторного потенциала) отражает силу раздражения.
• Трансформация: чтобы потенциал можно было передать через афферентные нейроны, он перекодируется в серию потенциалов действия. Амплитуда рецепторного потенциала при этом отражается с помощью частоты потенциалов действия. Во многих рецепторах трансформация происходит в несколько ступеней, например при включении вставочного синапса.
2. Рецепторы. Рецепторы обеспечивают различную реакцию на определенные параметры раздражения: о динамической реакции говорят, если рецептор непропорционально сильно реагирует на скорость изменения стимуляции. Пропорциональную реакцию проявляет рецептор, который кодирует раздражение независимо от скорости, с которой оно изменяется. Большинство рецепторов кодируют оба параметра; они проявляют пропорционально-дифференциальную реакцию.
- Рекомендуем ознакомиться далее "Молекулярные механизмы трансдукции раздражителей - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 16.1.2025