

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Обработка сигналов в зрительной системе мозга - с точки зрения физиологии человека
Оглавление статьи:- Первичный зрительный тракт
- Специальные подкорковые проекции и экстрастриарный зрительный тракт
- Ретинотопия
- Рецептивные свойства полей первичной зрительной коры
- Функциональная анатомия первичной зрительной коры
- Высшие зрительные центры затылочной доли
- Резюме
- Список использованной литературы
а) Первичный зрительный тракт. Зрительная информация проводится от глаза по направлению к центру через зрительный нерв и зрительную лучистость.
1. Зрительный нерв. Зрительный нерв глаза содержит примерно 1 млн аксонов. Зрительные нервы обоих глаз у основания черепа объединяются в перекрест (хиазму) зрительных нервов (рис. 1).
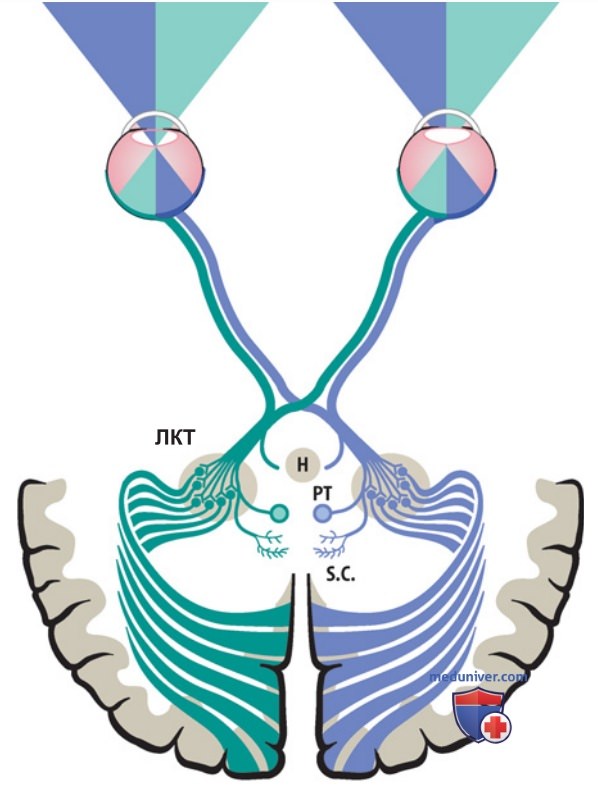
Зрительные нервные волокна, выходящие из носовой половины сетчатки, пересекаются в хиазме с волокнами с противоположной стороны и вместе с не переходящими на другую сторону зрительными волокнами от височной половины сетчатки идут в составе зрительного тракта к месту первого переключения первичного зрительного тракта в мозге. Здесь они представляют противоположную половину поля зрения.
2. Латеральное коленчатое тело. Важнейшими и сильнейшими проекциями сетчатки у человека являются связи с латеральным коленчатым телом, таламическим центром переключения зрительного тракта в промежуточном мозге, который состоит из двух вентральных магноцеллюлярных и четырех дорсальных парвоцеллюлярных слоев.
Между ними лежат узкие кониоцеллюлярные слои. Соответствующие клеточные классы из сетчатки проецируют в относящиеся к ним слои таламуса. Нервные клетки ЛКТ, как и ганглиозные клетки сетчатки, имеют концентрически организованные РП. Часто одновременный контраст значительно усиливается благодаря дополнительным внутриталамическим механизмам торможения.
Парвоцеллюлярные и кониоцеллюлярные слои характеризуются цветоспецифическими РП. Первичный зрительный тракт, проходящий через ЛКТ в зону V1, служит для узнавания объектов, цветного зрения, распознавания движений, восприятия пространства и стереоскопического видения глубины.
3. Невизуальная модуляция. На нервных клетках ЛКТ оканчиваются синаптическими контактами не только аксоны зрительного нерва и проецирующие в обратную сторону нейроны первичной зрительной коры (45%), но и многочисленные синапсы аксонов, клетки которых лежат в стволе мозга. Эти незрительные синапсы модулируют обработку зрительных сигналов в ЛКТ в зависимости от уровня бодрствования, пространственного внимания и связанных с этим движений глаз.
4. Зрительная лучистость. Примерно 1 млн аксонов клеток ЛКТ после переключения идут через зрительную лучистость (radiatio optica) к нервным клеткам первичной зрительной коры (area striata, или зона V1 затылочной коры головного мозга). Оттуда дальнейшие связи идут к экстрастриарным зрительным полям коры головного мозга, а также к описываемым ниже интеграционным зрительным областям в теменной и височной коре головного мозга.
б) Специальные подкорковые проекции и экстрастриарный зрительный тракт. Дальнейшие подкорковые проекции участвуют в управлении движениями глаз и определенными вегетативными функциями; часть их достигает теменной коры в составе экстрастриарного зрительного тракта.
1. Гипоталамус. Связи сетчатки с гипоталамусом в промежуточном мозге опосредуют сигналы для управления частью эндокринной системы и служат для сопряжения эндогенного циркадианного ритма и режима сна—бодрствования с суточными изменениями освещенности.
2. Претектальная область. Часть связей между сетчаткой и претектальной областью на границе между средним и промежуточным мозгом служит для регулирования ширины зрачка. Другие аксоны зрительного нерва заканчиваются в ядрах претектальной области, которые связаны с расположенными в стволе мозга моторными центрами взора, управляющими вергентными движениями глаз.
Определенные ганглиозные клетки сетчатки, специфичные к движениям, иннервируют клетки ядра зрительного тракта (NOT) в претектальной области. От нейронов NOT волокна идут к нижней оливе и через ретикулярное ядро покрышки моста к вестибулярным ядрам ствола мозга. Таким образом, зрительные сигналы о движении достигают центральной вестибулярной системы и мозжечка (оливоцеребеллярные лазающие волокна).
Обе проекции выполняют функцию управления горизонтальным оптокинетическим нистагмом (ОКН) и движением взгляда при горизонтальных движениях головы.
3. Верхнее двухолмие и экстрастриарный зрительный тракт. Проекции клеток магноцеллюлярной системы и клеток гетерогенной мелкоклеточной системы сетчатки в верхнее двухолмие среднего мозга служат для управления рефлекторной моторикой взгляда через саккады и целенаправленные движения головы (зрительный хватательный рефлекс). Зрительные сигналы сетчатки достигают через верхнее двухолмие и зрительную часть подушки таламуса «в обход» ЛКТ теменных зрительных ассоциативных областей (экстрастриарный зрительный тракт).
в) Ретинотопия. Зрительный тракт и центральная зрительная система организованы ретинотопически — соседские отношения клеток сетчатки сохраняются на всех уровнях зрительного тракта. Для соматосенсорной и моторной систем выше уже был описан принцип представления тела в ЦНС (соматотопия). По аналогичному принципу строится нейронное отображение сетчатки в мозге.
Афферентная и центральная части зрительной системы характеризуются ретинотопической организацией. Изображение на сетчатке проецируется в виде пространственного паттерна возбуждения (как на карте) в центральных зрительных областях мозга. Однако ретинотопическая проекция сетчатки в центральную зрительную систему является не линейной, а искаженной.
В направлении от центральной ямки к периферии сетчатки уменьшается коэффициент увеличения (размер проекции 1° угла зрения в мм): небольшая по площади центральная ямка проецирует в гораздо большие области латерального коленчатого тела и первичной зрительной коры, чем, например, равная по площади зона на периферии сетчатки.
г) Рецептивные свойства полей первичной зрительной коры. Нервные клетки области V1 определяют локальные структурные свойства зрительных стимулов.
1. Специфичность к ориентации и направлению. В РП многочисленных нейронов первичной зрительной коры есть параллельно расположенные on- и off-зоны (рис. 2А). Это приводит к тому, что рассеянное освещение всего рецептивного поля, как правило, весьма незначительно влияет на спонтанную активность данных нейронов. В то же время, если в РП проецируется «световая полоса» в правильной ориентации и положении, то такая стимуляция вызывает сильную активацию нейронов (ориентационная специфичность; рис. 2А).
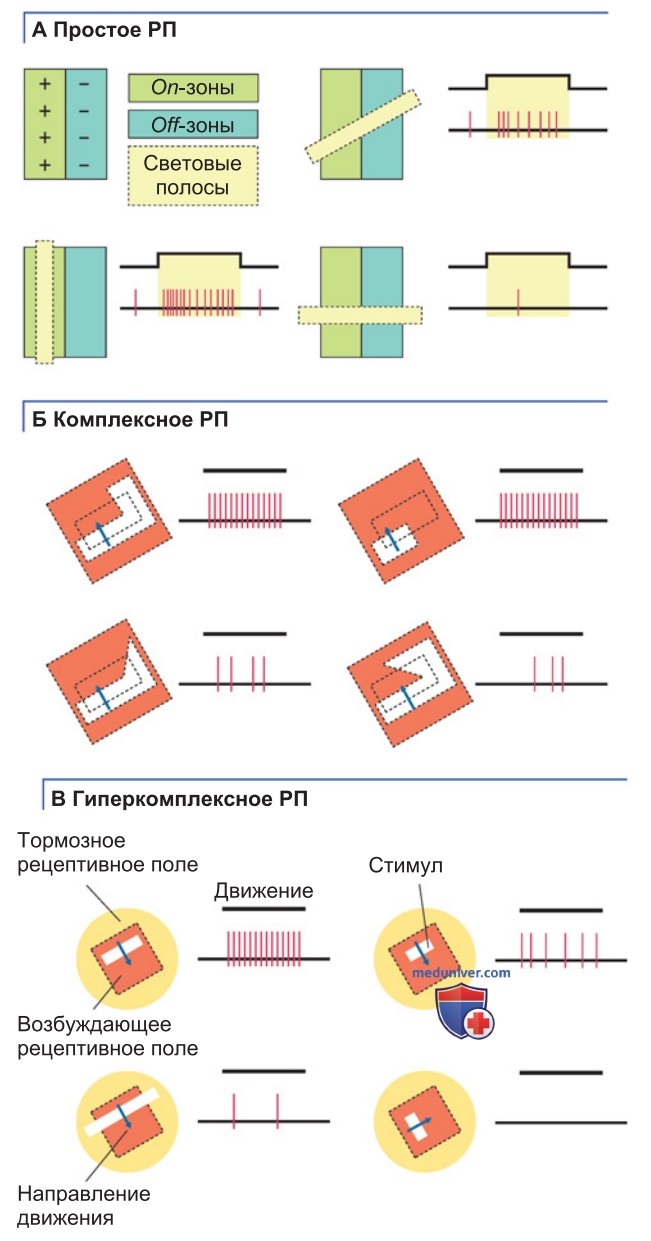
Часто в случае подвижных стимулов эта реакция проявляется в ответ на движение стимула в определенном направлении, но не в противоположном (специфичность направления; рис. 3А). Если световая полоса ориентирована перпендикулярно оптимальному направлению, то нейроны активируются слабо. Поскольку функциональную организацию РП из параллельных on- и off-зон можно легко определить, проецируя на РП маленькие световые точки, эти поля назвали простыми рецептивными полями.
2. Комплексы и гиперкомплексные рецептивные поля. Другие нейроны зоны V1 имеют комплексные РП. Обработка сигнала в этих нервных клетках в еще большей степени характеризуется отбором сигналов, чем в нейронах с простыми РП. On- и off-зоны здесь не разделены, а перекрывают друг друга. Мелкие точки света, проецируемые в РП, не вызывают усиления нейронной активности, в то время как светотеневые контуры определенной пространственной ориентации и протяженности или прерывания контуров и углы являются наиболее эффективными стимулирующими образами (рис. 2Б).
Та часть РП, в которой правильно выбранный способ стимуляции вызывает активацию, называется возбуждающим рецептивным полем (ВРП). Во многих клетках ВРП окружено областью, в которой рисунок светотени вызывает только торможение нейронной активности (ингибиторное рецептивное поле, ИРП). Клетки с конечным торможением, которое приводит к специфичности размера стимула, называются гиперкомплексными клетками (рис. 2В).
д) Функциональная анатомия первичной зрительной коры. В первичной зрительной коре цвет, контраст, контуры и движение стимулирующих паттернов представлены активностью различных нейронных систем.
1. Функциональная структура зрительной коры. Первичная зрительная кора человека (зона V1) и других приматов цитоархитектонически дифференцирована: цитоархитектонический клеточный слой 4 очень толстый и подразделяется на три подслоя (4 А-В). В подслоях находится большая часть афферентных аксонов из синаптических контактов ЛКТ.
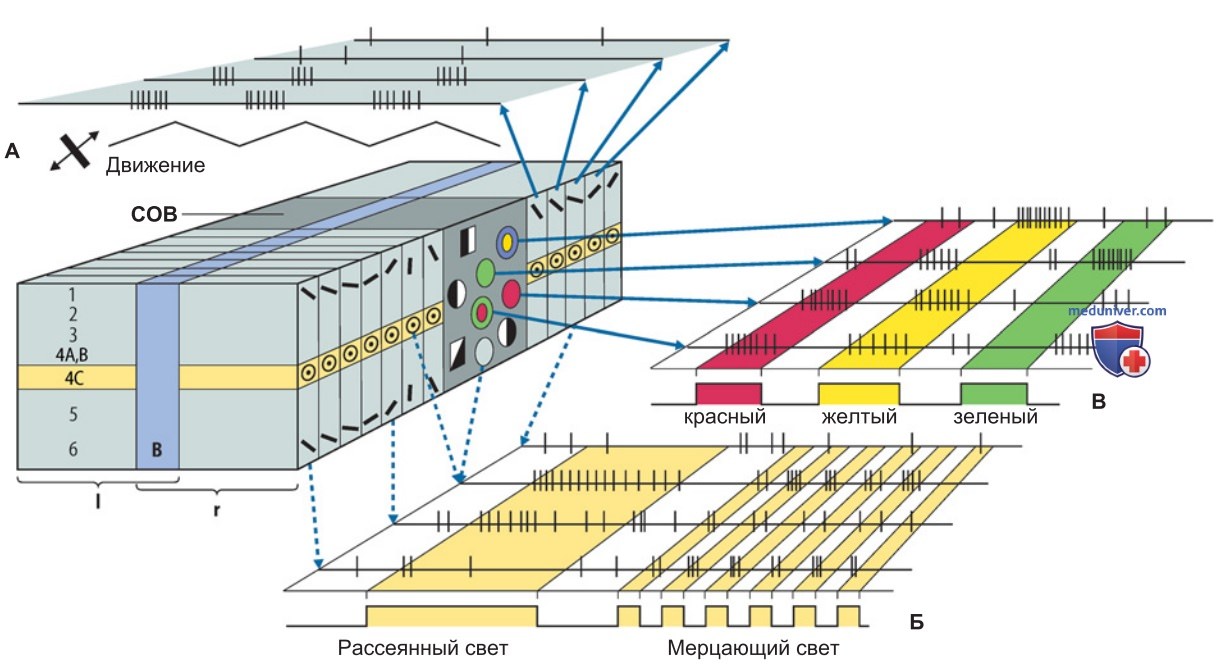
Наряду с цитоархитектонической дифференциацией на горизонтальные клеточные слои зона V1 функционально подразделяется на вертикальные «клеточные колонки» (рис. 3). Нервные клетки зрительной колонки функционально реагируют как единое целое, что обусловлено ретинотопической организацией афферентных нейронов и вертикальной связью через аксоны интернейронов внутри колонки. Зона V1 приматов работает в соответствии со следующими функциональными принципами.
- Слои 4 и 6 являются основными входными слоями для таламокортикальных аксонов зрительной лучистости.
- Нервные клетки колонки имеют рецептивные поля в одной области поля зрения.
- Нервные клетки слоя 4С имеют концентрические и «простые» рецептивные поля и относительно неспецифично реагируют на черно-белые и цветные стимулы. Нервные клетки слоя 4В специфически обрабатывают ретинальные сигналы о движущихся стимулах.
- Нейроны клеточных слоев I—III хорошо реагируют на светотеневые контуры определенной пространственной ориентации (ориентационная специфичность) и с определенным направлением движения (специфичность к движению).
- Зачастую бинокулярно иннервированные нейроны зоны V1 подразделяются на глазодоминантные колонки (рис. 3) и сильнее активируются сигналами от левого или правого глаза.
- Глазодоминантные колонки подразделяются на ориентационные колонки (рис. 3). Нервные клетки цитоархитектонических слоев I—III и V—VI, локализованные внутри определенной ориентационной колонки, лучше всего реагируют на светотеневые контуры одинаковой пространственной ориентации (рис. 3).
- Между ориентационными колонками есть области, богатые цитохромоксидазой (рис. 3Б), с нервными клетками без ориентационной преференции, которые избирательно реагируют на контуры, формируемые двумя определенными цветами (цветоспецифичность).
- Аксоны нервных клеток слоев 3 и 4 проецируют в экстрастриарные зрительные области, например в зоны V2, V3, V4 и V5 (МТ).
- От клеток нижних слоев кортикофугальные аксоны идут обратно к подкорковым центрам зрительной системы (из слоя V к верхнему двухолмию и из слоя VI к ЛКТ).
- В зоне V1 заканчиваются не только афферентные зрительные синаптические контакты, но и многие пути обратной связи из высших зрительных областей коры головного мозга, а также волокна от неспецифических интраламинарных ядер таламуса.
е) Высшие зрительные центры затылочной доли. Экстрастриарные зрительные области затылочной доли коры головного мозга различными способами обрабатывают особенности контраста, формы и цвета зрительных образов.
1. Зрительные области мозга. На рис. 4 показана схема внешней поверхности головного мозга макаки-резус (вид сверху) с различимыми зрительными корковыми полями зоны V1 (area striata, первичная зрительная кора) и экстрастриарных зрительных областей. Большая часть зрительных областей коры головного мозга скрыта в извилинах затылочной и височной долей. Для активных днем приматов зрение является основным органом чувств.
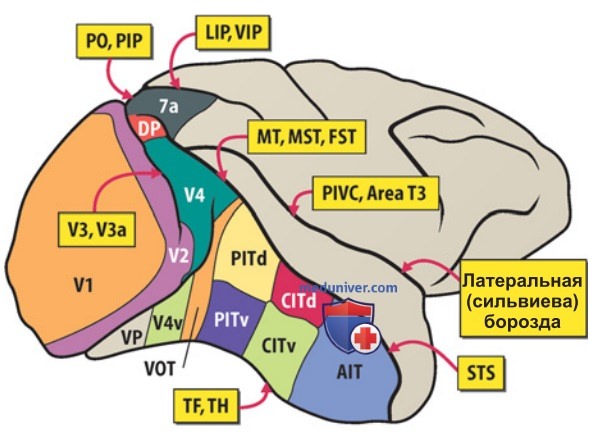
По меньшей мере, 60% коры их головного мозга является ретинотопически организованными «элементарными» зрительными полями, зрительными ассоциативными областями или областями зрительно-глазодвигательной интеграции. В настоящее время у приматов известно более 30 областей коры головного мозга, которые обладают зрительными или зрительно-моторными функциями. Кроме того, в ходе последних 2,5 млн лет филогенеза в человеческой коре головного мозга возникли специфические для человека зрительные области коры, которые прежде всего необходимы для ориентации в пространстве и визуально-конструктивных способностей.
2. Зона V2. Зона V2 получает свои важнейшие зрительные входы от клеток зоны V1. Вместо функциональной организации нейронов в кортикальные колонки, как в зоне V1, нервные клетки зоны V2 функционально упорядочены в полосы. Эти полосы идут вдоль поверхности мозга, и их функциональная специализация в основном затрагивает средние слои коры. С помощью окраски на цитохромоксидазу были обнаружены три класса полос.
В узких насыщенных цитохромоксидазой полосах обрабатывается цветоспецифичная информация из насыщенных цитохромоксидазой областей зоны V1, а также обрабатывается специфичная для движений и стереоскопическая информация из слоя 4В, в то время как формоспецифичные сигналы обнаруживаются в узких полосах, слабонасыщенных цитохромоксидазой. Особенно важна зона V2 для зрительного узнавания формы. Контуры определенной ориентации служат зрительными стимулами, которые особенно сильно активируют нейроны зоны V2.
Часть этих нейронов реагирует на зрительные контуры, отсутствующие в действительности, но воспринимаемые реальными. Это свойство указывает на то, что в нейронной сети зоны V2 уже происходят функциональные «дополнения образа», важные для восприятия объектов в повседневной жизни.
3. Зона V3. Нейроны зоны V2 особенно чувствительны к подвижным контурам и информации о глубине пространства. Их РП значительно больше, чем в зоне V1. Функционально зона V3 может распознавать формы отдельных подвижных объектов и анализировать инвариантность формы при вращении или отдалении трехмерного предмета.
4. Зона V4. Аксоны цветоспецифичных нейронов зон V1 и V2 идут в зону V4. Там нервные клетки реагируют на относительно узкую секцию цветового пространства цветов поверхности или на цветные контуры. Вероятно, зона V4 выполняет важную функцию восприятия цветов поверхности и узнавания объекта через цветовые контрасты.
1. Обработка сигнала в зрительной системе:
1.1 Подкорковые проекции: примерно 1 млн зрительных нервных волокон передает зрительную информацию от каждого глаза в мозг. Афференты от глаза несут различные специализированные функции. Для осознанного восприятия изображений стриарный зрительный тракт ретинотопически проецирует в латеральное коленчатое тело (ЛКТ) в промежуточном мозге, откуда информация для восприятия формы, цвета, пространства и движения передается в первичную зрительную кору.
Верхнее двухолмие в среднем мозге в основном служат для интеграции мультисенсорных и моторных сигналов, ретинотопическая зрительная проекция связана здесь в т. ч. с координацией саккад. Важной частью проекций в претектальную область на границе среднего и промежуточного мозга являются афференты зрачкового рефлекса, другая часть вместе с вестибулярными ядрами участвует в управлении горизонтальными движениями глаз. Волокна, идущие от сетчатки к гипоталамусу в промежуточном мозге, обеспечивают входные сигналы для модуляции циркадных ритмов.
1.2 Первичная зрительная кора: первичная зрительная кора (V1) организована строго ретинотопически. Проекция небольшой центральной части поля зрения, соответствующей центральной ямке, занимает большую часть площади зоны V1. По сравнению с ЛКТ в первичной зрительной коре происходит фундаментальное изменение свойств рецептивных полей.
В то время как подкорковые поля с концентрически-антагонистической структурой служат для высокого разрешения пространства и усиления контрастов, корковые нейроны участвуют в осуществлении более комплексного анализа. В простых, комплексных и гиперкомплексных рецептивных полях зоны V1 обнаруживаются специфические ответы на ориентацию или цвет стимула, направление движения объекта.
Локальные подструктуры связаны со специфическими сигналами: входы обоих глаз организованы в глазодоминантные колонки, ориентационно-специфичные сигналы — в ориентационные колонки, цветоспецифичные — в определенные, богатые цитохромоксидазой области.
1.3 Экстрастриарные затылочные области: возрастающая функциональная специализация зрительных областей коры продолжается в экстрастриарных затылочных областях от V2 до V4. В V2 цвет, форма, а также сигналы, специфические для движений и глубины пространства, обрабатываются и анализируются параллельно, но отдельно друг от друга в полосообразных структурах.
В V3 преимущественно осуществляется анализ подвижных объектов, цветоспецифичность клеток практически отсутствует, однако большинство нейронов чувствительны к ориентации, направлению и диспаритету. В V4, напротив, доминирует анализ объектов на основе цвета и цветового контраста.
Видео проводящий путь зрительного анализатора (зрительного нерва)
- Рекомендуем ознакомиться далее "Клинически-диагностическое применение элементарной физиологии зрения - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 25.4.2025