

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Функциональная организация моторных областей коры головного мозга - с точки зрения физиологии человека
Оглавление статьи:- Моторные области коры
- Афференты, идущие к моторной коре
- Эфференты моторной коры
- Кортикомотонейронная система мотонейронов кисти руки
- Коротко
- Список использованной литературы
а) Моторные области коры. Моторная кора состоит из первичной моторной коры М1 и вторичных моторных областей (премоторной коры и дополнительной моторной области).
1. Определение. Под собирательным понятием «моторная кора» подразумевают области, расположенные перед центральной бороздой и обладающие характерной цитоархитектоникой. К ним относятся первичная моторная кора (поле 4 по Бродманну) и вторичные моторные области с премоторной корой (латеральная область 6) и дополнительной моторной корой (медиальная область 6).
Область Брока, важная для моторной организации речи, и лобное глазодвигательное поле тоже относятся к премоторной коре.
Рострально и вентрально по отношению к дополнительной моторной коре в ростральной поясной коре (называемой также цингулярной от лат. cingulum — пояс) находится область 24. Эта ростральная поясная кора также относится некоторыми авторами ко вторичным моторным областям. На рис. 1А представлены компоненты моторной коры, а также другие корковые зоны, не входящие в это понятие.
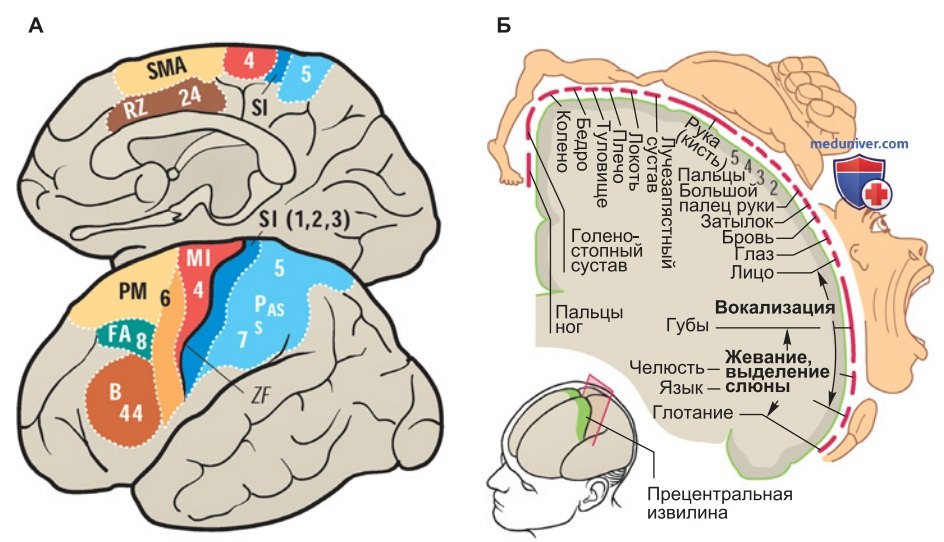
2. Первичная моторная кора. Область прецентральной извилины называется первичной моторной корой, поскольку здесь стимулы минимальной интенсивности вызывают реакцию контралатеральной мышцы с очень маленькой задержкой. Первичная моторная кора лежит рострально по отношению к центральной борозде и большей частью скрыта в ее передней стенке.
Из-за сенсорных входов ее еще называют мотосенсорной корой. У человека прецентральная извилина характеризуется прежде всего значительной толщиной (около 3,5-4,5 мм) и гигантскими пирамидными клетками (клетки Беца, диаметром 50-100 мкм) в нижнем V слое коры (Vb, считая снаружи).
Аксоны этих и других меньших по размеру пирамидных клеток в III и верхней части V слоя (Va) выходят из моторной коры в направлении внутренней капсулы, в то время как их дендриты в основном идут к поверхности коры.
Эксперименты по стимуляции продемонстрировали значительную степень соматотопии: смежные участки тела расположены друг рядом с другом на первичной моторной коре. Уменьшенное таким образом тело представляется в коре головного мозга в виде «гомункулуса», при этом область головы представлена сбоку и снизу (латерально), а нижние конечности — вверху посередине (медиально).
Однако пропорции гомункулуса искажены, так как для определенных частей тела характерны очень тонкие двигательные навыки; у человека это прежде всего моторика рук и речевой аппарат. Другие части тела, напротив, характеризуются достаточно грубыми движениями (спина) или высокой долей автоматической регуляции (позные мышцы и мышцы, поддерживающие положение тела). Те или иные области коры в соответствии с этим имеют больший или меньший размер (рис. 1Б).
3. Дополнительная моторная кора и премоторная кора. Рострально по отношению к первичной моторной коре лежат две области, которые в совокупности называют вторичной моторной корой. К ним относятся дополнительная моторная кора в мезиальной части поля 6 и премоторная кора в ее латеральной части.
В дополнительной моторной коре число кортикоспинальных нейронов велико, а пороговая интенсивность электрического стимула лишь ненамного выше, чем в первичной моторной коре, тогда как порог раздражения в премоторной коре значительно выше. В обеих областях соматотопическая организация выражена намного слабее или менее полная.
Вторичные моторные области взаимно связаны с первичной моторной корой через кортикоспинальные соединения. Постцентрально моторные реакции в ответ на стимуляцию можно вызвать в соматосенсорной коре и теменных ассоциативных областях 5 и 7.
Функциональные свойства нейронов отчасти схожи, однако их вес варьирует от области к области. Четкое различие наблюдается в сенсорных свойствах нейронов дополнительной моторной области и премоторной коры: нейроны дополнительной коры особенно чувствительны к раздражению проприоцептивными стимулами, тогда как нейроны премоторной коры скорее реагируют на тактильные и визуальные раздражители.
Таким образом, премоторная кора в большей степени включается в работу при выполнении сенсорно направленных движений, а дополнительная моторная кора при выполнении движений, инициированых самостоятельно. Некоторые нервные клетки премоторной коры активны как при планировании и выполнении, так и при пассивном наблюдении тех же самых движений у другого индивида (так называемые «зеркальные нейроны»).
4. Функциональная численность нейронов моторной коры. Пирамидные клетки и многие интернейроны моторной коры расположены перпендикулярно поверхности, так что гистологически можно различить нейронные колонки, достигающие диаметра 80 мкм. Многие из этих колонок образуют функциональную моторную единицу диаметром около 1 мм. Соседние пирамидные клетки внутри моторного ствола разряжаются в зависимости от характера движения, частично однонаправленно, частично в противоположных направлениях.
Общим результатом такого поведения является движение соответствующего сустава, который был согнут или растянут. Таким образом, те самые корковые нейроны, которые влияют на определенную мышцу, не обнаруживаются ни в одной моторной колонке. Моторная колонка представляет собой скорее функциональную популяцию нейронов, которая воздействует на целый ряд мышц, связанных с определенным суставом.
Это не столько представительство мышц, сколько представительство движения в коре: отдельные мышцы представлены не в определенной точке моторной коры, а многократно во всей коре и могут возбуждаться большими участками моторной коры (площадь, равная многим квадратным миллиметрам).
б) Афференты, идущие к моторной коре. Таламокортикальные пути, кортикокортикальные связи и восходящие экстраталамические системы путей образуют афференты, идущие к моторной коре.
1. Таламокортикальный вход. Идущие к моторной коре пути исходят главным образом из таламуса, в основном из его вентральных областей. Там суммируется информация из мозжечка и базальных ганглиев, а также информация о сенсорной стимуляции из системы медиального лемниска. Информация из базальных ганглиев (прежде всего из бледного шара) направляется таламусом преимущественно в премоторную и вторичную моторную кору. Связи с поясной извилиной, относящейся к лимбической системе, существуют во всех компартментах моторной коры.
2. Кортикокортикальные входы. Через ассоциативные волокна, т. е. связи внутри коры головного мозга, премоторные области получают обширную информацию из теменной доли, тогда как дополнительная моторная кора получает информацию прежде всего от префронтальной коры, отвечающей за высшую когнитивную деятельность (сознание, намерение, мотивация).
3. Восходящие, экстраталамические системы путей. Область моторной коры особенно плотно снабжается норадренергическими волокнами из голубого пятна (locus coeruleus) и дофаминергическими волокнами из черной субстанции и других дофаминергических ядер ствола мозга. Эти аминергические нейроны оказывают модулирующее воздействие на синаптическую передачу. Данные системы волокон характеризуются выраженной коллатеральной дивергенцией в области коры. Это резко контрастирует со строгими топологическими отношениями двух вышеупомянтутых систем волокон.
Каким именно образом потоки формируют «шаблон команды», неизвестно. Следует, однако, помнить, что инициированию каждого движения предшествует постоянно изменяющаяся констелляция множества таламических и корковых вызванных паттернов возбуждения с задержкой, достигающей порядка 100 мс.
в) Эфференты моторной коры. Моторная кора посылает эфференты к другим областям коры, подкорковым моторным центрам, моторным центрам ствола мозга, а также к спинному мозгу. Кортикоспинальный тракт, преимущественно выходящий из первичной моторной коры, в виде пирамидного пути достигает мотонейроны, как правило, через олиго- или полисинаптические, но иногда и моносинаптические связи.
1. Эфференты, идущие к корковым и подкорковым областям. Эта самая большая в численном отношении часть эфферентов выходит из III слоя коры, идет к стриатуму, а также ипсилатерально (по той же стороне) и через мозолистое тело контралатерально — к соматосенсорным и вторичным моторным областям коры. Нейроны из IV слоя коры проецируют к таламусу.
2. Кортикоспинальный и кортиконуклеарный тракты. Большинство нисходящих аксонов исходит от мелких пирамидных клеток первичной моторной коры, лишь 5% из них исходит от гигантских клеток Беца. Однако некоторые эфференты выходят из вторичной моторной и премоторной коры и даже из соматосенсорных областей (области 1, 2 и 3). Из каждого полушария мозга ипсилатерально через внутреннюю капсулу и ножку головного мозга выходит около 1 млн аксонов.
В то время как кортиконуклеарные аксоны покидают тракт уже в стволе мозга, чтобы обеспечить те или иные ядра черепных нервов, кортикоспинальные аксоны идут дальше через варолиев мост и пирамиды к спинному мозгу. Именно из-за прохождения через пирамиды, а вовсе не из-за частичного происхождения из пирамидных клеток этот участок назван пирамидным трактом (рис. 2).
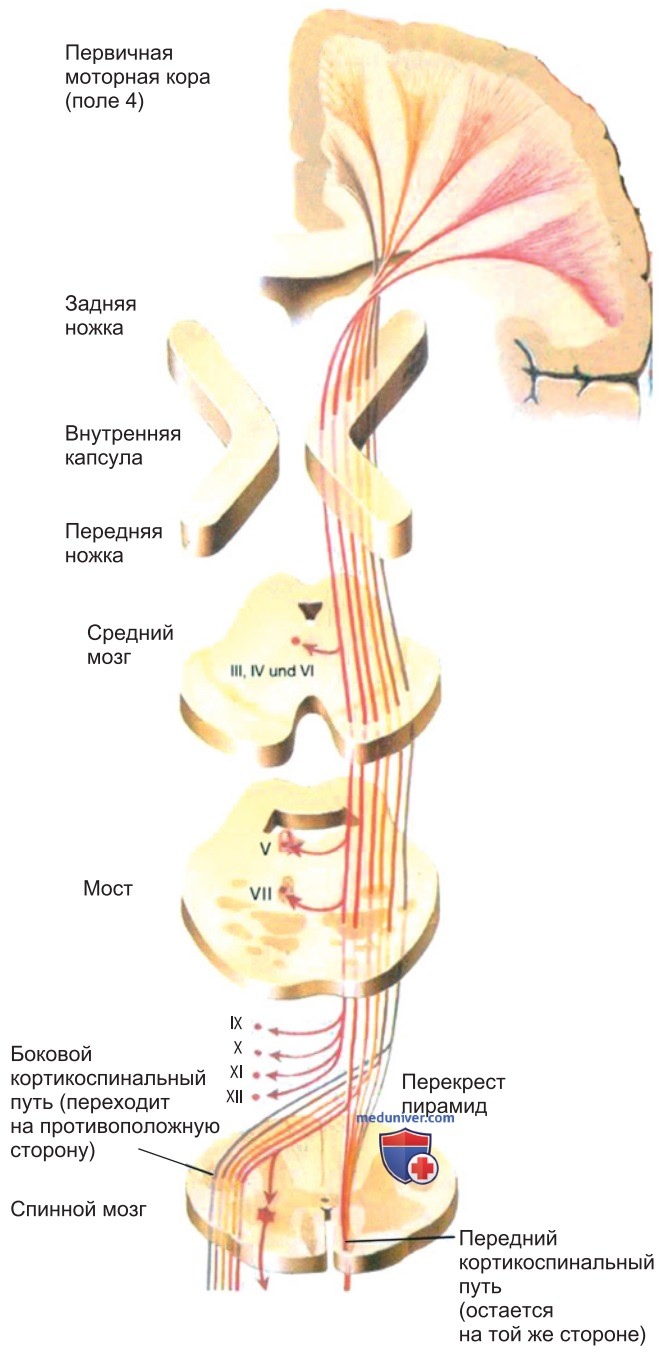
С эволюционной точки зрения пирамидный путь — самый молодой из нисходящих путей и развит у приматов и человека значительно сильнее, чем у других млекопитающих. В пирамиде 75-90% волокон переходят на противоположную сторону. Другая, меньшая, часть не переходя на контралатеральную сторону, идет в каудальном направлении. Эта часть волокон, как правило, достигает только шейного и грудного отделов спинного мозга, причем некоторые аксоны уже на сегментарном уровне переходят на противоположную сторону, так что процент перекреста аксонов увеличивается.
Аксоны пирамидного пути заканчиваются в спинном мозге, в основном на интернейронах. У приматов и у человека около 2% из них заканчиваются моносинаптически на α-мотонейронах в виде быстрых миелинизированных волокон, участвующих в непосредственном управлении мелкой моторикой (например, пальцами). Аксоны пирамидного пути преимущественно возбуждают мышцы-сгибатели и тормозят разгибатели. Далее пирамидный путь характеризуется рядом особенностей:
- От аксонов пирамидного тракта отходят многочисленные коллатерали к таким важным для моторики структурам, как ядра моста (оттуда в виде моховидных волокон идут к медиальной части мозжечка) и нижней оливе (оттуда идут к мозжечку в виде лазающих волокон). Передаваемые по ним сигналы представляют собой след моторной команды (эфферентный след). Смысл заключается в оптимизации выполнения движений, как уже говорилось, при сравнении эфферентной и афферентной копий в медиальной части мозжечка.
Анатомические связи с названными супраспинальными структурами особенно сильно развиты у человека.
Образно говоря, при каждой «подаче команды» «зажигается» множество различных очагов возбуждения в корковых и подкорковых структурах.
- Дивергенция кортикоспинальных связей с мотонейронами следует из многочисленных упомянутых коллатералей аксонов пирамидного тракта. Даже на сегментарном уровне спинного мозга одна коллатераль может достигать разных групп мотонейронов, относящихся к различным периферическим нервам. В области интернейронов ветвление терминалей нисходящих путей также очень заметно. Если же индивиду все-таки удается намеренно активировать незначительное число моторных единиц, это означает, что выбор происходит посредством модуляции интернейронов.
Другими словами, анатомически запрограммированная схема связей функционально гибкая, так как синаптические связи можно «открыть» путем облегчения или «закрыть» путем торможения.
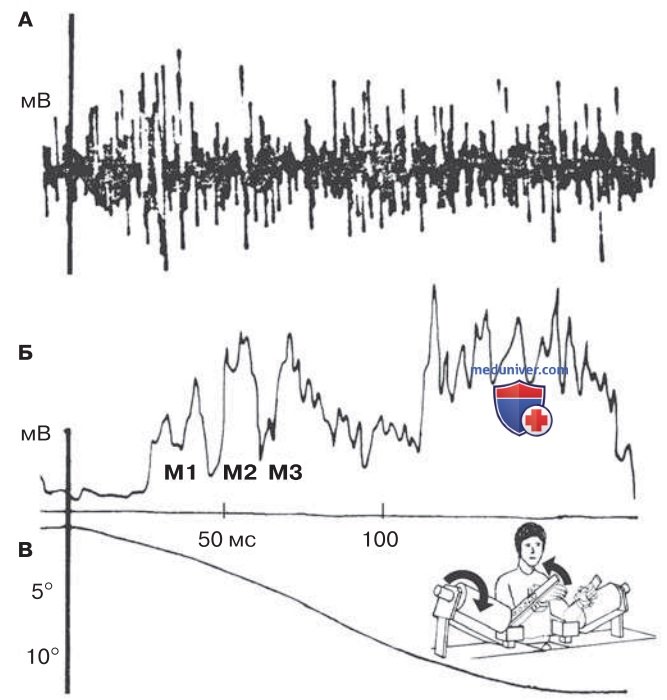
- Волокна пирамидного пути образуют эфферентную часть транскортикального рефлекса растяжения, афферентная часть которого обеспечивается обширными проприоцептивными и кожными рецептивными полями, проецирующими к моторной коре, таким образом представляя еще одну систему обратной связи для управления моторикой (long-loop рефлекс; рис. 3).
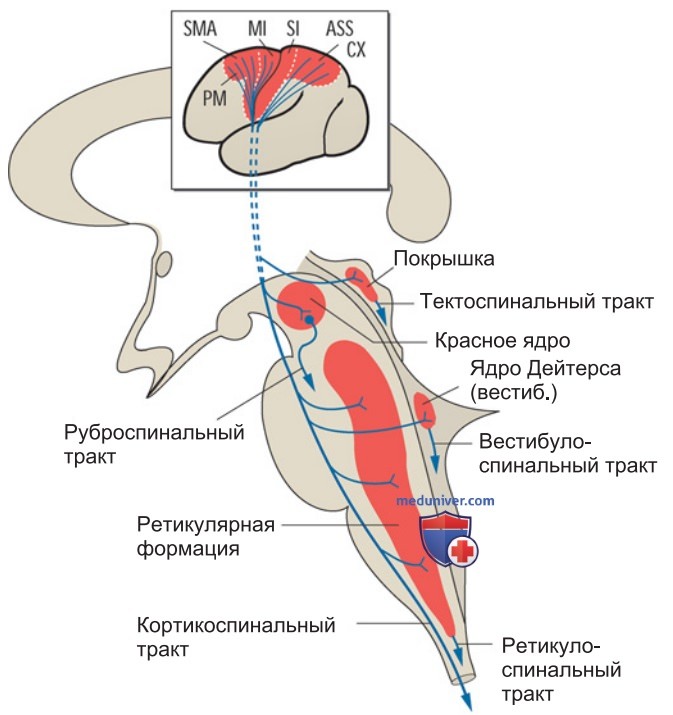
3. Эфференты к моторным центрам ствола мозга. Из слоя коры Va примерно тех же мотосенсорных областей, из которых исходит пирамидный тракт, эфференты идут к моторным центрам ствола мозга (рис. выше).
Это прежде всего кортикорубральные и кортикоретикулярные связи, которые после переключения в соответствующих ядерных областях протягиваются к интернейронам спинного мозга в виде руброспинального тракта, а также средней и латеральной частей ретикулоспинального тракта. Наряду с пирамидным трактом они принимают значительное участие в управлении движениями.
4. Клинические последствия. Внутренняя капсула, через которую проходят все нисходящие пути, расположена в области снабжения средней мозговой артерии. Перфузия этой артерии представляет особую угрозу для пациентов с повышенным риском сосудистых заболеваний. Инфаркт средней мозговой артерии обычно вызывает брахиофациальный сенсомоторный гемипарез. Повреждение моторных путей выше красного ядра приводит к сгибанию верхних и разгибанию нижних конечностей (растормаживанию гравитационного рефлекса). Растормаживание встречается также у пациентов в хронической стадии после инфаркта средней мозговой артерии.
В результате ходьбу с круговыми движениями вытянутой ногой, контралатеральной повреждению мозга, называют походкой Вернике-Манна (рис. 4А).
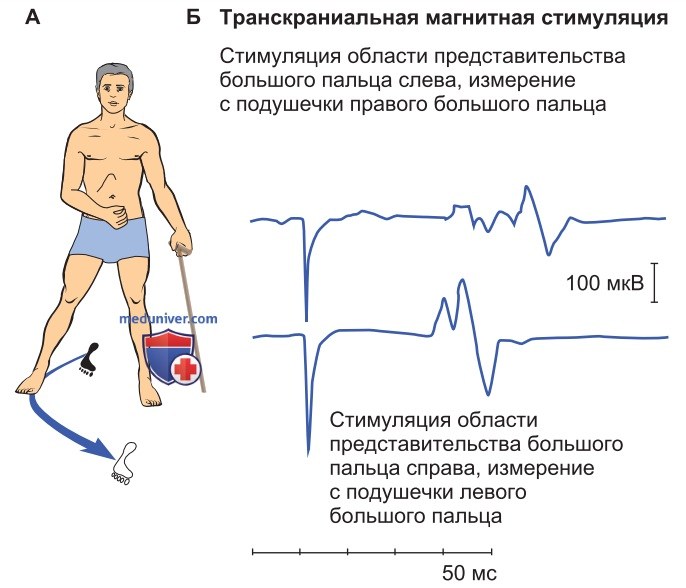
Поскольку первичная моторная кора может быть безболезненно и неинвазивно возбуждена с помощью транскраниальной магнитной стимуляции (ТМС), время задержки от потенциала действия до активации контралатеральных мышечных волокон можно измерить по латентному периоду суммарных потенциалов действия. Реакция с наименьшим латентным периодом соответствует самым быстрым путям проведения, а именно сильно миелинизированным моносинаптически связанным волокнам пирамидного тракта, которые иннервируют мышцы кисти.
Метод часто используется для диагностических целей. В частности, с его помощью можно быстро определить степень повреждения пирамидного пути. Этот метод оказался также весьма полезным для объективации восстановления функции после повреждений в моторной системе. На рис. 4 показан пациент с правосторонним гемипарезом, появившемся после обширного инфаркта средней мозговой артерии.
г) Кортикомотонейронная система мотонейронов кисти руки. Некоторые волокна пирамидного тракта с моносинаптическими переключениями на мотонейроны кисти руки обеспечивают точность захвата.
1. Точность захвата. Часть волокон пирамидного тракта, идущих из первичной моторной коры, непосредственно, т.е. моносинаптически, связаны с мотонейронами мышц кисти. Эта система развита у приматов и наиболее сильное развитие получает у человека (рис. 5А и Б). У близких к низшим приматам обезьян, таких как южноафриканские игрунки, эти связи развиваются, и они также достаточно поздно формируются в онтогенезе человека. Новорожденные дети еще не могут захватывать предметы точно, эта способность развивается у них только с формированием моносинаптических контактов между пирамидным трактом и мотонейронами.
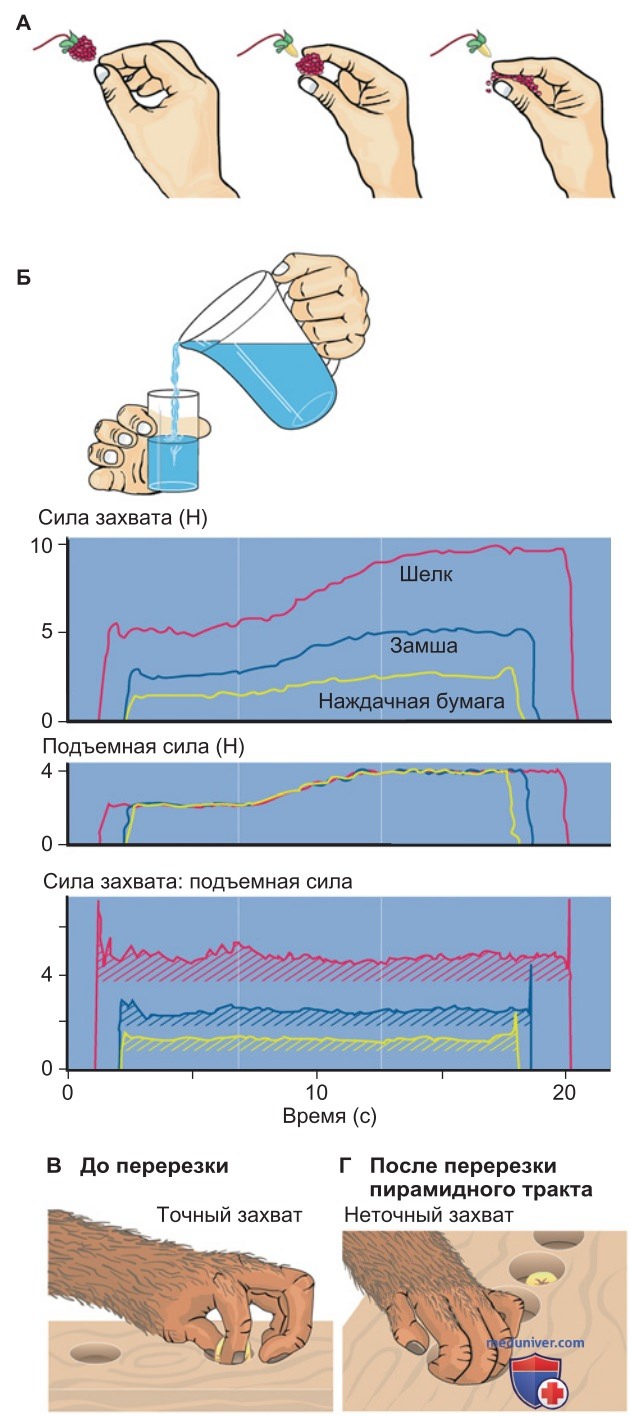
Взрослые игрунки, чей пирамидный тракт может возбудить мотонейроны только полиси-наптически, также используют не точный захват, а только общий силовой захват.
2. Последствия нарушений точного захвата. При экспериментальной перерезке пирамидного тракта у обезьяны моторное расстройство проявляется преимущественно в потере ловкости рук. На рис. 5В и Г продемонстрирована потеря способности к точному захвату: кусочки корма можно взять только с помощью массового захвата (смыкание всех пальцев) из крупных углублений кормушки. Утрата мелкой моторики, таким образом, проявляется в неспособности осуществлять независимые движения пальцами. Движения замедляются, а мобилизация силы при захвате заторможена.
д) Коротко. Функциональная организация моторных полей коры. Моторная кора имеет характерную цитоархитектонику с организацией клеток в функциональные колонки, которые представляют не мышцы, а целые движения. Различают:
• первичную моторную кору (область 4), отвечающую за точное управление движениями или стабилизацию суставов; первичная моторная кора имеет выраженную соматотопию (гомункулус);
• премоторную кору (латеральная часть области 6), отвечающую за сенсорно контролируемые движения;
• дополнительную моторную кору (медиальная часть области 6), отвечающую за движения, вызванные произвольно.
Моторная кора получает входы из теменной доли и из восходящих экстраталамических систем волокон с модулирующим влиянием норадреналина и дофамина.
Моторная кора посылает:
• кортикокортикальные волокна в сенсорные и вторичные моторные области коры; как ипси-латерально, так и контралатерально через мозолистое тело;
• нисходящие пути к ипсилатеральному стриатуму в системе базальных ганглиев и таламусу;
• нисходящие пути к мостовым ядрам и далее к мозжечку, а также к нижней оливе; обе системы можно рассматривать как структурную основу для эфферентных копий командных сигналов;
• нисходящие пути, которые после переключения в центрах ствола мозга и перехода на контралатеральную сторону вне пирамид идут к спинному мозгу;
• кортиконуклеарный путь к контралатеральным ядрам черепных нервов;
• кортикоспинальный путь (пирамидный тракт), волокна которого преимущественно переходят в пирамиде на противоположную сторону и зачастую возбуждают мотонейроны мышц-сгибателей олиго- или полисинаптически, а мотонейроны мышц-разгибателей тормозят; небольшая часть волокон пирамидного тракта действует моно-синаптически на мотонейроны и обеспечивает ловкость движений рук (кортикомотонейронный путь).
Нисходящие эфференты моторной коры часто повреждаются из-за инфаркта средней мозговой артерии, который ипсилатерально повреждает внутреннюю капсулу. В результате в хронической стадии развивается спастический гемипарез противоположной стороны тела, характеризующийся походкой Вернике- Манна.
Видео физиология движений (тонус, поза, произвольные движения) - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Готовность и начало действий в движениях - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 4.12.2024