

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Уровень pH и его поддержание за счет буферов - с точки зрения физиологии человека
Оглавление статьи:- Физиологические функции, на которые влияет pH
- Свойства буферов
- Буферы в крови
- Роль буферов в моче
- Резюме
- Список использованной литературы
Девушка потеряла сознание в приемной больницы. Дежурный врач сразу обратил внимание на глубокое дыхание пациентки. Он предположил развитие у нее ацидоза (закисление крови), который принуждает пациентку к усиленному дыханию. Причиной ацидоза является абсолютный недостаток инсулина при сахарном диабете.
Как только ингибирующее влияние инсулина на деградацию жиров прекращается, при их разрушении из жировой ткани высвобождаются триглицериды и жирные кислоты. Жирные кислоты диссоциируют (отдают в раствор Н+), увеличивая тем самым концентрацию Н+ в крови.
Подозрение врача на сахарный диабет дополнительно подтверждают обнаружением заметно повышенной концентрации глюкозы в крови, являющейся последствием сниженного поглощения глюкозы при недостатке инсулина. Введение пациентке инсулина не только понизило концентрацию глюкозы в ее крови, но и устранило ацидоз. Нормализация состава ее крови в итоге привела пациентку в чувство.
а) Физиологические функции, на которые влияет pH. Свойства белков зависят от окружающей концентрации Н+; концентрация Н+ влияет на множество совершенно различных физиологических функций.
1. Концентрации Н+ во внеклеточном и внутриклеточном пространствах. В норме значение pH крови находится в диапазоне между 7,37 и 7,43, что соответствует концентрации Н+ примерно равной 0,04 мкмоль/л. В клетках концентрация Н+ обычно несколько выше (pH 7,0-7,3).
При увеличении концентрации Н+, т. е. уменьшении pH крови до значения менее 7,37, развивается ацидоз, а при уменьшении концентрации Н+, или, иначе, увеличении pH крови до значения более 7,43, развивается алкалоз.
2. Влияние концентрации Н+ на протекание обмена веществ. Свойства ферментов, транспортных белков, рецепторов и т.д. находятся в зависимости от степени диссоциации определенных аминокислот (в первую очередь гистидина), а следовательно, от окружающего их pH. Таким образом, от рН зависит множество клеточных функций.
Среди прочих ферменты, осуществляющих гликолиз, прежде всего фосфофруктокиназы, ингибируются ростом концентрации Н+ (ацидоз) и стимулируются ее падением (алкалоз).
Алкалоз способствует интенсивному протеканию гликолиза и синтезу молочной кислоты, ингибирует глюконеогенез и ведет к накоплению цитрата. В свою очередь, ацидоз способствует разложению глюкозы через пентозофосфатный цикл. ДНК-синтаза и деление клетки (клеточная пролиферация) ингибируются внутриклеточным ацидозом. Факторы роста, активирующие Na+/Н+-обменник, увеличивают pH клетки и вместе с тем создают предпосылку для клеточной пролиферации.
3. Каналы. Многие ионные каналы в значительной степени чувствительны к pH. Так, некоторые К+-каналы открываются при алкалозе, а при ацидозе закрываются. Таким образом, алкалоз служит одним из факторов, способствующих выведению К+ по К+-каналам в эпителиях почек. Алкалоз усиливает, а ацидоз ослабляет поток Ca2+ по Са2+-каналам в клетку.
4. Концентрация Ca2+ в клетке. При увеличении концентрации ионов Н+ в цитозоле они направляются в митохондрии в обмен на Ca2+. Далее Н+ вытесняют Ca2+ из сайтов связывания в белках, вследствие чего концентрация Ca2+ в цитозоле может повыситься. Одновременно естественным образом происходит ингибирование Са2+-каналов в миокарде и скелетной мускулатуре. Во время мышечного сокращения в цитозоль поступает лишь немного дополнительного Ca2+.
5. Скелетные и сердечные мышцы, кровообращение. Ацидоз уменьшает силу сокращения миокарда, скелетной мускулатуры и остальных мышц из-за ингибирования потока Ca2+ в цитозоль. Кроме того, Н+ вытесняет Ca2+ из сайтов связывания с тропонином. Ацидоз способствует расширению сосудов (вазодилатация), а алкалоз — их сужению (вазоконстрикция). При ацидозе снижается пропускная способность щелевых контактов, вследствие чего замедляется прохождение волны возбуждения по сердечной мускулатуре.
6. Связывание O2 и Ca2+ в крови. Ацидоз уменьшает, а алкалоз увеличивает аффинность гемоглобина к кислороду. Алкалоз способствует диссоциации белков плазмы, что предоставляет возможность для лучшего связывания Ca2+. С другой стороны, при алкалозе Ca2+ образует комплексы с HCO3-. Если алкалоз возникает вследствие избытка гидрокарбоната (метаболический алкалоз; см. ниже), тогда оба эффекта складываются и активность Ca2+ в плазме сильно падает.
P.S. При усиленном выдыхании CO2 (гипервентиляции) происходит, с одной стороны, развитие алкалоза (см. ниже) и вместе с тем более интенсивное связывание Ca2+ с белками. Однако, с другой стороны, концентрация угольной кислоты в крови в то же время падает, поэтому Ca2+ оказывается связанным с ней в меньшей степени. В результате концентрация свободного Ca2+ практически не изменяется.
б) Свойства буферов. При высокой концентрации Н+ буферы способны связывать эти ионы, а при низкой концентрации — высвобождать их, ослабляя тем самым амплитуду колебания концентрации Н+.
1. Уравнение Гендерсона-Хассельбаха. Буферная система может обратимо привязывать или отдавать H+:
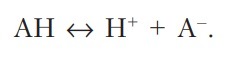
При этом АН обозначается как непродиссоциировавшая кислота, а А- как продиссоциировавший анион этой кислоты.
Число молекул АН, отдающих Н+ в единицу времени (J1), пропорционально концентрации этих молекул ([АН]):
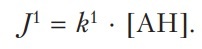
Скорость обратной реакции соединения Н+ и А- до АН (J-1) является функцией концентраций Н+ ([Н+]) и А- ([А-]):
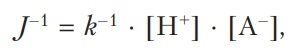
где k1 и k-1 — константы, описывающие скорость соответствующих реакций. Их значения зависят не только от [Н+], [А-] и [АН], но и от температуры и ионной силы.
При равновесии J1 = J-1 и
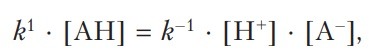
а также
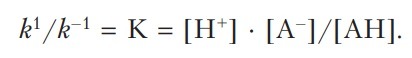
Логарифмируя это выражение:
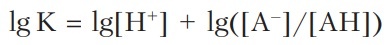
и принимая lg[Н+] = -pH, а lgK = -pK, получаем
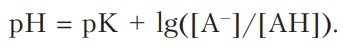
Это уравнение Гендерсона-Хассельбаха описывает связь между pH и соотношением [А-]/[АН] (рис. 1).
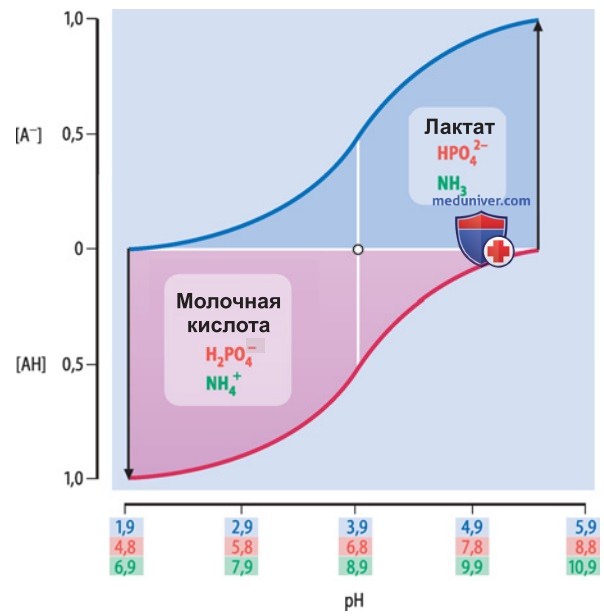
P.S. Пример расчета. Мочевая кислота имеет pK 5,8. При рН 6,8 около 91% от ее общего количества находится в диссоциированной форме ([А-]), а около 9% — в недиссоциированной форме ([АН]):
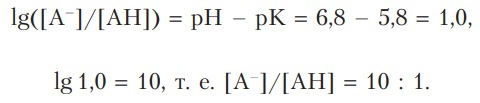
При рН 5,8 диссоциирует половина молекул кислоты, а при рН 4,8 диссоциирует всего лишь около 9%.
2. Уравнение для слабых оснований. По аналогии с уравнением Гендерсона-Хассельбаха для слабых кислот может быть выведено следующее уравнение для слабых оснований:
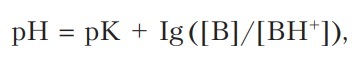
где [B] и [BH+] — концентрации свободной и связанной с H+ форм основания соответственно.
3. Буферная емкость. Буферная система уменьшает изменения концентрации H+ путем связывания H+ (при увеличении концентрации H+) или высвобождения H+ (при уменьшении концентрации H+). Степень того, насколько данный буфер способен компенсировать изменения концентрации Н+, характеризует буферная емкость (Kp):
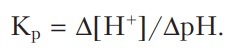
Буферная емкость тем больше, чем выше концентрация буфера. Кроме того, емкость буфера уменьшается при удалении друг от друга значений рН и рК.
P.S. Пример расчета. Молочная кислота имеет pK 3,9 (рис. 1). Если смешать 9 ммоль/л соли молочной кислоты ([Lac-]) и 9 ммоль/л молочной кислоты ([LacH]), то pH установится на том же значении 3,9:
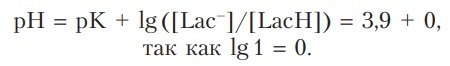
Если затем к этому раствору добавить 3 ммоль/л NaOH (тем самым понизив концентрацию свободных Н+ на 3 ммоль/л), то 3 ммоль/л молочной кислоты начнут отдавать Н+ и диссоциируют до лактата. Концентрация лактата вырастет до 12 ммоль/л, а концентрация молочной кислоты опустится до 6 ммоль/л. Значение pH вследствие этого увеличится:
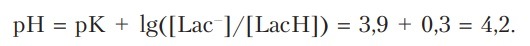
Повышение pH с 3,9 до 4,2 требует добавления 3 ммоль/л NaOH; буферная емкость будет равнятся, следовательно, 3 ммоль/л/0,3 pH = 10 ммоль/л за единицу pH.
Если же к раствору добавить еще 3 ммоль/л NaOH, концентрация лактата вырастет до 15 ммоль/л, а концентрация мочевой кислоты опустится до 3 ммоль/л. Значение pH снова увеличится:
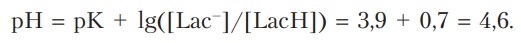
При повторном добавлении NaOH буферная емкость составила 3 ммоль/л / 0,7 pH = 4,285 ммоль/л за единицу pH.
в) Буферы в крови. Половину основных буферных систем крови обеспечивают белки; однако самым эффективным буфером крови является H2CO3/HCO3--система, так как она может регулироваться.
1. Белки. Половина основных буферных систем крови (чья концентрация в норме составляет около 48 ммоль/л) приходится на белки. В области нормальных для крови значений pH белки могут связывать Н+, главным образом, присоединяя его к гистидину. Также в норме при уменьшении pH крови примерно на единицу 5 ммоль/л Н+ связывают белки плазмы (прежде всего альбумин), а 16 ммоль/л — Н+-гемоглобин.
Дезоксигемоглобин имеет несколько более низкую кислотность, чем оксигемоглобин и связывает поэтому при том же значении pH больше ионов Н+.
2. H2CO3/HCO3--система. Еще более эффективно, чем белки, работает H2CO3/HCO3--система (pK 3,3). Система H2CO3/HCO3- — относится к открытым буферным системам: CO2 постоянно образуется в ходе метаболизма и выдыхается через легкие.
В то же время HCO3- может синтезироваться или разлагаться в почках совместно с печенью (см. ниже). В присутствии фермента карбоангидразы соотношение H2CO3 и CO2 находится в состоянии равновесия:
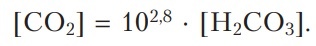
В этом случае уравнение Гендерсона-Хассельбаха может быть переформулировано следующим образом:
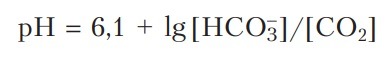
или, если вместо концентрации CO2 подставить его парциальное давление:
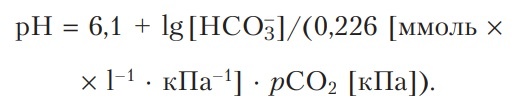
P.S. Пример расчета. При концентрации угольной кислоты ([HCO3-]) 24 ммоль/л и pCO2 5,3 кПа (40 мм рт. ст.) pH составляет 7,4 (6,1 + lg20).
3. Другие буферы. Белки и система CO2/HCO3- — это две наиболее важные буферные системы крови. Концентрация других буферов, таких как фосфат и тем более органические кислоты, слишком незначительна, для того чтобы вносить существенный вклад в буферную емкость крови.
4. Суммарная концентрация буферных систем в крови. Если через легкие выдыхается меньше CO2, чем его производится в ходе обмена веществ, то концентрация CO2 или углекислоты в крови растет. Углекислота диссоциирует до HCO3- и Н+, высвобождающиеся протоны связываются. На каждый ммоль/л HCO3-, возникающий этим способом, 1 ммоль/л буферной систем белков убавляется.
Общая концентрация буферных систем крови остается, таким образом, при измерениях концентрации CO2 постоянной. При независящих от CO2 изменениях концентрации HCO3-, например в случае потерь его через почки, соответствующим образом изменяется и суммарная концентрация буферных систем.
г) Роль буферов в моче. Даже при кислом pH мочи почки могут выводить необходимые количества Н+, лишь связанные с буфером; к самым важным буферным системам относятся система NH3/NH4+ (нетитруемая кислая) и система HPO42-/H2PO4- (титруемая кислая).
1. Выведение протонов почками. При деградации аминокислот, прежде всего их серосодержащих групп, до сульфата ежедневно в норме образуется до 100 ммоль Н+, которые необходимо выделить через почки. Однако даже если pH мочи падает до 4,5, концентрация Н+ в свободном виде не превышает 30 мкмоль/л. Поэтому почка может выводить Н+ только при помощи буферов. Особое значение имеют две буферные системы:
- NH3/NH4+-система, на которую обычно приходится примерно 60% от ежедневно выделяемого количества Н+;
- HPO42-/H2PO4--система, вклад которой в выделение Н+ составляет 30%.
Небольшая часть Н+ выводится в связанном с мочевой кислотой (pK 5,8) виде.
2. NH3/NH4+-буфер. NH3 образуется при ацидозе в проксимальных канальцах почек из глютамина (реакция катализируется глутаминазой) и выделяется в виде NH4+. Тем самым почки выводят как Н+, так и азот. NH3 является слабым основанием с pK 9, при pH крови 7,4 отношение NH4+/NH3 составляет приблизительно 40:1.
В общем случае клеточные мембраны хорошо проницаемы для NH3, в то время как NH4+ способен проходить сквозь клеточные мембраны только при помощи транспортных систем (например, Na+,K+,2Cl--котранспортера). NH3 диффундирует в имеющий кислую реакцию просвет извитых канальцев и, связавшись там с Н+ и превратившись в NH4+, уже не способен вернуться обратно.
В толстой части петли Генле NH4+ частично поглощается благодаря Na+,K+,2Cl--котранспортеру, в результате чего он накапливается в мозговом веществе почек. Диффузия NH3 в имеющий кислую реакцию просвет собирательных трубочек и образование там NH4+ позволяет эффективно выводить NH4+.
3. NH4+ как нетитруемая кислота. С каждой выделенной молекулой NH4+ устраняется 1 Н+. При титровании кислой мочи с NaOH до нейтрального значения pH 7,0 Н+ остается связанным в виде NH4+ (pK 9). На этом основании NH4+ называется нетитруемой кислотой в моче.
4. Регулирование выделения NH3/NH4+. Образование NH3 в проксимальных канальцах в значительной степени зависит от общего кислотно-основного баланса: ацидоз стимулирует, а алкалоз ингибирует глутаминазу в почках.
Продолжительное образование NH3 при алкалозе токсично для организма, секретируется относительно немного Н+, просвет канальцев имеет щелочную реакцию, вследствие чего меньше NH3 превращается в NH4+ в просвете канальцев и соответственно меньше NH4+ выделяется. В проксимальных канальцах образующийся NH3 отчасти не выделяется, а переходит в кровь. Как NH3, так и NH3 уже в очень незначительных концентрациях оказывают токсичное воздействие на организм (прежде всего на нервную систему).
5. Фосфатная буферная система. Фосфат — трехосновная кислота, которая в зависимости от преобладающего pH среды может находится в полностью диссоциированном, частично или вовсе не диссоциированном состоянии:
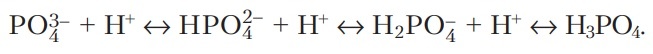
Величина pK соответствующих реакций равняется соответственно 2,0, 6,8 и 12,3. При нормальном pH крови (pH 7,4) 80% от всего количества фосфата находится в форме HPO42-, а 20% — в форме H2PO4-. Формы PO43- или H3PO4 составляют менее 1%. При закислении мочи H3PO4 связывает Н+ и реагирует, таким образом, как H2PO4-.
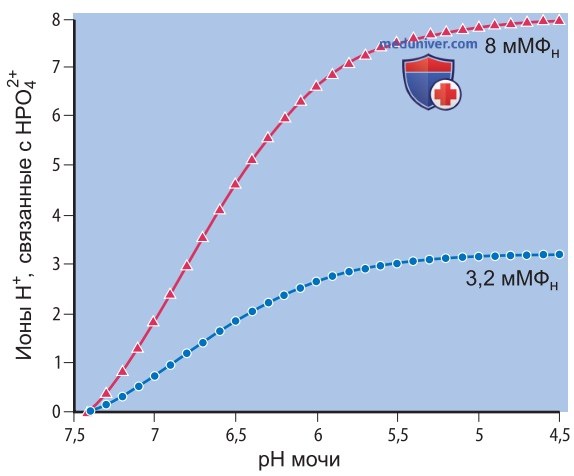
При pH мочи 7,4 ионы Н+ дополнительно не связываются с фосфатом, при pH 5,8 примерно 91% от общего количества фосфата находится в форме H2PO4- и примерно 9% — в форме HPO42-. При переходе фосфата из крови, имеющей pH 7,4, в мочу (pH 5,8), примерно 70% от его выделяемого количества связывается с Н+. Таким образом, на то, какое количество Н+ будет выведено с фосфатом, влияет не только количество самого фосфата, но и pH мочи (рис. 2).
6. Фосфат как титруемая кислота. При титровании кислой мочи с NaOH до pH 7 H2PO4- отдает ионы Н+. Следовательно, фосфат, в противоположность NH4+, является титруемой кислотой в моче.
7. Двойная эффективность фосфата из костей. Нередко используемый почками для выделения фосфат мобилизуется из костей, где он откладывается в виде соли своей наиболее диссоциированной формы (как PO43-). Поэтому уже только на мобилизацию фосфата из костей и перевод его в форму HPO42- расходуется Н+.
1. Значение pH. Концентрация Н+ влияет на:
• обмен веществ (прежде всего на гликолиз);
• ионные каналы (прежде всего K+- и Ca2+-каналов);
• концентрацию Ca2+ в цитозоле и межклеточном пространстве;
• протекание мышечного сокращения (особенно в сердце);
• распространение возбуждения в сердце;
• сопротивление сосудов;
• аффинность гемоглобина к O2.
2. Поддержание буферами значения pH. Изменения в концентрации Н+ сглаживаются буферными системами. Самыми важными буферными системами в крови являются:
• белки, в частности гемоглобин;
• CO2/HCO3--система, которая особенно эффективна ввиду того, что представляет собой открытую систему. Наиболее важными буферами в моче являются NH3/NH4+ и фосфат.
Видео урок по анализу КЩС в норме и его расшифровка
- Рекомендуем ознакомиться далее "Регулирование pH - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 18.7.2025