

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Регулирование pH - с точки зрения физиологии человека
Оглавление статьи:- Регулирование pH в клетке
- Согласованная работа легких и почек при регулировании уровня pH в крови
- Согласованная работа печени и почек при регулировании общего кислотного обмена
- Образование Н+ и CO2 в ходе обмена веществ
- Желудочно-кишечный тракт
- Кости
- Воздействие электролитов на кислотно-основный баланс
- Резюме
- Список использованной литературы
а) Регулирование pH в клетке. В клетках имеется несколько транспортных систем, для того чтобы поддерживать pH цитозоля постоянным.
1. Процессы транспорта Н+ в клетках. Несмотря на происходящие изменения pH в межклеточном пространстве, показатель pH в клетке демонстрирует удивительное постоянство, располагаясь, как правило, вблизи 7,1. В количественном отношении наиболее важным транспортером Н+ является Na+/H+-обменник в клеточной мембране (рис. 1). Движущей силой для него служит градиент Na+. При величине градиента Na+ 1 : 10 (снаружи 150, внутри 15 ммоль/л) он способен поддерживать внутриклеточный pH на значении 7,1, в случае если внеклеточный pH опускается до 6,1.
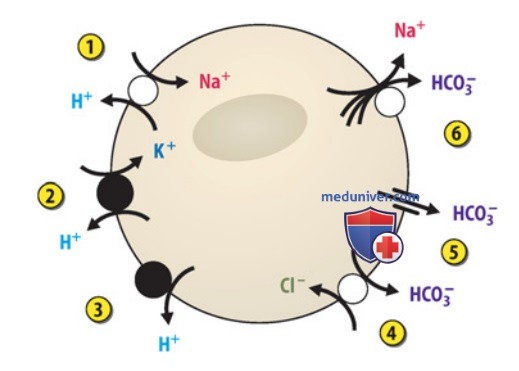
Еще более резкие градиенты pH способны создавать расходующие АТФ Н+-АТФаза и Н+/К+-АТ-Фаза. Везде, где необходимо накачивать Н+ во внеклеточное пространство для создания там кислой среды, например в желудке или в дистальных канальцах и собирательных трубочках почки, они всегда играют важную роль. Na+/H+-ионный обменник и Н+-АТФазы используются также для закисления внутриклеточных везикул.
2. Транспорт двууглекислой кислоты. Так как CO2 может хорошо проходить сквозь клеточную мембрану и клетка переводит CO2 в форму HCO3-, потеря клеткой HCO3- ведет к закислению внутриклеточного пространства. Двууглекислая кислота может теряться клеткой через HCO3-/Cl--ионный обменник, анионные каналы и через котранспорт с Na+. В частности, симпорт с Na+ служит для поддержания электрохимического равновесия и поэтому может направлять двууглекислую кислоту обратно в клетку.
б) Согласованная работа легких и почек при регулировании уровня pH в крови. Через легкие выдыхается CO2; почки способны выводить HCO3- или образовывать HCO3- из H2CO3 и выводить возникающий при этом Н+; оба органа одинаково важны для поддержания нормального pH крови.
1. Кооперация легких и почек. Легкие и почки выполняют комплементарные функции при регулировании кислотно-основного баланса. Легкие влияют на pH ввиду того, что через них выдыхается CO2, а почки регулируют кислотно-основный баланс посредством выведения Н+ или HCO3-.
2. Регуляция через выдыхание CO2. Если выведение Н+ почками не успевает за темпами возникновения Н+ в ходе метаболизма, в легких должно выдыхаться больше CO2, для того чтобы предотвратить рост концентрации Н+:
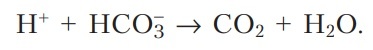
Выдыхаемое ежедневно количество CO2 находится обычно в пределах 15 моль, что многократно превосходит выделяемые через почки количества Н+ (обычно до 100 ммоль; см. выше).
3. Необходимость выведения Н+ через почки. Если объемы выделяемого почками Н+ оказываются сниженными в течение длительного срока, легкие уже не могут этого компенсировать: при устранении свободного Н+ путем выдыхания CO2 расходуется HCO3-, потому его концентрация в крови уменьшается. Значение pH крови при этом напрямую зависит от величины отношения [HCO3-]/[CO2].
В результате, для того чтобы сохранять рН постоянным, при уменьшении концентрации HCO3- концентрация CO2 в крови также должна опускаться. Легкие должны еще долго выдыхать его в больших количествах, до тех пор пока концентрация HCO3- не будет скорректирована уже почками.
P.S. Пример. Если у пациента отказывают почки, они оказываются совершенно не способными выводить Н+, хотя до 100 ммоль/л Н+ продолжает ежедневно образовываться в процессе метаболизма. Как внутриклеточный, так и внеклеточный pH должны оставаться постоянными, и весь избыточный Н+ (100 ммоль) реагирует с внеклеточным HCO3- до CO2, который должен затем выдыхаться.
Таким путем ежедневно образуется дополнительно еще 0,1 моль CO2, что, впрочем, не столь существенно на фоне 15 моль CO2, выдыхаемых всегда в норме, и требует повышения интенсивности вентиляции менее чем на 1%.
В ходе реакции H+ с HCO3- тем не менее внеклеточная концентрация HCO3- в то же время опускается примерно на 5 ммоль/л, и, с учетом того, что общий объем внеклеточного пространства составляет около 20 л (примерно 100 ммоль/20 л), в общей сложности она становится меньше приблизительно на 20%. Чтобы сохранять pH постоянным, концентрация CO2 аналогичным образом должна опускаться минимум на 20% (если последующее уменьшение количества HCO3- пренебрежимо мало).
Выдыхаемое легкими количество CO2 (MCO2) напрямую зависит от концентрации CO2 в альвеолах, а она, в свою очередь, равняется концентрации CO2 в артериальной крови ([CO2]a): MCO2 = Va * [CO2]a, где Va обозначает интенсивность вентиляции альвеол. При понижении [CO2] на 20% величина Va должна повышаться на 25% для того, чтобы количество выдыхаемого CO2 (15 моль/день) оставалось прежним.
Это означает, что дыхание в легких для сохранения рН крови постоянным при избытке концентрации Н+ в 100 ммоль/л должно протекать в самом деле по меньшей мере на 25% интенсивнее. Легкие должны находиться в состоянии гипервентиляции так долго, как это может потребоваться для того, чтобы почки успели адаптироваться и концентрация HCO3- в крови вновь была нормализована. Если почки так и не начинают выводить достаточное количество H+ (например, в случае их отказа), легкие оказываются способными лишь замедлить, но не предотвратить развитие ацидоза.
в) Согласованная работа печени и почек при регулировании общего кислотного обмена. В случае ацидоза печень отдает глутамин, из которого в почках образуется NH4+, затем NH4+ выводится из организма; в случае алкалоза в печени образуется мочевина и выведения NH4+ не требуется.
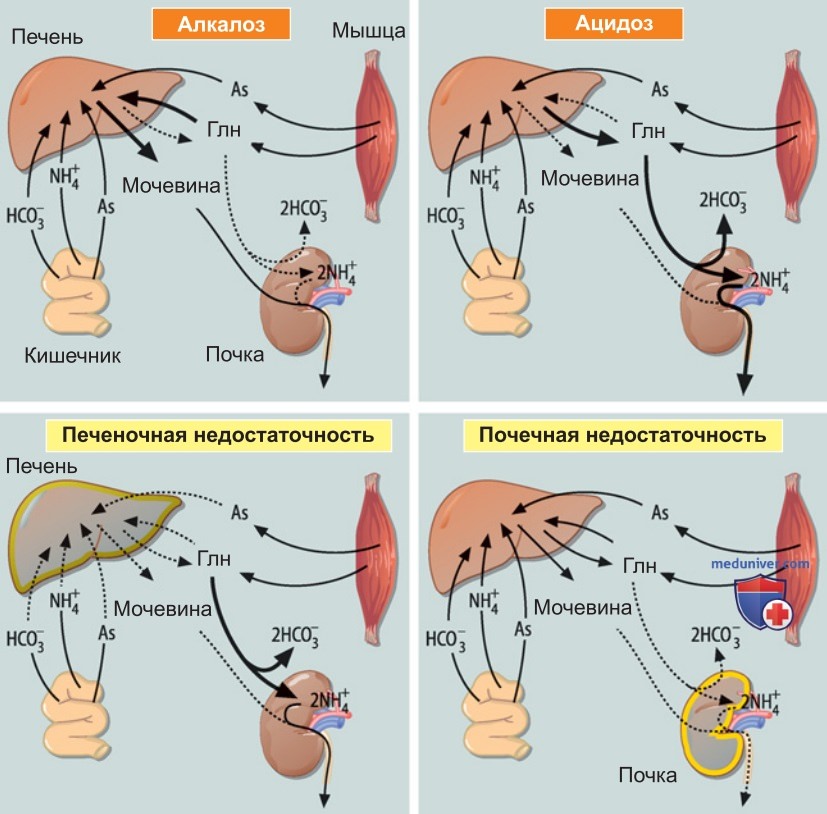
1. Обмен глутамина. В норме до двух третей от всего выделяемого количества Н+ в почках выводится ими в форме NH4+. Достаточное количество NH3 может синтезироваться только в том случае, если почки обеспечиваются притоком глутамина. Концентрация глутамина в крови зависит от метаболизма глутамина в печени (рис. 2): в норме печень расходует глутамин для синтеза мочевины, при этом формально в уравнении записываются 2NH4+ и 2HCO3-:
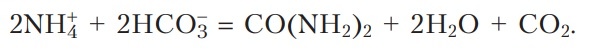
NH4+ образуется благодаря работе глутаминаз в перипортальных клетках печени. Перивенозные клетки печени, напротив, способны поглощать NH4+ и посредством глутаминсинтаз преобразовывать его в глутамин.
2. Регулирование метаболизма глутамина. При алкалозе в печени преобладает активность глутаминаз и потребление глутамина. При ацидозе активность глутаминаз подавляется и преобладает чистая продукция глутамина. Поэтому при ацидозе почки располагают большим количеством глутамина для синтеза NH4+ и его дальнейшего выведения.
В противоположность глутаминазам в печени почечные глутаминазы ацидозом стимулируются. В почках, в отличие от печени, образующийся NH4+ выделяется, а HCO3- не расходуется на синтез мочевины. Образующийся при разложении глутамина HCO3-, таким образом, остается в организме.
При алкалозе NH4+ из глутамина расходуется совместно с HCO3- для синтеза мочевины и с мочевиной выводится не только NH4+, но и HCO3-.
г) Образование Н+ и CO2 в ходе обмена веществ. В ходе обмена веществ непрерывно образуется CO2, который необходимо выдыхать через легкие и Н+, который требуется выводить через почки.
1. Образование CO2 и его выдыхание. В ходе обмена веществ при окислительном разложении различных субстратов ежедневно образуется примерно 15 моль CO2. Здоровые легкие способны удалять и большие количества CO2. Поэтому повышенное образование CO2 в клетках не приводит, как правило, к росту концентрации CO2 в артериальной крови.
2. Фиксированные кислоты. В дополнение к CO2 (или H2CO3) в процессе метаболизма возникают кислоты, которые не могут быть удалены через легкие (фиксированные кислоты), и в таком случае необходимо выделять Н+ через почки. Подавляющая часть фиксированных кислот возникает при разложении серосодержащих аминокислот: SH-группы окисляются до SO42- и 2Н+. К другим фиксированным кислотам относится лактат, возникающий при анаэробном гликолизе, а также жирные кислоты, которые высвобождаются из триглицеридов (рис. 3).
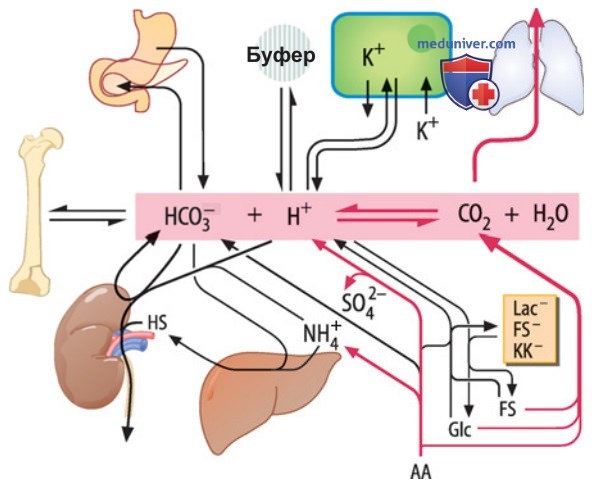
Жирные кислоты могут превращаться в ацетоацетат и β-гидроксибутират, а затем диссоциировать и сильно закислять pH крови. За исключением SO42-, все упомянутые кислоты могут быть опять метаболизированы, причем высвобожденный Н+ при этом поглощается обратно.
д) Желудочно-кишечный тракт. Секреция Н+ в желудке сопровождается образованием HCO3-; эпителий поджелудочной железы и эпителий кишки секретируют жидкости, богатые HCO3-.
1. Секреция H+ в желудке. В желудке при секреции H+ в париетальных клетках возникает CO2, а также H2CO3, при этом HCO3- накапливается и поступает в кровь (рис. 3). Из-за образования двууглекислой кислоты во время секреции кислого сока в желудке возникает постпрандиальный алкалоз, или «прилив щелочи» (alkaline tide).
2. Секреция в кишечнике и поджелудочной железе. Проникновение кислого сока желудка в двенадцатиперстную кишку стимулирует поджелудочную железу секретировать сок, богатый HCO3-, вследствие чего реакция просвета кишки снова становится нейтральной и, помимо этого, тратится образовавшийся при секреции H+ в желудке HCO3- (рис. 2).
При рвоте кислый желудочный сок избегает нейтрализации в двенадцатиперстной кишке и из-за этого в организме возникает избыток HCO3-, иными словами, развивается метаболический алкалоз. С другой стороны, панкреатический свищ и диарея могут приводить к развитию ацидоза.
е) Кости. Соли, слагающие кости, являются сильно щелочными; при минерализации костей Н+ потребляется, а при мобилизации солей из кости Н+ расходуется.
1. Воздействие текущего состояния кислотно-основного баланса на минерализацию костей. Карбонат и щелочная соль фосфата плохо растворимы в воде и потому используются организмом для минерализации костей. Ацидоз способствует растворению минералов кости, а алкалоз способствует минерализации костей (рис. 3).
2. Воздействие степени минерализации костей на кислотно-основный баланс. Для минерализации костей, напротив, необходимо образование сильно щелочного фосфата или карбоната, т. е. при минерализации костей Н+ поступает в кровь, а при растворении щелочных минералов костей Н+ расходуется. Ca2+ усиливает минерализацию костей, и приток CaCl2 может провоцировать ацидоз.
ж) Воздействие электролитов на кислотно-основный баланс. Как внеклеточная, так и внутриклеточная концентрация Н+ подвержена влиянию электролитов, прежде всего калия, а также натрия и кальция.
1. Поваренная соль. Клеточный транспорт HCO3- и Н+, в том числе в почках, зависит от транспорта Na+. При избытке NaCl почки должны увеличить объемы его выведения. Если реабсорбция Na+ в проксимальных канальцах ингибируется, это влияет и на тесно связанную с ней реабсорбцию HCO3- в тех же проксимальных канальцах. Поэтому инфузия раствора поваренной соли может привести к бикарбонатурии, а следовательно, к ацидозу.
И наоборот, если в случае недостатка NaCl или увеличения объема межклеточной жидкости почки вынуждены увеличивать реабсорбцию Na+ и не справляются с этим, расходуются значительные количества HCO3-.
P.S. Алкалоз, связанный с истощением объема жидкости:
- Физиологические причины патологии. Для выведения через почки значительного количества HCO3- требуется подавление реабсорбции HCO3- в проксимальных канальцах посредством ингибирования Na+/Н+-ионного обменника. При этом, очевидно, происходит потеря не только HCO3-, но и ионов Na+. При недостатке объема жидкости и недостатке поваренной соли почки вынуждены увеличивать реабсорбцию Na+ в проксимальных канальцах, например стимулируя Na+/Н+-ионный обменник ангиотензином II.
Вместе с тем в почках увеличивается и реабсорбция HCO3-, что препятствует коррекции алкалоза за счет бикарбонатурии. Подобное истощение объема жидкости, препятствующее коррекции алкалоза, возникает после рвоты кислым желудочным соком и приеме петлевых диуретиков, которые ведут к недостатку объема жидкости из-за подавления реабсорбция NaCl в петле Генле.
- Терапия. При поступлении в организм достаточного объема изотонического раствора поваренной соли (например, путем инфузии) может быть достигнута бикарбонатурия и истощение объема жидкости исчезает.
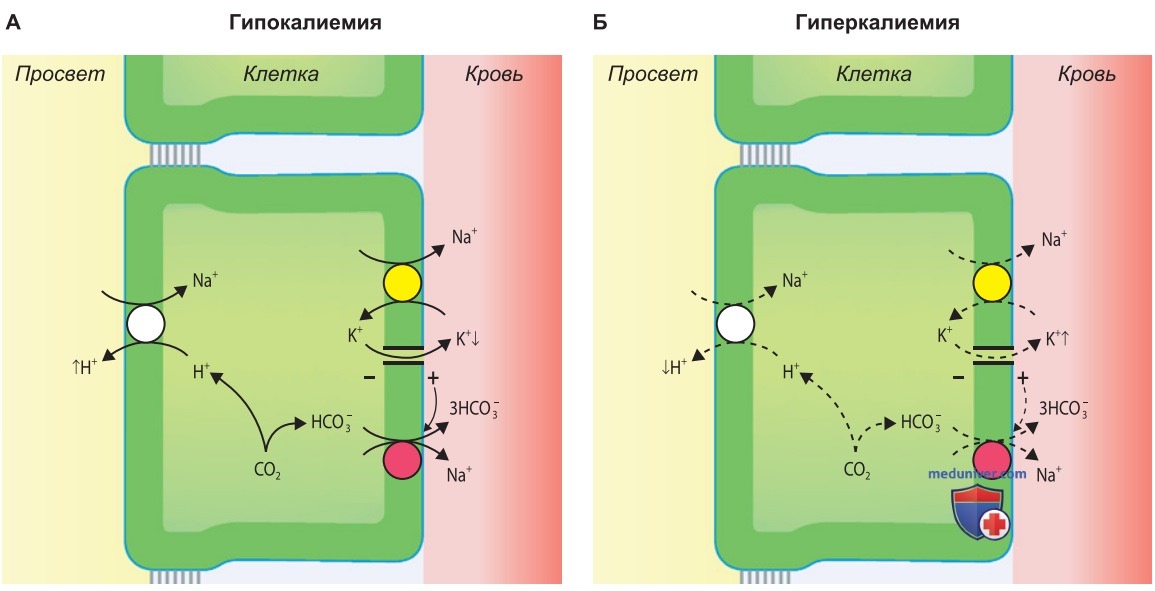
2. Калий. Кислотно-основный баланс K+ имеет еще более важное значение: потенциал на клеточных мембранах почти всех клеток поддерживается за счет работы K+-каналов. Прирост внеклеточной концентрации K+ уменьшает химический градиент K+ и приводит к деполяризации мембраны. Падение внеклеточной концентрации K+, наоборот, приводит скорее к гиперполяризации клеток. Потенциал на клеточной мембране в этом случае начинает создаваться за счет выведения отрицательно заряженного HCO3- из клетки.
Таким образом, гиперкалиемия в проксимальных канальцах посредством деполяризации мембран и ослабленного базолатерального потока HCO3- приводит к внутриклеточному защелачиванию, а Na+/H+-обменник в люменальной клеточной мембране и вместе с тем секреция Н+ в проксимальных канальцах при этом тормозятся. Следствием пониженной секреции Н+ в почках является (внеклеточный) ацидоз. Гипокалиемия, наоборот, за счет несколько повышенного выведения Н+ почками ведет к внеклеточному алкалозу (рис. 4).
3. Кальций. Минерализация требует поступления кальция в кости (см. выше), что способствует развитию ацидоза.
з) Резюме. Регулирование pH крови:
1. Регулирование кислотно-основного баланса основывается на кооперации:
• легких, через которые выдыхается CO2;
• почек, по мере необходимости выводящих Н+ или HCO3-;
• печени, которая либо использует глутамин для синтеза мочевины, либо направляет его в почки для синтеза из него NH4+.
2. Факторы, влияющие на кислотно-основный баланс
• образование CO2 и Н+ в ходе обмена веществ;
• секреция Н+ в желудке;
• секреция HCO3- в поджелудочной железе и кишечнике;
• поглощение HCO3- при минерализации костей, в частности для связывания с Ca2+;
• выход Н+ из клеток при росте внеклеточной концентрации калия;
• потери HCO3- через почки при избытке поваренной соли в организме.
Видео урок по анализу КЩС в норме и его расшифровка
- Вернуться в раздел "Физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 18.7.2025