

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Проводящая система сердца - с точки зрения физиологии человека
Оглавление статьи:- Структуры
- Межклеточные контакты
- Иннервация
- Иерархия возникновения возбуждения
- Возбуждение клеток водителя ритма
- Нервная регуляция возбуждения и проведения
- Потенциал действия
- Резюме
- Список использованной литературы
а) Структуры. Группы специальных мышечных клеток в правом предсердии и желудочках формируют структуры для генерирования возбуждения и его распространения.
1. Клеточная структура. Миокард предсердий и желудочков сердца ритмично сокращается. Сокращения можно наблюдать и в том случае, если сердце полностью денервировано, например при его трансплантации после удаления у донора.
Ритмичность сокращений основывается на том, что спонтанно активные клетки-водители ритма, или пейсмекеры, обеспечивают сердцу упорядоченный режим сокращения. Нервные и гуморальные воздействия могут модулировать автономную активность этой кардиостимуляторной системы.
Клетки, формирующие систему генерации возбуждения и его распространения, относятся к числу специальных мышечных клеток — проводящих, и их можно отличить от рабочих кардиомиоцитов, обеспечивающих развитие усилия миокардом.
Особенно мало сократительных элементов обнаруживается в водителях ритма синусового (синоатриального) и атриовентрикулярного узлов. Клетки проводящей системы миокарда в желудочках характеризуются значительно меньшим количеством Т-трубочек, сократительных филаментов и митохондрий по сравнению с рабочими кардиомиоцитами, но содержат много гликогена и ферментов анаэробного энергетического обмена.
Клетки проводящей системы в желудочках крупнее и больше по объему, чем рабочие кардиомиоциты, что способствует быстрому проведению возбуждения в этих структурах.
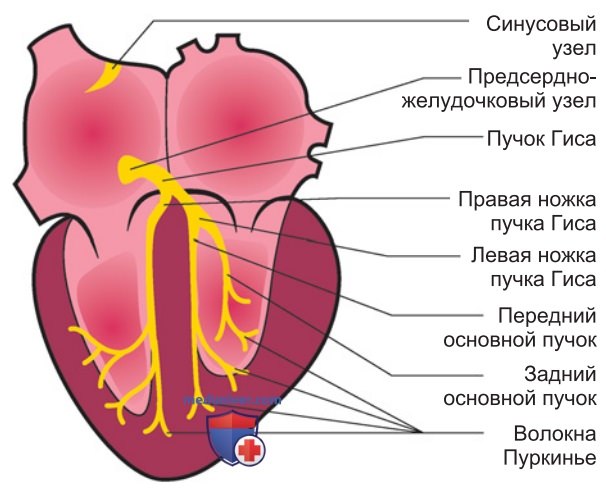
2. Предсердия. Синусовый узел (nodus sinuatrialis) состоит из нескольких сотен клеток и расположен на внутренней стороне задней стенки правого предсердия (рис. 1). Генерирующееся в нем возбуждение (ПД) распространяется по миокарду предсердия, откуда достигает атриовентрикулярного узла (АВ-узел, nodus atrioventricularis, узел Ашоффа-Тавары), расположенного с правой стороны межпредсердной перегородки на границе предсердия и желудочка.
Соединительнотканные структуры в плоскости клапана не проводят возбуждение от предсердий дальше, поскольку соединительная ткань не может генерировать и распространять ПД, т. е. функционально плоскость клапанов представляет собой электрический изолятор.
3. Желудочки. Из АВ-узла исходит тонкий пучок специальных мышечных клеток, пучок Гиса (truncus fascicule atrioventricularis), который проходит через соединительнотканный барьер на уровне клапанов и проводит возбуждение от АВ-узла в желудочки сердца.
Он проходит в межжелудочковой перегородке сначала с правой стороны по направлению к верхушке сердца и вскоре разветвляется на правую и левую ножки — ножку желудочка, ножку Тавара (crus dextrum, crus sinistrum). Левая ножка пучка Гиса разделяется на передний и задний основной пучки.
Концы ответвлений пучка Гиса переходят в волокна Пуркинье. Через них возбуждение распределяется во внутреннем слое миокарда желудочков. В желудочках возбуждение передается рабочим кардиомиоцитам. Папиллярные мышцы первыми достигаются волокнами Пуркинье и поэтому сокращаются раньше, чем остальной желудочковый миокард. Створчатые клапаны в начале систолы закрываются, предотвращая обратный заброс крови в предсердия.
б) Межклеточные контакты. Клетки проводящей системы и рабочего миокарда связаны друг с другом через щелевые контакты.
1. Коннексоны. Число и функции щелевых контактов между клетками проводящей системы и рабочим миокардом в значительной степени определяют распространение электрического возбуждения. Важнейшими структурными элементами щелевых контактов являются коннексоны — канальцы, соединяющие клетки и состоящие из трансмембранных комплексов белков (коннексинов) двух соседних клеток.
Коннексоны характеризуются высокой электрической проводимостью и служат для электрической связи соседних клеток между собой.
2. Роль щелевых контактов. Большое число щелевых контактов между кардиомиоцитами способствуют быстрой передаче возбуждения от одной клетки всем остальным. Миокард представляет собой функциональный синцитий. В проводящей системе сердца человека экспрессируются гены коннексинов Сх40 и Сх43, в рабочем миокарде желудочков — преимущественно Сх43 и Сх45, в предсердиях встречаются все три коннексина.
Клетки проводящей системы связаны друг с другом большим количеством щелевых контактов, чем с окружающим их рабочим миокардом. Исключение составляют клетки волокон Пуркинье, которые непосредственно передают возбуждение кардиомиоцитам. Скорость распространения возбуждения определяется плотностью щелевых контактов внутри структур.
Ножки пучка Гиса и волокна Пуркинье служат «беговыми дорожками» для распространения возбуждения. Между их клетками существует особенно много щелевых контактов.
в) Иннервация. Сердце иннервируется парасимпатическим блуждающим и симпатическими нервами; симпатическая иннервация усиливает сердечную функцию на уровне предсердий и желудочков (увеличение частоты и силы сокращений), иннервация через блуждающий нерв антагонизирует симпатические эффекты в предсердиях (снижает частоту сокращений).
1. Анатомия. Сердце иннервируется симпатическими и парасимпатическими элементами автономной нервной системы (рис. 2). Тела преганглионарных симпатических нейронов расположены в 2-4 грудных сегментах (Th2-Th4) спинного мозга. Тела вторых эфферентных нейронов находятся большей частью в ганглиях симпатического ствола, от которого в виде пучков нервов сердца (nervi cardiaci) они проходят к сердечному сплетению.
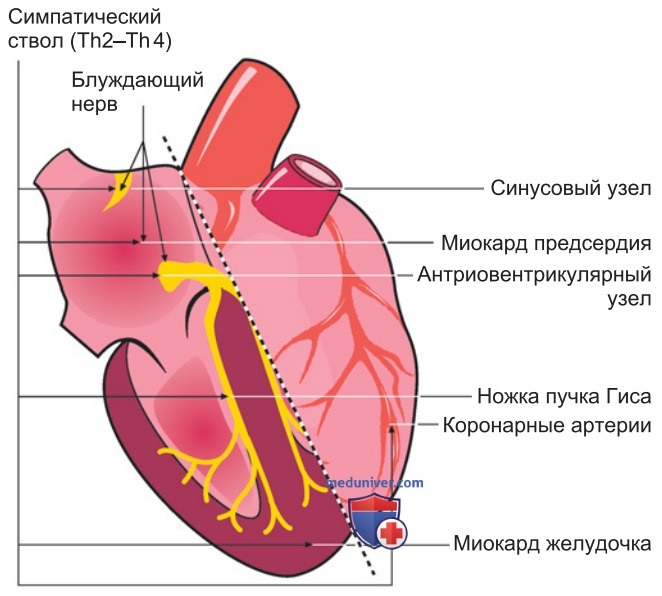
Эти постганглионарные волокна достигают всех подструктур сердца и его сосудов. В основном симпатическими волокнами иннервируются синусовый и атриовентрикулярный узлы, а также проводящая система желудочков, рабочий миокард желудочков и предсердий и коронарная система.
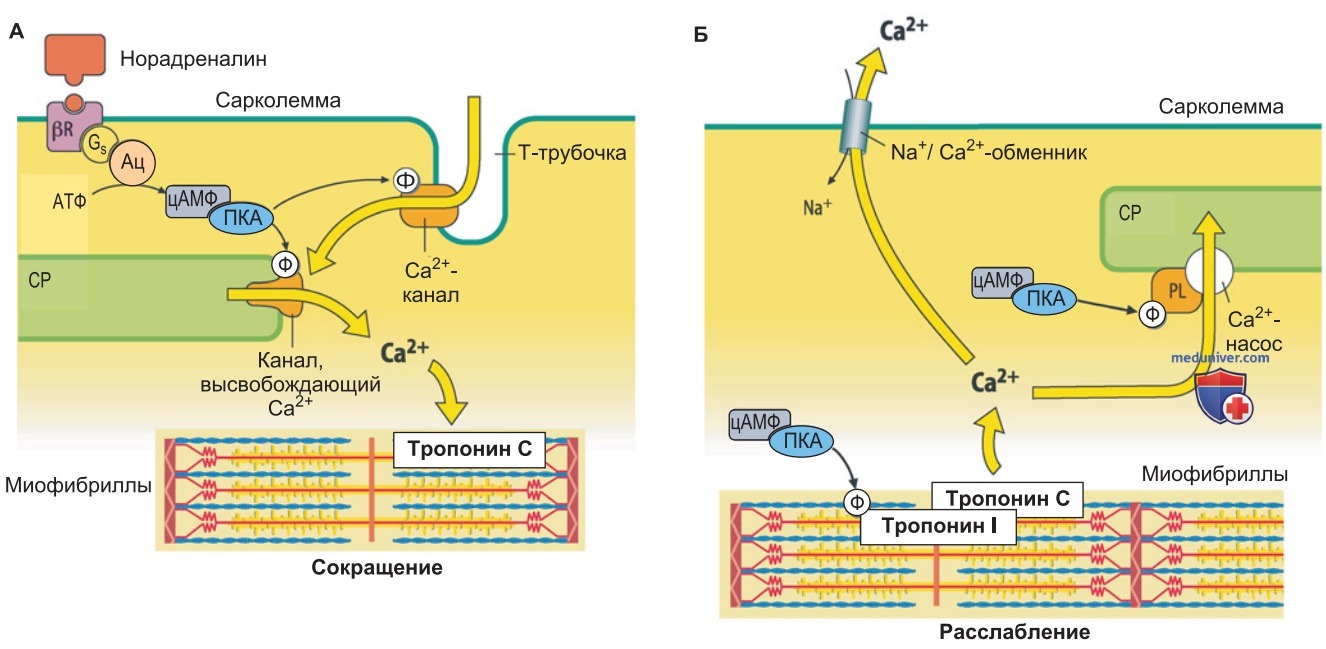
2. Медиаторы. Из утолщений аксонов, или варикозов (рис. ниже), постганглионарные симпатические нейроны высвобождают медиаторы. Важнейшим медиатором является норадреналин. Сердце также иннервируется парасимпатическими волокнами блуждающего нерва (nervus vagus). Вагусные волокна первого эфферентного нейрона сердечных ветвей выходят из дорсального ядра блуждающего нерва в продолговатом мозге.
Большинство парасимпатических волокон идет к синусовому и атриовентрикулярному узлам, а также к миокарду предсердий. Важнейшим медиатором постганглионарного нейрона служит ацетилхолин (рис. 2).
3. Функциональные эффекты. Симпатическая нервная система оказывает влияние на различные компоненты сердечной функции:
- в клетках водителя ритма она увеличивает частоту спонтанных сокращений (положительный хронотропный эффект);
- ускоряет распространение возбуждения в проводящей системе (положительный дромотропный эффект), что особенно заметно проявляется в АВ-узле;
- в миокарде предсердий и желудочков увеличивает силу сокращений независимо от растяжения (положительный инотропный эффект);
- ускоряет расслабление миокарда (положительный лузитропный эффект);
- за счет прямых и косвенных воздействий стимуляция симпатической нервной системы ведет к расширению сосудов коронарной системы (сосудорасширяющий эффект).
В самом сердце эффект опосредуется прежде всего β-адренорецепторами. Отчасти инотропный эффект в сердце обусловлен также α-адренорецепторами. При центральной активации симпатической системы описанные эффекты проявляются не только благодаря локальному выбросу норадреналина в сердце. Центральная активация, помимо этого, стимулирует секрецию адреналина мозговым веществом надпочечников.
Этот нейрогормон, переносимый кровотоком к сердцу, поддерживает местные эффекты. Адреналин при равной концентрации характеризуется большей эффективностью воздействия на β-адренорецепторы по сравнению с норадреналином и меньшей на α-адренорецепторы. Местные β-адренергические эффекты норадреналина тем не менее достаточно выражены, поскольку в ткани он высвобождается в высокой концентрации.
В соответствии с анатомическим распределением парасимпатической системы ее действие практически полностью ограничено структурами предсердия. Она вызывает эффекты:
- отрицательный хронотропный в синусовом узле;
- отрицательный инотропный в миокарде предсердий;
- отрицательный дромотропный в АВ-узле.
Эффекты опосредуются мускариновыми рецепторами к ацетилхолину на мембране кардиомиоцитов.
г) Иерархия возникновения возбуждения. Как правило, синусовый узел является самым быстрым и, следовательно, самым эффективным водителем ритма сердца; иерархия спонтанного возникновения возбуждения определяет его проведение.
1. Возникновение возбуждения. Автоматия сердцебиения основывается на спонтанном возникновении ПД в клетках водителя ритма (рис. 3). Как правило, спонтанное электрическое возбуждение быстрее всего генерируется в синусовом узле — небольшом кластере клеток в правом предсердии. Оттуда возбуждение передается на рабочий миокард предсердий, до тех пор пока не достигнет клеток АВ-узла, расположенного в правом предсердии в углу между перегородкой и клапанами.
Возбуждение проходит через клетки АВ-узла, затем распространяется по проводящей системе желудочков (пучок Гиса, левая и правая ножки пучка Гиса, волокна Пуркинье) в желудочки и распространяется по их миокарду (рис. 1).
В нормальных условиях синусовый узел определяет ритм сокращений сердца: в нем быстрее происходит спонтанная деполяризация, а исходящее из него возбуждение передается нижележащим структурам проводящей системы, прежде чем они самостоятельно достигают порога спонтанной генерации ПД. Это создает иерархию водителей ритма. Если передача между различными элементами проводящей системы нарушена в условиях патологии, можно наблюдать собственную частоту водителей ритма:
- собственная частота неиннервированного синусового узла составляет примерно 60-80 уд./мин, его также называют водителем ритма первого порядка;
- собственная частота АВ-узла составляет примерно 40-50 уд./мин, его называют водителем ритма второго порядка;
- собственная частота пучка Гиса и ножек пучка составляет примерно 30-40 уд./мин. Спонтанное возникновение возбуждения ниже АВ-узла относят к водителям ритма третьего порядка.
2. Проведение возбуждения. В норме при возбуждении сердца синусовым узлом требуется примерно 60 мс для прохождения возбуждения по миокарду предсердий и достижения АВ-узла (скорость проведения примерно равна 0,5 м/с). АВ-узел служит затормаживающим элементом при проведении возбуждения (около 0,1 м/с); передача возбуждения через сам АВ-узел занимает примерно 60 мс.
Благодаря этой задержке сокращение предсердий может завершиться прежде чем волна возбуждения вызовет сокращение миокарда желудочков.
Расстояние от пучка Гиса до волокон Пуркинье преодолевается очень быстро, примерно за 20 мс (скорость около 1-3 м/ с). Распространение возбуждения по миокарду желудочков длится еще 60 мс (примерно 0,5 м/с). Рефрактерный период клеток предсердий составляет примерно 200 мс, а в клетках желудочка — 300 мс.
Поскольку время распространения возбуждения в предсердиях и желудочках (приблизительно 60 мс) меньше по длительности, чем рефрактерный период в кардиомиоцитах предсердий и желудочков, возбуждение, передаваемое через проводящую систему, приводит только к однократной активации предсердий и желудочков.
3. Рефрактерный период в волокнах Пуркинье особенно продолжителен (примерно 400 мс). Из этого следует два вывода:
- длительный рефрактерный период препятствует обратному проведению возбуждения из рабочего миокарда желудочков в проводящую систему;
- длительный рефрактерный период ограничивает частоту возникновения возбуждения, которое может передаваться в желудочки, до <150/мин (из расчета 1 : 400 мс). Это означает, что волокна Пуркинье действуют как «частотные фильтры», что не позволяет фибрилляции предсердий распространяться и на желудочки.
Проведение возбуждения модулируется симпатической нервной системой и блуждающим нервом.
P.S. Электротерапия нарушений сердечного ритма. Электрокардиостимуляторы — это аппараты, стимулирующие сердце электрическими импульсами для нормализации нарушенного сердечного ритма. При необходимости длительного использования кардиостимуляторов, как правило, подкожно имплантируется небольшой электронный прибор, и раздражение по трансвенозному электроду передается в миокард правого желудочка.
При брадикардических аритмиях (слишком низкой частоте сердечных сокращений) электрокардиостимулятор принимает на себя роль собственного водителя ритма сердца.
Электрическая стимуляция сердца применяется и при тахикардии (слишком высокой частоте сердечных сокращений). Электростимуляция вызывает однородную деполяризацию миокарда, после завершения которой, как правило, снова начинается нормальное возбуждение. При трепетании желудочков деполяризующий импульс тока используется одновременно с ЭКГ-сигналом желудочковой стимуляции (кардиоверсия).
При фибрилляции желудочков, достигающей > 350 сокращений в минуту, стимуляция с помощью ЭКГ уже невозможна. В этом случае необходим более сильный импульс тока для достижения максимально однородной деполяризации миокарда (дефибрилляция).
Пациентам с тахикардической аритмией, не поддающейся фармакологическому лечению, в настоящее время часто имплантируют стимулятор, который при возникновении тахикардической аритмии автоматически генерирует деполяризующий разряд тока (имплантированный дефибриллятор сердца, ICD). В экстренных случаях может быть применен «электрошок» (дефибрилляция) с использованием трансторакальных внешних электродов (внешний дефиблиллятор).
д) Возбуждение клеток водителя ритма. Клетки водителя ритма самостоятельно генерируют ПД; стабильный МП покоя у них отсутствует.
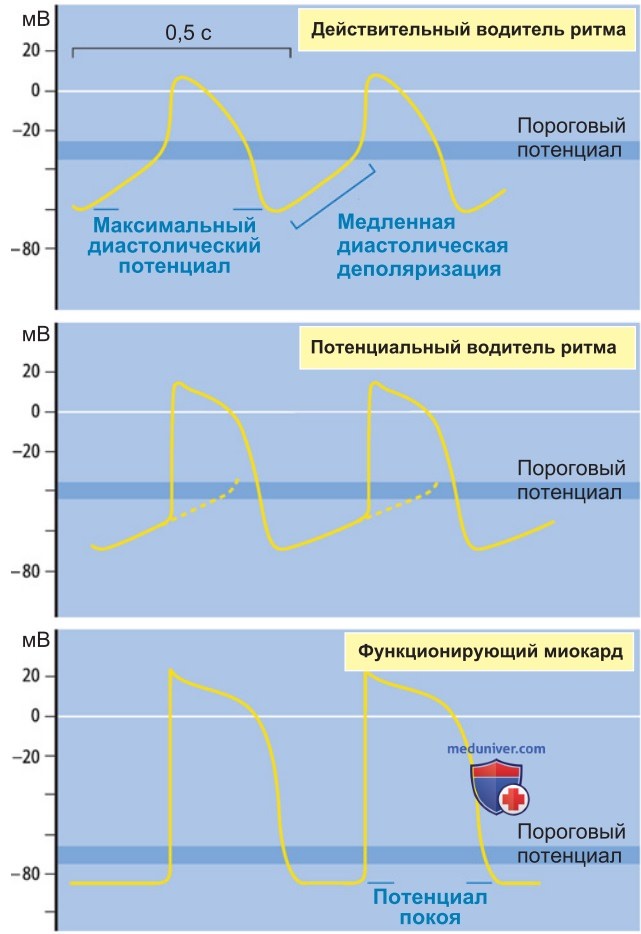
1. Медленная диастолическая (спонтанная) деполяризация. Пейсмекерные клетки синусового узла отличаются от клеток рабочего миокарда отсутствием стабильного МП покоя, они спонтанно деполяризуются и самостоятельно генерируют ПД (рис. 4). Максимальный отрицательный потенциал этих клеток составляет примерно -60 мВ, что значительно меньше по сравнению с мембранным потенциалом покоя в клетках рабочего миокарда (-90 мВ) (рис. ниже).
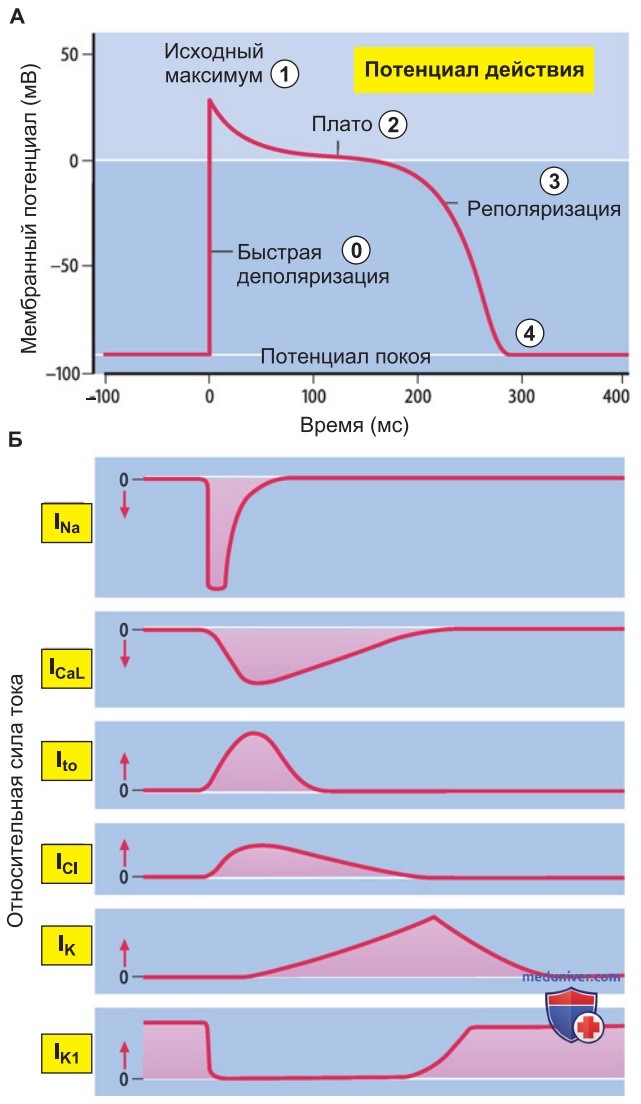
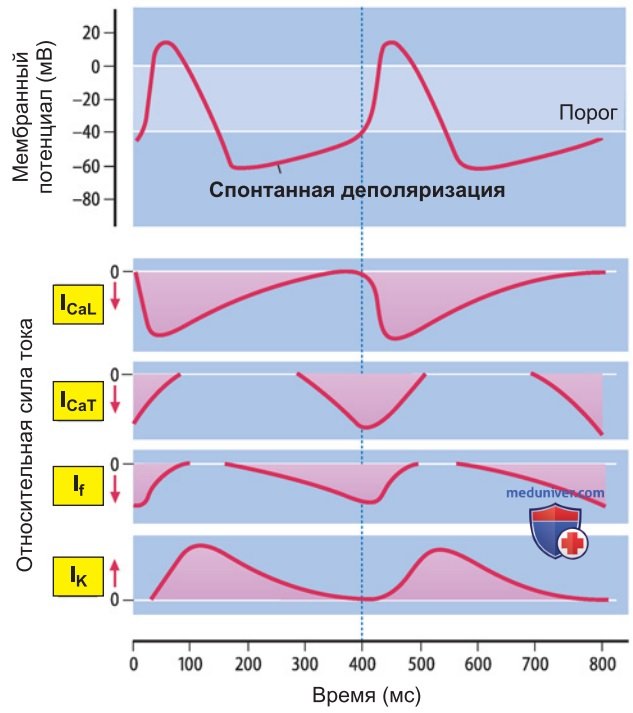
Калиевый ток, определяющий потенциал мембраны в покое в кардиомиоцитах, ток входящего выпрямления (IK1) и быстрый Na+-ток (INa), который определяет быструю начальную фазу ПД, не имеют функциональной значимости в клетках водителя ритма. В отсутствие стабилизирующего влияния тока IK1 клетки медленно спонтанно деполяризуются после достижения значений потенциала -60 мВ. В этом процессе принимают участие многие входящие токи (рис. 4):
- в начале медленной диастолической деполяризации (МДД) активируется неселективный входящий ток, в основном опосредованный входом ионов Na+ (пейсмекерный ток), который отсутствует в клетках рабочего миокарда. Этот ток также обозначают If или Ih как «funny current» или «queer current», поскольку он обладает необычным свойством активироваться при гиперполяризации. При его наличии не формируется стабильный МП покоя;
- кроме того, активируются специфические кальциевые каналы (каналы Т-типа), которые открываются при более отрицательных потенциалах по сравнению с каналами L-типа. В пейсмекерных клетках этот ток в значительной степени способствует спонтанной деполяризации.
2. Потенциал действия. В момент когда спонтанная деполяризация достигает порогового значения, равного примерно -40 мВ, активируется медленный кальциевый ток (L-типа). Клетка быстро деполяризуется. Медленный кальциевый ток является носителем первой фазы пейсмекерного ПД, при котором клетка может деполяризоваться до +20 мВ. Активация К+-тока задержанного выпрямления (IK) в деполяризованной клетке инициирует медленную реполяризацию, связанную с инактивацией кальциевого тока L-типа.
В отличие от рабочих кардиомиоцитов, в пейсмекерных ПД фаза плато отсутствует, поскольку здесь не возникает баланса между деполяризующими и реполяризующими токами. Ток IK инактивируется по мере возвращения МП к отрицательным значениям. Таким образом, в конце ПД проводимость для К+ в клетке водителя ритма заметно снижается и МДД начинается снова.
P.S. Синдром слабого синуса:
- Патофизиология. Если в клетках синусового узла нарушена автономная пейсмекерная функция, распространение возбуждения в его пределах или передача возбуждения от синусового узла в миокард предсердий может привести к нарушениям сердечного ритма.
В зависимости от причины возбуждение, передаваемое на атриовентрикулярный узел и в желудочки, может иметь слишком низкую (брадикардия) или слишком высокую (тахикардия) частоту, причем чаще встречаются брадикардические нарушения. Причинами синдрома слабого синуса (ССС) служат, например, дегенеративные изменения в области синусового узла и предсердий, которые могут возникать из-за нарушения кровоснабжения (коронарная болезнь сердца) или хронической перегрузки предсердий (дефекты клапанов, гипертоническая болезнь). Соответственно ССС преимущественно возникает у людей старшего возраста (> 50 лет).
- Риски. Риски при слишком редкой частоте стимуляции сердца заключаются в недостаточной насосной функции слишком медленно сокращающегося сердца, что может привести к слабости и потере сознания. Полная остановка сердца из-за выпадения пейсмекерной функции синусового узла (прекращение активности синуса) с летальным исходом также может быть вызвана синдромом слабого синуса.
- Терапия. Важнейшей терапевтической мерой при возникновении клинических симптомов является имплантация электрического кардиостимулятора, который либо принимает на себя пейсмекерную функцию синусового узла на постоянной основе, либо активируется только тогда, когда спонтанный сердечный ритм падает ниже определенной границы.
е) Нервная регуляция возбуждения и проведения. Автономная иннервация модулирует спонтанную активность клеток — водителей ритма и проведение возбуждения.
1. Нервная модуляция синусового узла. Частота спонтанной генерации ПД в клетках синусового узла в основном зависит от скорости МДД. Синусовый узел иннервируется как симпатическими волокнами, так и блуждающим нервом (рис. 2). При стимуляции блуждающего нерва скорость МДД значительно снижается, при стимуляции симпатических волокон заметно увеличивается (рис. 5). Это обусловлено антагонистическим действием медиаторов парасимпатической (ацетилхолин) и симпатической систем (норадреналин, адреналин) на клетки синусового узла.
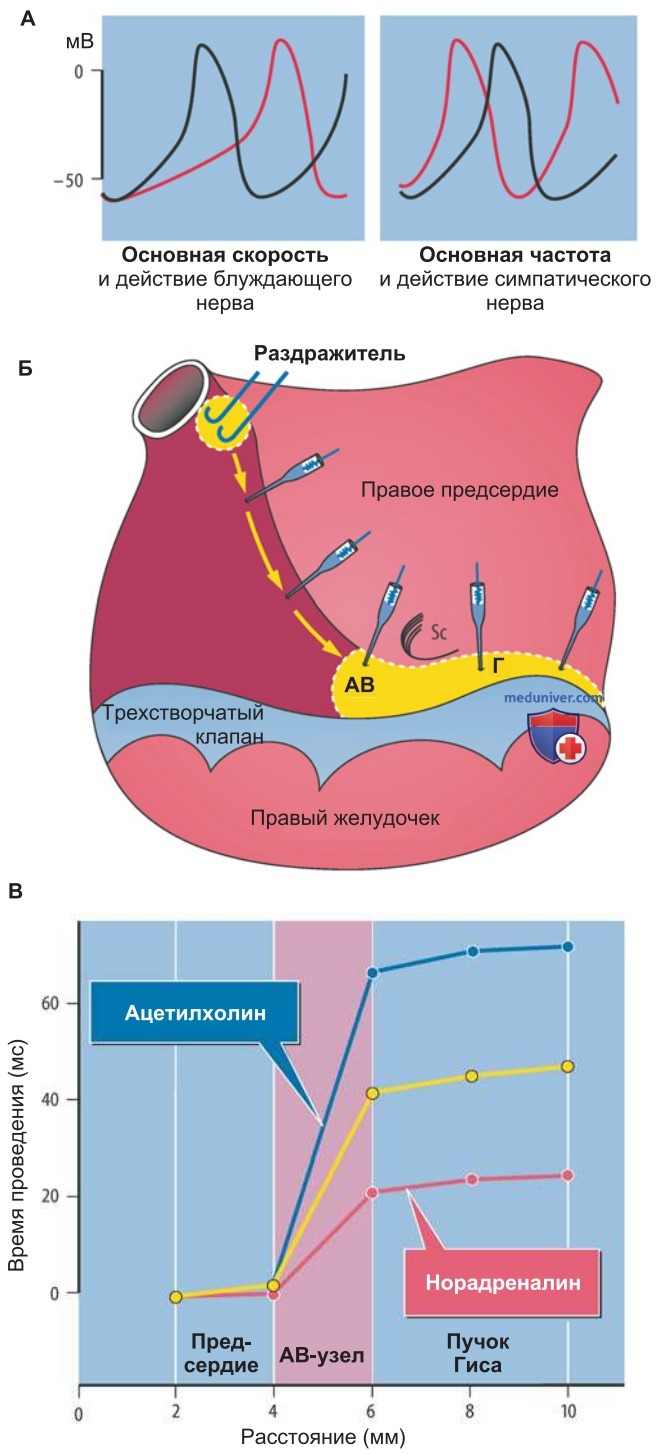
Норадреналин и адреналин стимулируют β-адренорецепторы в клетках синусового узла через стимуляторные G-белки (Gs), что приводит к активации аденилатциклазы и, следовательно, к образованию цАМФ (см. выше). Ацетилхолин стимулирует мускариновые рецепторы в клетках синусового узла. Он блокирует аденилатциклазу через ингибиторные G-белки (Gi).
Пейсмекерный ток If активируется при повышении внутриклеточной концентрации цАМФ (за счет прямого взаимодействия молекулы цАМФ с белком канала HCN), что ускоряет деполяризацию клеток при воздействии норадреналина. Под влиянием ацетилхолина достижение порога генерации ПД по различным причинам затормаживается:
- ацетилхолин из-за своего антагонистического воздействия на аденилатциклазу оказывает тормозное влияние на If и, следовательно, замедляет МДД клеток водителя ритма;
- ацетилхолин активирует калиевый канал, связанный с его рецепторами (ток IKach), что также опосредуется G-белком. Обусловленное этим повышение проводимости для ионов калия сдвигает мембранный потенциал пейсмекерных клеток к более отрицательным значениям.
Как уже отмечалось, способность симпатической и парасимпатической систем повышать и снижать частоту сердечных сокращений называют соответственно положительной или отрицательной хронотропией.
2. Нервная модуляция проведения возбуждения. По своим электрическим свойствам пейсмекерные клетки АВ-узла весьма похожи на клетки синусового узла. В частности, они генерируют ПД, обусловленный кальциевым током L-типа. Стимуляция клеток АВ-узла через симпатическую систему и блуждающий нерв имеет противоположные эффекты:
- стимуляция клеток АВ-узла через симпатическую систему усиливает вход кальция и вместе с тем крутизну фронта нарастания ПД. Это обусловливает ускоренное распространение возбуждения (положительный дромотропный эффект) (рис. 5);
- стимуляция клеток АВ-узла через блуждающий нерв обладает противоположным эффектом (отрицательный дромотропный эффект). В клетках АВ-узла также есть ток IKach, активация которого при сильной парасимпатической стимуляции препятствует возникновению ПД в клетках АВ-узла и, таким образом, может приводить к нарушению передачи возбуждения через АВ-узел (атриовентрикулярная блокада).
ПД проводящей системы в желудочках аналогичны ПД клеток рабочего миокарда. В частности, возникновение этих ПД также определяет быстрый натриевый ток. Однако клетки проводящей системы в желудочках имеют диастолический пейсмекерный ток (If), который участвует в медленной диастолической деполяризации. По этой причине они являются потенциальными водителями ритма.
ж) Потенциал действия. Разные типы мышечных клеток сердца различаются по своим ПД.
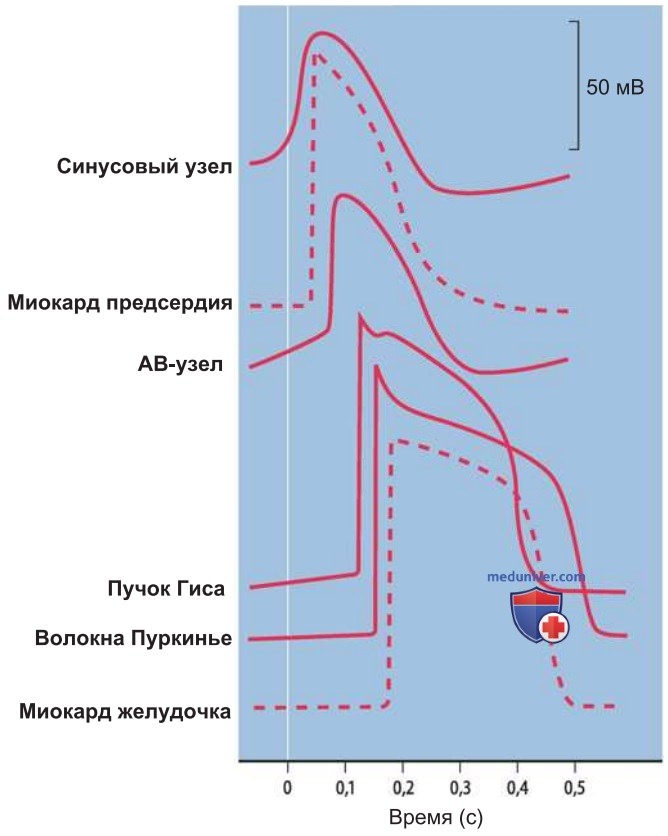
При систематическом рассмотрении характерных форм ПД сердца в различных его участках (рис. 6) можно выявить следующие различия:
- клетки проводящей системы характеризуются медленной диастолической деполяризацией и пологим фронтом нарастания ПД;
- клетки рабочего миокарда предсердий и желудочков обладают стабильным диастолическим мембранным потенциалом в состоянии покоя, а ПД имеет крутой фронт нарастания; однако ПД в предсердиях значительно короче, чем в желудочке;
- ПД в терминальных отделах волокон Пуркинье отличается особенно продолжительной фазой плато и соответственно рефрактерным периодом, поэтому они действуют как частотные фильтры при передаче возбуждения на желудочки;
- в миокарде желудочков также есть большие различия по длительности ПД. ПД в субэндокардиальном миокарде могут быть в два раза более длительными, чем в субэпикардиальных слоях.
P.S. Синдром каротидного синуса:
- Причины. Надавливание на место расположения каротидного синуса на шее может вызывать у некоторых людей вазовагальный рефлекс рецепторов давления. Особенная чувствительность к давлению часто возникает у людей с атеросклеротически измененным каротидным синусом. Таким людям может быть достаточно слишком узкого воротника, поворота головы или запрокидывания ее назад (например, при бритье), для того чтобы вызвать сильную кардиодепрессивную активацию блуждающего нерва.
К непосредственным эффектам относится сильная синусовая брадикардия, или остановка с асистолией, или явления, связанные с нарушением проведения возбуждения, такие как ухудшение или выпадение насосной функции сердца (асистолия). Последующее снижение АД и недостаточная перфузия головного мозга приводят к потере сознания.
- Риски. Риски соответствуют таковым при приступе Адамса-Стокса, частным случаем которого можно считать вазовагальные приступы.
- Терапия. В острой стадии кардиодепрессивные эффекты можно устранить с помощью атропина — блокатора вагусной синаптической передачи. Имплантация электрического кардиостимулятора, автоматически активирующегося при брадикардии, оправдана при выраженной клинической картине.
1. Система генерации возбуждения и его проведения в сердце (проводящая система сердца). В сердце клетки - водители ритма спонтанно генерируют ПД (автоматия). Скорость спонтанной медленной диастолической деполяризации (МДД) определяет собственный ритм таких клеток. Активация симпатических нервов в сердце ускоряет собственный ритм, тогда как активация блуждающего нерва замедляет его.
2. Иерархия потенциальных водителей ритма. В проводящей системе существует иерархия потенциальных водителей ритма, определяемая скоростью МДД. Как правило, самым быстрым является синусовый узел (водитель ритма первого порядка). Если синусовый узел выходит из строя, то инициацию возбуждения берет на себя АВ-узел (водитель ритма второго порядка) или структуры проводящей системы в желудочках (водитель ритма третьего порядка).
В АВ-узле проведение возбуждения между предсердиями и желудочками сильно замедлено, чтобы разделить их сокращение во времени. Время проведения возбуждения по миокарду желудочков значительно меньше по длительности, чем их рефрактерный период. Таким образом, каждый цикл возбуждения завершается спонтанно.
Видео зубцы ЭКГ в норме и нормальная электрокардиограмма
- Рекомендуем ознакомиться далее "Электрокардиограмма - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 30.5.2025