

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Клетка миокарда в покое и возбужденном состоянии - с точки зрения физиологии человека
Оглавление статьи:- Потенциал покоя
- Потенциал действия
- Ионные токи во время и после потенциала действия
- Электромеханическое сопряжение
- Резюме
- Список использованной литературы
P.S. Студент Хайнц С. при смене перегоревшей лампочки забыл отключить электрический ток. Взявшись правой рукой за патрон лампочки, он почувствовал, как по телу прошел электрический разряд, после чего потерял сознание и упал. Через несколько секунд Хайнц С. очнулся и обнаружил, что не имеет повреждений, за исключением того, что получил следы ожога на правой руке.
Электрический ток, мгновенно прошедший через его тело, вызвал в сердце циркулирующее возбуждение, которое приводит к высокочастотным и неконтролируемым сокращениям миокарда (фибрилляции сердца). Фибриллирующее сердце больше не перекачивало кровь, поэтому Хайнц С. потерял сознание. Позже нормальные процессы возбуждения в сердце спонтанно восстановились, что и спасло ему жизнь.
а) Потенциал покоя. Клетки рабочего миокарда (кардиомиоциты) в невозбужденном состоянии обладают стабильным потенциалом покоя (ПП), равным -90 мВ; ПП приблизительно соответствует равновесному потенциалу для ионов K+.
1. Амплитуда мембранного потенциала. Рабочие кардиомиоциты представляют собой электрически возбудимые клетки, которые в отсутствие внешней стимуляции остаются в стабильном состоянии покоя. В покое внутренняя часть клетки заряжена отрицательно по отношению к внеклеточному пространству, сарколемма имеет мембранный потенциал (МП), т. е. трансмембранное напряжение около -90 мВ.
Эту разность потенциалов можно измерить, если ввести внутрь клетки микроэлектрод и провести дифференциальное измерение с использованием внеклеточного электрода в качестве сравнительного.
2. Причина возникновения мембранного потенциала. Мембранный потенциал кардиомиоцита в покое примерно соответствует равновесному потенциалу Нернста для ионов K+. В действительности плазмалемма (сарколемма) в состоянии покоя обладает хорошей проводимостью для K+ и очень низкой проводимостью для других ионов.
В сердечной мышце в состоянии покоя концентрация внутриклеточного K+ составляет примерно 140 ммоль/л, а внеклеточного K+ — около 4 ммоль/л. Если подставить эти значения в уравнение Нернста, можно вычислить равновесный потенциал для ионов калия:
ЕK = 61 мВ * log 4/140 = -94 мВ.
В покое проводимость мембраны кардиомиоцита для ионов калия определяется калиевыми каналами входящего выпрямления (IK1), т. е. калиевыми каналами, которые быстро инактивируются при деполяризации до значений, превышающих -70 мВ. Каналы входящего выпрямления представляют собой калиевые каналы, проводимость которых увеличивается при гиперполяризации и которые в основном опосредуют вход K+ в клетку.
б) Потенциал действия. Потенциал действия (ПД) клетки рабочего миокарда необыкновенно продолжителен; его реполяризация включает фазу плато, длящуюся 200400 мс; в течение этой фазы клетка не способна возбуждаться (остается рефрактерной).
1. Начало возбуждения. Если соседняя с покоящейся клетка электрически возбуждается, то между поверхностями обеих клеток, а также между внутриклеточными средами (через щелевые контакты) наблюдаются небольшие перемещения зарядов, вызванные генерацией ПД возбужденной клеткой. Слабые токи между соседними клетками также немного деполяризуют невозбужденную клетку.
Если деполяризация достигает порогового значения, равного примерно -70 мВ, происходит быстрое открывание потенциалзависимых натриевых каналов.
При этом значении потенциала К+-каналы входящего выпрямления уже оказываются инактивированными.
2. Деполяризация и овершут. Активация входа ионов натрия приводит к быстро усиливающейся деполяризации (рис. 1). МП резко деполяризуется (фаза 0 ПД, или деполяризация). Благодаря быстрой кинетике натриевый ток еще называют быстрым натриевым током (INa). Поскольку во время этой фазы проводимость плазмалеммы определяется почти только исключительно большой натриевой проводимостью, МП стремится к равновесному потенциалу для этого иона.
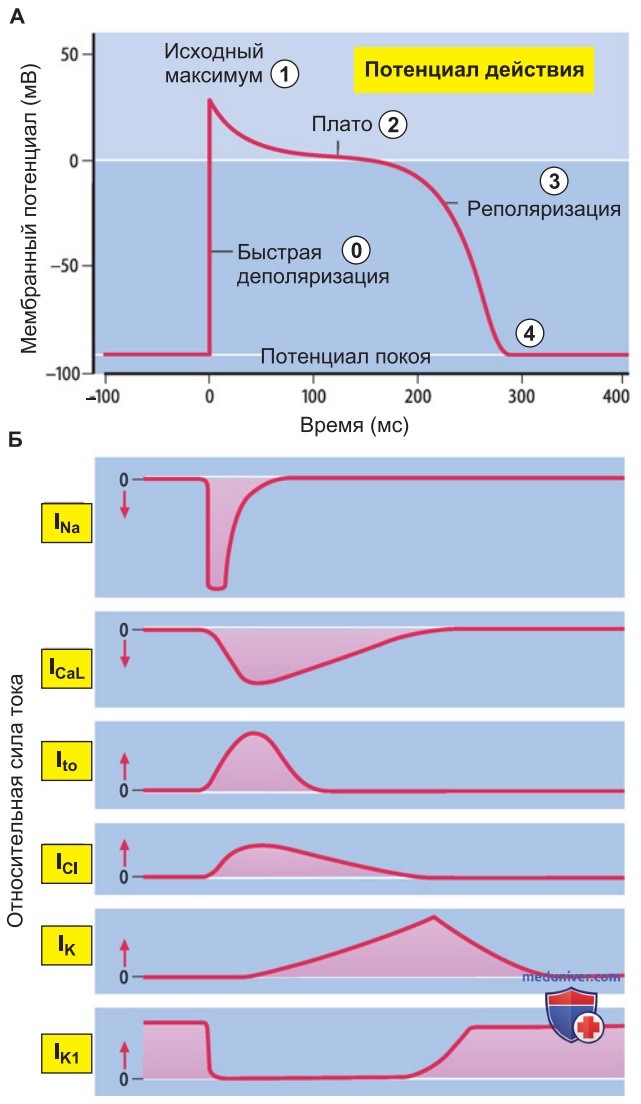
Внутриклеточная концентрация Na+ составляет примерно 10 ммоль/л, внеклеточная — 140 ммоль/л. По уравнению Нернста равновесный потенциал натрия (ENa) равен приблизительно +60 мВ. Однако это значение не достигается при генерации ПД, поскольку натриевые каналы потенциалзависимо инактивируются и закрываются. Этот процесс начинается при значениях потенциала -40 мВ и завершается в течение примерно 1 мс.
МП достигает небольшого, но положительного значения +20 мВ (овершут), затем начинается ранняя быстрая (частичная) реполяризация (фаза 1). За частичную реполяризацию отвечает последующий выход калия (транзиторный выходящий калиевый ток, Ito), а также вход Cl- (ICl) (Ионы Cl- проникают в клетку, однако из-за их отрицательного заряда наблюдается выходящий ток!).
3. Фаза плато. Фаза быстрой реполяризации завершается длительной фазой плато (фаза 2), в течение которой МП находится на уровне примерно 0 мВ. Эта фаза определяется равновесием между вышеназванными реполяризующими токами и медленным входом кальция (ICa), который основан на потенциалзависимой активации кальциевых каналов L-типа. Эти каналы активируются при мембранных потенциалах выше -40 мВ и очень долго остаются в открытом состоянии.
Они определяют фазу плато в течение примерно 300 мс (200-400 мс в зависимости от частоты сердечных сокращений и расположения клеток).
4. Реполяризация. Когда кальциевые каналы инактивируются и реполяризующие токи больше не компенсируются, начинается последняя фаза ПД (фаза 3), окончательная (медленная) реполяризация. В реполяризации принимает участие целый ряд различных токов, прежде всего калиевых.
Особенно важны калиевые токи выходящего выпрямления (называемые также токами замедленного выпрямления, IK); в отличие от токов входящего выпрямления (IK1) они активируются только в деполяризованной клетке и с большой временной задержкой. (Токами выходящего выпрямления называют калиевые токи, которые сильнее в выходящем направлении, т. е. при деполяризации, чем во входящем, т. е. при гиперполяризации.).
Различают медленные и быстрые компоненты IK (IKs и IKr), которые опосредуются различными ионными каналами. Во время фазы окончательной реполяризации преобладает проводимость клеточной мембраны для K+. Следовательно, мембранный потенциал вновь стремится к равновесному потенциалу для K+, равному приблизительно -90 мВ. При этом доминирует К+-ток входящего выпрямления (IK1). Он определяет МП даже после завершения ПД, т.е. в состоянии покоя (фаза 4).
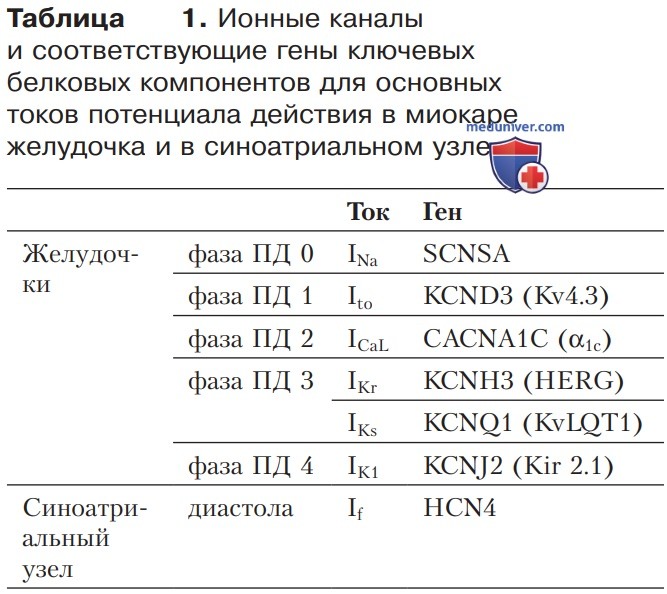
Гены и белковые структуры ионных каналов, принимающих участие в генерации ПД, в большинстве идентифицированы и подробно описаны в отдельной статье на сайте (просим Вас пользоваться формой поиска по сайту выше) (табл. 1).
5. Рефрактерный период. Во время фазы плато клетка сердечной мышцы электрически абсолютно рефрактерна (рис. 2). В течение этого времени следующий ПД возникнуть не может. Длительность фазы плато обычно дольше, чем однократное сокращение сердца. По этой причине в сердечной мышце не происходит перекрывания одиночных сокращений, или тетануса, что функционально не имело бы смысла, поскольку желудочки сердца могут выполнять свою насосную функцию только при разделенных во времени сокращениях.
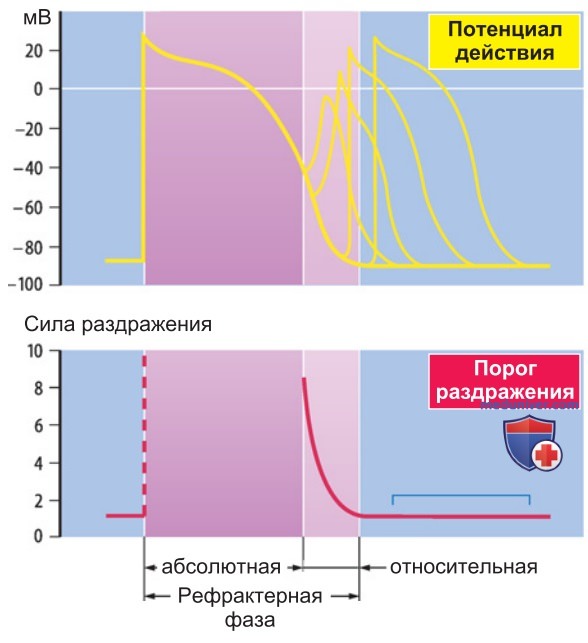
Абсолютный рефрактерный период завершается во время фазы реполяризации при МП около -40 мВ, потому что выше этих значений быстрые натриевые каналы остаются полностью инактивированными из-за своей потенциалзависимости. Если клетка реполяризуется до более отрицательных значений, натриевые каналы вновь могут частично активироваться.
ПД могут быть вызваны снова; однако вначале они характеризуются более наклонным фронтом нарастания и меньшей продолжительностью, а также очень медленно распространяются между соседними клетками (относительный рефрактерный период).
Во время относительного рефрактерного периода возбудимость рабочего миокарда достаточно неоднородна, что в совокупности со сниженной скоростью распространения возбуждения способствует возникновению аритмий по типу циркулирующего возбуждения. Этот временной отрезок называют уязвимым периодом.
в) Ионные токи во время и после потенциала действия. Вход ионов Na+ и Ca2+ во время ПД должен быть скомпенсирован обратным током ионов через клеточную мембрану; это функция прежде всего натриевого насоса и Na+/Ca2+-обменника.
1. Натриевый насос. В ходе генерации ПД происходят сдвиги концентраций ионов Na+, K+, Cl- и Ca2+ между цитоплазмой и внеклеточным пространством. Однако они настолько малы, что транссарколеммная разница концентраций этих ионов практически не изменяется за время одного цикла возбуждения. Тем не менее для долговременного поддержания ионного гомеостаза Na+, Cl- и Ca2+ выкачиваются из клетки, а ионы К+ возвращаются внутрь.
Для Na+ и K+ эту функцию осуществляет сарко-леммный Na+/K+-насос (Na+/K+-АТФаза), который с затратой энергии переносит оба иона через клеточную мембрану против градиента концентрации. Транспортер переносит Na+ и K+ в противоположных направлениях, но не в равных количествах. Стехиометрическое соотношение составляет 3 иона Na+ (наружу) в обмен на 2 иона K+ (внутрь).
Направление работы насоса для обмена ионов обеспечивается химической затратой энергии (рис. 3). Ионный насос выкачивает носители положительного заряда из клетки наружу, т.е. создает выходящий электрический ток, который вносит вклад в реполяризацию во время ПД.
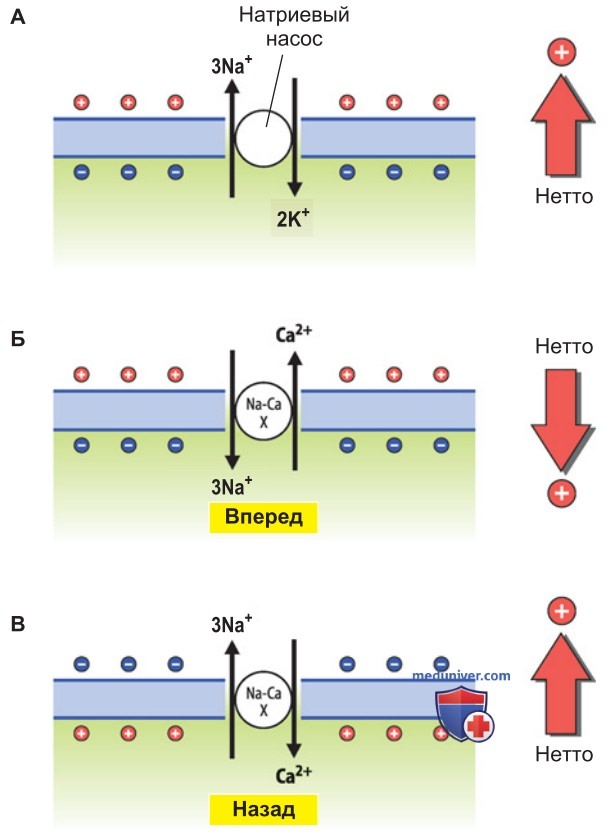
2. Na+/Ca2+-обменник. Созданный насосом градиент Na+ создает движущую силу для Na+/Ca2+-обменника, который выводит из клетки Ca2+ против градиента концентрации в обмен на Na+ через клеточную мембрану. Na+/Ca2+-обменник не электронейтрален. Он транспортирует ионы Na+ и Ca2+ в противоположных направлениях в соотношении 3:1.
В отличие от Na+/K+-насоса, Na+/Ca2+-обменник обеспечивает равновесное распределение ионов и заряда на клеточной мембране и изменяет направление работы в зависимости от исходного распределения.
Если внутриклеточное пространство заряжено отрицательно, а концентрация Na+ в цитозоле низка (например, в диастоле в клетках миокарда), Na+/Ca2+-обменник закачивает Na+ в клетку и выводит Ca2+ наружу (рис. 3). Поскольку трансмембранный градиент Na+ во многом определяется активностью Na+/K+-насоса можно сказать, что в таких условиях Na+/K+-насос обеспечивает энергию для переноса Са2+.
Если внутриклеточное пространство заряжено положительно (например, при генерации ПД, т. е. во время систолы) и/или если концентрация Na+ в цитозоле клетки повышена (например, при ингибировании Na+/K+-насоса), направление работы обменника меняется и Са2+ закачивается внутрь клетки в обмен на Na+ (рис. 3). Если такое состояние поддерживается более продолжительное время, то происходит Ca2+-перегрузка клетки, что приводит к ее повреждению в результате активации Ca2+-зависимых протеаз и липаз.
г) Электромеханическое сопряжение. Электромеханическим сопряжением называют сигнальный механизм, который связывает потенциал действия с сокращением мышечной клетки.
1. Фаза активации. Важнейшим посредником электромеханического сопряжения являются ионы Са2+. В покоящейся клетке концентрация Са2+ в цитозоле составляет лишь одну десятитысячную часть от его внеклеточной концентрации (10-7 моль/л по сравнению с 10-3 моль/л). Во время фазы плато потенциала действия в мембране Т-трубочек открываются кальциевые каналы L-типа и Са2+ проникает внутрь клетки (рис. 4).
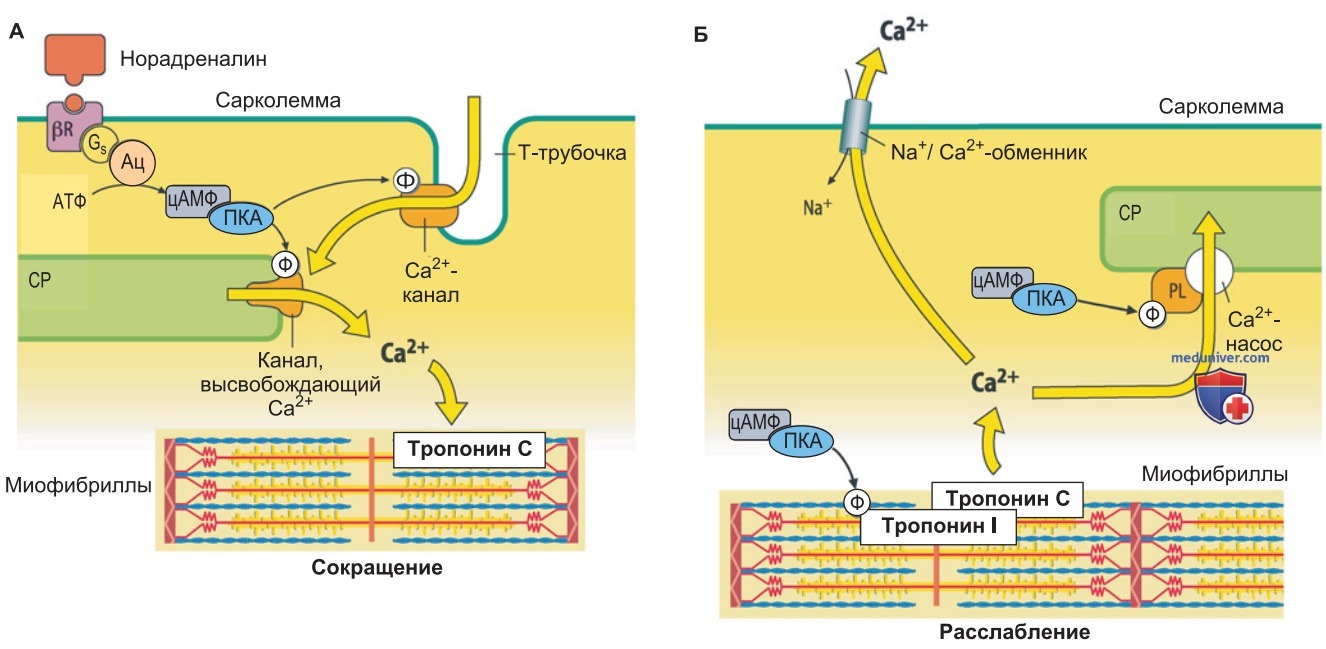
Под действием этого начального входа кальция ионы Са2+ выходят из саркоплазматического ретикулума через специфические белковые каналы. В результате концентрация свободного кальция в цитозоле повышается по сравнению с уровнем в покое, равным 10-7 моль/л, до максимальных значений 10-5 моль/л в возбужденной клетке миокарда. Связывание Са2+ с миофибриллярным регуляторным белком тропонином С активирует сократительный аппарат.
2. Влияние симпатической системы на активацию. Кардиомиоцит имеет на своей мембране β-адренорецепторы, которые могут быть стимулированы медиаторами симпатической нервной системы (норадреналином из местных симпатических нервных окончаний и адреналином из мозгового вещества надпочечников). Стимуляция β-рецепторов через специфический стимуляторный ГТФ-связывающий белок (Gsбелок) активирует мембранную аденилатциклазу. Последняя катализирует образование циклического АМФ (цАМФ) из АТФ.
цАМФ является аллостерическим активатором протеинкиназы А (ПКА), которая в свою очередь активирует различные клеточные белки путем фосфорилирования, в том числе мембранные кальциевые каналы L-типа. Если они фосфорилированы, во время фазы плато увеличивается вход ионов кальция и, следовательно, увеличивается кальций-зависимый выход Ca2+ из СР. Усиленному выходу Са2+ способствует также фосфорилирование и, следовательно, активация кальциевых каналов на СР протеинкиназой А.
Таким образом, при стимуляции β-адренорецепторов миокарда увеличивается по сравнению с нормой цитозольная концентрация кальция, что и приводит к усилению сокращений. Такое увеличение силы сокращений, независимое от растяжения сердечной мышцы, называют положительной инотропией.
3. Фаза расслабления. В последующей фазе расслабления (релаксации) клетки сердечной мышцы выкачивают Ca2+ обратно во внеклеточную среду и в клеточное депо кальция — саркоплазматический ретикулум (рис. 4). При снижении концентрации Са2+ в цитозоле уменьшается и связывание Са2+ с миофибриллярным регуляторным белком — тропонином С, и таким образом прекращается активация сократительного аппарата. Кальций в клетку из внеклеточной среды в основном выводится через Na+/Са2+-обменник.
Возврат Са2+ в саркоплазматический ретикулум осуществляется с помощью кальциевых помп (SERCA), которые присутствуют в мембране СР с высокой плотностью.
4. Влияние симпатической системы на расслабление. Активность SERCA регулируется белком фосфоламбаном, представляющим собой естественный ингибитор насоса, который в свою очередь инактивируется фосфорилированием. Фосфорилирование происходит, когда при стимуляции β-адренорецепторов кардиомиоцитов (и их симпатической регуляции) активируется протеинкиназа А.
Поэтому при стимуляции симпатического отдела нервной системы ускоряется снижение концентрации кальция в цитозоле и, следовательно, механическое расслабление сердечной мышцы (положительный лузитропный эффект).
1. Кардиомиоцит в покое и в возбужденном состоянии. В состоянии покоя МП кардиомиоцитов составляет примерно -90 мВ (близко к равновесному потенциалу для K+). При деполяризации генерируется ПД, в котором выделяют следующие фазы:
• фаза 0: деполяризация, вызываемая быстрым входом ионов Na+;
• фаза 1: начальная деполяризация, выраженный положительный МП;
• фаза 2: плато, вызываемое медленным входом ионов Са2+;
• фаза 3: реполяризация, опосредуемая выходом ионов K+.
Во время генерации ПД клетка в течение 300 мс остается электрически рефрактерной. Длительный рефрактерный период способствует тому, что сердечная мышца осуществляет только одиночные сокращения.
2. Запуск процесса сокращения. Вход ионов Са2+ в клетку во время фазы плато потенциала действия вызывает выход большого количества этих катионов из СР в цитозоль и инициирует процесс сокращения (электромеханическое сопряжение).
Активное закачивание ионов Са2+ в СР и выведение их через Na+/Са2+-обменник сарколеммы завершают активацию.
Видео физиология сердечной мышцы (миокарда) - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Проводящая система сердца - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 30.5.2025