

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Регуляция силы сокращения сердца - с точки зрения физиологии человека
Оглавление статьи:- Вещества, оказывающие положительный инотропный эффект
- Зависимость силы сокращения от частоты сердечных сокращений
- Механосенсорные механизмы обратной связи
- Резюме
- Список использованной литературы
а) Вещества, оказывающие положительный инотропный эффект. Положительное инотропное действие гормонов и лекарств, как правило, связано с увеличением концентрации Са2+, высвобождаемого в цитозоль во время систолы.
1. Сердечные гликозиды. Некоторые фармакологические препараты вызывают увеличение сократимости сердечной мышцы, т.е. изменяют силу сокращения при постоянном исходном растяжении и стабильной частоте сокращений. Такое изменение силы сокращений называют положительным инотропным (увеличивающим силу) эффектом лекарств.
Одним из примеров служит группа сердечных гликозидов или препараты наперстянки (первоначально были выделены из наперстянки, Digitalis lanata). Сердечные гликозиды ингибируют Na+/K+-АТФазу (рис. 1) и увеличивают внутриклеточную концентрацию Na+.
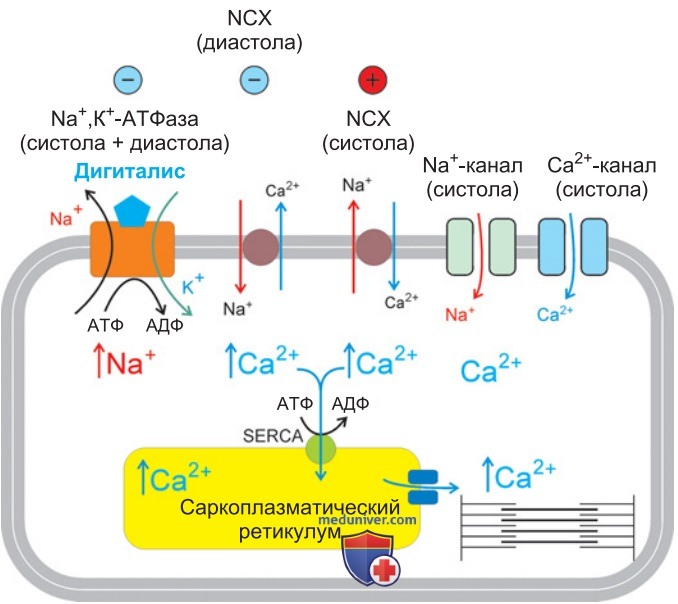
Увеличение концентрации внутриклеточного Na+ изменяет баланс работы Na+/Са2+-обменника (NCХ), так что во время систолы в клетки сердечной мышцы входит больше ионов кальция, а во время диастолы из клеток их выводится меньше (рис. 1).
Возникает увеличение цитозольной концентрации кальция и усиливается транспорт Са2+ в саркоплазматический ретикулум через саркоэндоплазматическую АТФазу Са2+ (БЕЕСЛ). Это влечет за собой усиление выброса Са2+ через саркоплазматические кальциевые каналы (рианодиновые рецепторы, RyR) и увеличение силы сердечных сокращений.
В итоге ингибирование Na+/К+-АТФазы приводит к увеличению активации сократительных белков во время систолы.
2. Адреналин и норадреналин. Положительный инотропный эффект симпатических медиаторов адреналина и норадреналина (или симпатомиметического препарата добутамина) также основан на увеличении цитозольной концентрации свободного Са2+ и, следовательно, усиленного его транспорта в саркоплазматический ретикулум.
Важнейший адренергический рецептор в миокарде, β1-адренорецептор, обнаруживается в синусовом узле, АВ-узле, проводящей системе и рабочем миокарде. Активация β1-адренорецепторов в рабочем миокарде вызывает усиление сокращений и значительное увеличение энергозатрат.
Кроме того, она приводит к возрастанию частоты сердечных сокращений (положительный хронотропный эффект) и ускорению проведения возбуждения между предсердиями и желудочками (положительный дромотропный эффект). Клеточные механизмы, обусловливающие реакцию клеток сердца на стимуляцию β1-адренорецепторов, подробнее описаны в отдельных статьях на сайте - просим Вас пользоваться формой поиска по сайту выше.
Трансдукция сигнала прежде всего основана на опосредуемой G-белком активации аденилатциклазы и продукции внутриклеточного медиатора цАМФ.
Помимо β1-рецепторов, в сердце имеются α1-адренергические рецепторы. Их активация также приводит к положительному инотропному действию, которое выражено несколько слабее, чем опосредуемое β1-адренорецепторами. Внутриклеточные эффекты α1-рецепторов опосредуются фосфолипазой С (PLC) и внутриклеточными медиаторами инозитолтрифосфатом (IP3) и диацилглицерином (DAG).
Некоторые другие медиаторы (например, эндотелин-1 и ангиотензин II) также вызывают активацию PLC, опосредованную G-белками. Функциональная роль рецепторов эндотелина-1 и ангиотензина II в сердце до сих пор не вполне ясна.
Важно, что большинство рецепторов, связанных с G-белками, наряду со своими непосредственными эффектами на электрическую активность или обмен веществ обладают многочисленными косвенными долговременными эффектами, которые реализуются на генном уровне. Они играют особенно важную роль при патологических состояниях, например в ремоделировании сердца при сердечной недостаточности (см. ниже).
3. Са2+-зависимое увеличение силы сокращения. Большинство медиаторов или фармакологических препаратов, увеличивающих сократимость сердечной мышцы, действуют путем повышения внутриклеточной концентрации кальция во время систолы. Из-за этого во время диастолы происходит усиленный обратный захват Са2+ в саркоплазматический ретикулум. Вследствие усиленной рециркуляции Са2+ зависимое от Са2+ увеличение силы сокращения сопровождается повышением энергетических затрат миокарда.
4. Са2+-сенситизаторы. Некоторые фармакологические препараты влияют непосредственно на сократительные белки, продлевая время, в течение которого эти поперечные мостики (молекулы миозина) связаны с молекулами актина. Таким образом, увеличивается сила сокращения, развиваемая клетками миокарда при равной внутриклеточной концентрации Са2+, т. е. чувствительность сократительных белков к Са2+ повышается (аналогично описанному выше механизму Франка-Старлинга; рис. ниже).

Эти фармакологические препараты, называемые Са2+-сенситизаторами, могут увеличивать эффективность работы сердца. Они часто используются при лечении острой сердечной недостаточности.
5. Протоны и фосфат-ионы. На сократительные белки и, следовательно, на сократимость клеток сердечной мышцы влияют и другие ионы. Снижение внутриклеточного рН или увеличение концентрации фосфат-ионов, к примеру, снижает сократимость миокарда.
6. Гормоны щитовидной железы. Трийодтиронин (Т3) увеличивает силу сокращения сердца, повышая в сердечной мышце уровень экспрессии изоформы V1 миозина, которая обладает более высокой АТФазной активностью. Кроме того, Т3 вызывает усиленную экспрессию p-адренорецепторов в сердце, в т. ч. в синусовом узле. При гипертиреозе происходит повышение частоты сердечных сокращений, увеличение МОС и амплитуды АД.
б) Зависимость силы сокращения от частоты сердечных сокращений. По мере увеличения частоты сердечных сокращений увеличивается сила сокращения миокарда. Стимулирующим фактором служит увеличение внутриклеточной концентрации Nа+ и Са2+.
1. Влияние увеличения частоты сокращений на клетки. Повышение частоты сердечных сокращений оказывает большое влияние на электрическую и механическую активность клеток миокарда. Это можно продемонстрировать в опытах на животных, электрически стимулируя изолированные препараты сердечной мышцы с различными частотами (в присутствии блокаторов α- и β-адренорецепторов).
Показано, что при более высоких частотах стимуляции ПД становятся короче; этот эффект сопровождается сложной кинетикой проводимости потенциалзависимых калиевых каналов. Еще заметнее становится увеличение силы изометрического сокращения при увеличении частоты раздражения (рис. 2). Стоит отметить, что при внезапном повышении частоты раздражения от 0,5 до 1,5 Гц сила сокращения постепенно растет и спустя несколько секунд достигает нового равновесного состояния. Феномен называют эффектом лестницы (положительной лестницы).
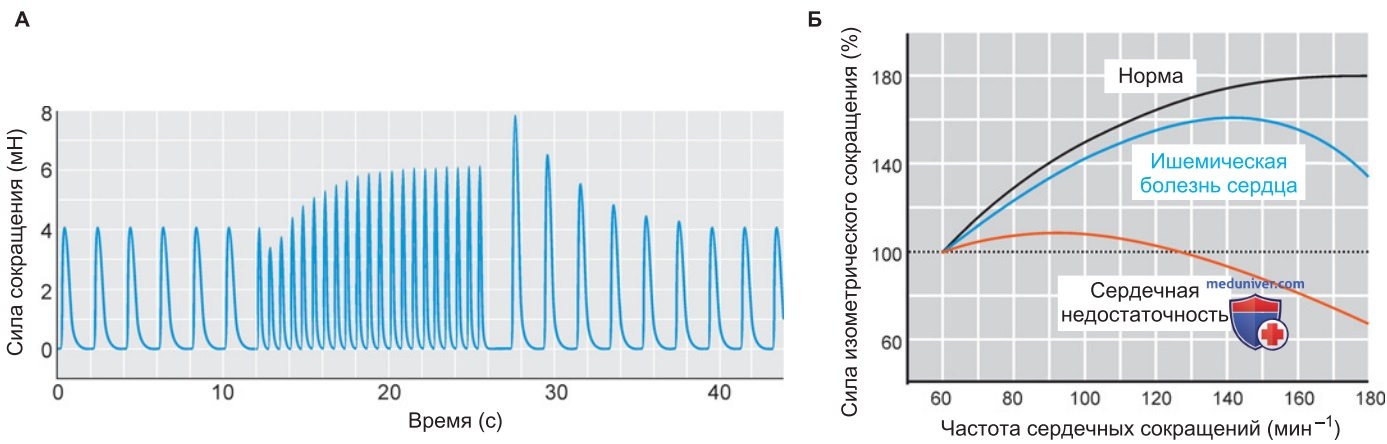
При снижении частоты раздражения сила изометрического сокращения сначала значительно увеличивается, а затем постепенно снижается (отрицательная лестница).
2. Положительная частотная инотропия. Молекулярный механизм, лежащий в основе эффекта лестницы, аналогичен механизму действия сердечных гликозидов. При более высокой частоте следования ПД в клетку сердечной мышцы попадает больше ионов Na+. Это приводит к увеличению входа ионов Са2+ и уменьшению их выведения через Na+/Са2+-обменник; в результате во время систолы происходит усиленный выброс Са2+ из СР, обусловленный интенсивным обратным захватом Са2+ в СР во время диастолы, и развивается более сильное сокращение.
Временной ход «лестницы» отражает временной ход внутриклеточного накопления Na+ и Са2+.
Такой внутренний механизм, встроенный в каждую клетку миокарда, называется положительной частотной инотропией. Частотная зависимость силы изометрического сокращения в препарате сердечной мышцы человека в равновесии (т. е. в конце «лестницы») представлена на рис. 2 (черная кривая). Сила сокращения постепенно увеличивается при повышении частоты сердечных сокращений.
3. Влияние частоты сокращений на МОС. Положительная частотная инотропия способствует увеличению силы сокращения каждой клетки миокарда при повышении частоты сокращений. Давление в желудочке (dV/dt) повышается быстрее, а ударный объем при сокращении становится больше. В конечном счете МОС увеличивается при повышении частоты сердечных сокращений. Препараты, полученные из сердец доноров с ишемической болезнью сердца, сокращаются не так сильно, а сила их сокращения снижается при частотах выше 140 мин-1 (рис. 2, синяя кривая).
В препаратах пациентов с тяжелой формой сердечной недостаточности (рис. 2, красная кривая) при повышающейся частоте стимуляции почти не наблюдается увеличения силы сокращений; при частотах выше 120 мин-1 сила сокращения даже снижается (отрицательная частотная инотропия). У пациентов с сердечной недостаточностью это проявляется в том, что МОС при увеличении частоты сокращений лишь незначительно увеличивается или даже снижается.
4. Влияние симпатической нервной системы. При активации симпатической нервной системы включается несколько механизмов: положительный инотропный эффект адреналина и норадреналина, ускорение расслабления и увеличение частоты сокращений, а также (зависимая от них) положительная частотная инотропия. Совокупность этих эффектов в здоровом сердце приводит к сильному увеличению МОС при возросшей частоте сокращений.
У здорового человека рост частоты сокращений примерно до 190 мин-1 при участии симпатической нервной системы даже сопровождается непропорциональным увеличением МОС. Если же снабжение сердца кислородом снижено, например при прогрессирующей ишемической болезни сердца, то МОС снова снижается при высокой частоте сокращений.
В таком случае сильная активация симпатической нервной системы оказывается контрпродуктивной, в частности в связи с сопутствующим увеличением энергетических затрат миокарда. При высокой степени сердечной недостаточности наблюдается снижение силы сокращения клеток миокарда и МОС по мере увеличения частоты сокращений сердца.
С помощью препаратов, блокирующих β-адренорецепторы в синусовом узле и в проводящей системе (а также в желудочках), можно добиться того, чтобы при физическом или эмоциональном стрессе не достигалась высокая, энергетически невыгодная частота сердечных сокращений.
в) Механосенсорные механизмы обратной связи. В сердце есть различные сенсоры объема и давления, обеспечивающие отрицательную обратную связь.
Как было указано выше, насосная функция сердца зависит от объема перекачиваемой крови; увеличение объема крови приводит к росту пред- и постнагрузки. Однако в сердце расположены механосенсоры, способные измерять уровень пред- и постнагрузки или объем крови и затем корректировать эти значения с помощью гуморальных или нейронных механизмов.
1. Сенсоры объема в предсердиях. В кардиомиоцитах предсердий происходит синтез и накопление в везикулах натрийуретических пептидов ANP (atrial natriuretic peptide) и BNP (brain natriuretic peptide). При растяжении предсердий миоциты высвобождают эти пептиды, те попадают в кровяное русло и по кровотоку достигают почек, где способствуют увеличению объема выделяемой мочи и усилению экскреции Na+. При сердечной недостаточности ЦВД повышается.
В результате предсердия растягиваются сильнее, и происходит интенсивное выделение ANP и BNP. Повышение уровня BNP в плазме крови служит важным показателем степени сердечной недостаточности.
2. Сенсоры давления в предсердиях. В обоих предсердиях и подходящих к ним венах есть специальные сенсоры, реагирующие на изменение (нижнего) артериального или венозного давления — сенсоры нижнего давления. Они представляют собой свободные окончания афферентных миелинизированных нервов, которые объединяются с блуждающим нервом и вместе с ним идут к ядру одиночного пути (nucleus tractus solitarius, NTS), расположенному в продолговатом мозге. Существует два типа рецепторов:
- рецепторы А-типа прежде всего находятся в правом предсердии и во время сокращения предсердия вызывают в афферентном нерве генерацию ПД; они функционируют в качестве сенсоров напряжения стенок; их функция все еще не выяснена;
- рецепторы В-типа преимущественно расположены в полых венах и активируются при повышении ЦВД в результате растяжения сосудов.
Поскольку ЦВД повышается при увеличении объема крови, рецепторы В-типа у здорового человека действуют как сенсоры, определяющие объем. Активация рецепторов В-типа рефлекторно приводит к:
- увеличению частоты сердечных сокращений;
- снижению тонуса почечных артериол;
- торможению выброса АДГ.
Все три эффекта обусловлены механизмом отрицательной обратной связи: тахикардия, расширение почечных артериол и снижение уровня АДГ приводят к усилению выработки мочи и, следовательно, к уменьшению объема крови.
3. Сенсоры растяжения в левом желудочке. В левом желудочке тоже существуют специальные рецепторы растяжения, которые активируются во время систолы. Окончания миелинизированных волокон, вероятно, служат сенсорами напряжения стенок и сообщают о любых изменениях сократимости в продолговатый мозг. Возможно, здесь также задействован механизм отрицательной обратной связи: при увеличении скорости и силы сокращений рефлекторно развивается брадикардия и снижается общее периферическое сопротивление, что предотвращает чрезмерное напряжение стенок желудочка.
4. Механоэлектрическая обратная связь. Существует и прямое влияние механического напряжения или изменения формы клеток миокарда на их электрическую активность. Этот феномен называется механоэлектрической обратной связью (MEF). При относительно сильном растяжении или изменении формы клеток открываются два типа ионных каналов: неселективные каналы катионов, активируемые растяжением (stretch-activated cation channels, SAC), и калиевые каналы, активируемые растяжением (stretch-activated K+-channels, SAK).
Структура SAC и SAK еще не выяснена окончательно. Поскольку наиболее сильное растяжение клеток сердечной мышцы происходит в конце диастолы, MEF, вероятно, препятствует чрезмерному диастолическому наполнению. SAC проявляют селективность к ионам Na+ и Са2+; при поступлении Na+ и Са2+ внутрь клетки, так же как и при положительной частотной инотропии (см. выше), сила сокращения увеличивается. Это приводит к тому, что желудочек опорожняется сильнее, а ЦВД постепенно снижается.
Одновременное раскрывание калиевых каналов, вероятно, препятствует слишком сильной деполяризации клеток сердечной мышцы из-за раскрытия SAC, что может привести к возникновению экстрасистол.
5. Периферические сенсоры высокого давления на периферии. Рецепторы давления в аорте и каротидном синусе реагируют на местное АД и соответственно подвергаются влиянию МОС. Их интенсивная стимуляция тормозит сердечно-сосудистые эфференты симпатической нервной системы и снижает МОС (за счет снижения сократимости миокарда и частоты сердечных сокращений). Все это опосредовано механизмом отрицательной обратной связи.
Рецепторы давления в афферентных артериолах почек также косвенно измеряют МОС и при изменении давления запускают механизм отрицательной обратной связи путем активации или торможения продукции ренина. Несмотря на то что регуляция АД, как правило, имеет приоритет над регуляцией объема крови, оба вида регуляции связаны между собой влиянием МОС и объема крови на АД. В этом отношении периферические рецепторы давления участвуют в регуляции как МОС, так и циркулирующего объема крови.
г) Резюме. Регуляция силы сердечных сокращений. Некоторые гормоны и лекарства вызывают изменение силы сокращений сердечной мышцы независимо от предварительного растяжения и частоты стимуляции. Такое изменение сократимости называют положительным инотропным эффектом. Примером может служить группа сердечных гликозидов — специфических блокаторов электрогенного Na+-К+-насоса (Na+-К+-АТФаза).
При ингибировании Na+-К+-АТФазы сначала происходит увеличение внутриклеточной концентрации свободного Na+, а затем усиленный обратный захват Са2+ клеткой миокарда. В итоге ионные сдвиги приводят к усиленному выбросу Са2+ из саркоплазматического ретикулума (СР) во время систолы и к увеличению силы сокращения.
Адреналин и норадреналин также обладают положительным инотропным эффектом. После связывания этих гормонов с β-адренорецепторами происходит активация протеинкиназы А, опосредуемая G-белками и внутриклеточным медиатором цАМФ. Активация ПКА приводит к фосфорилированию многочисленных белков в клетке миокарда и изменению их функции.
В конце сигнального каскада помимо прочего происходит увеличение входа Са2+ через потенциалзависимые кальциевые каналы и ускорение обратного захвата Са2+ в СР. Таким образом, сокращение клеток сердечной мышцы усиливается, а время этого процесса сокращается.
Увеличение частоты сокращений также приводит к увеличению их силы (положительная частотная инотропия). Повышенная частота ПД приводит к усилению входа ионов Na+ и Са2+ в клетку миокарда, а затем к увеличению выброса Са2+ во время систолы, обусловленному интенсивным захватом Са2+ в СР.
Сила сокращения миокарда регулируется и механосенсорными механизмами обратной связи. К ним относятся нейронные сенсоры объема и давления в предсердиях и в левом желудочке, зависимое от растяжения выделение натрийуретических пептидов кардиомиоцитами предсердий и механоэлектрическая обратная связь.
Видео физиология регуляции сердца - профессор, д.м.н. П.Е. Умрюхин
- Рекомендуем ознакомиться далее "Сердечная недостаточность - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 3.6.2025