

MedicalPlanet
Контактные данные:
admin@medicalplanet.su
2009-2026
Клеточные и молекулярные механизмы старения - с точки зрения физиологии человека
Оглавление статьи:- Молекулярные повреждения и старение
- Клеточные механизмы защиты и восстановления
- Клеточные стрессовые реакции
- Системная регуляция старения
- Гены и продолжительность жизни
- Прогерия
- Резюме
- Список использованной литературы
а) Молекулярные повреждения и старение. Молекулярные повреждения являются неотъемлемой частью всех жизненных процессов и непосредственной причиной старения.
1. Окислительный стресс. В разд. 36.5 описано, как в нормальных физиологических условиях и в процессе метаболизма с участием цитохром-Р450-оксидазы, прежде всего в митохондриальной электронтранспортной цепи, образуются супероксиданион-радикалы O2-, пероксид водорода Н2О2 и высокореактивный гидроксирадикал ОН-. Эти реакционноспособные соединения кислорода часто называют АФК или RОS (активные формы кислороды, reactive oxygen species).
Окислительный стресс возникает, когда концентрация АФК превышает возможности клетки для их обезвреживания и восстановления. Реакционноспособные соединения кислорода вызывают повреждения всех клеточных и внеклеточных макромолекул.
2. Перекисное окисление липидов. АФК могут окислять ненасыщенные жирные кислоты, в результате чего в клеточных мембранах запускается цепная реакция, приводящая к дальнейшему образованию все больших количеств пероксидов липидов. Изменяется текучесть биологических мембран и активность мембранных транспортных белков за счет изменения их микроокружения.
Проницаемость мембраны увеличивается, а на выходе реакционных цепей перекисного окисления образуются токсичные конечные продукты, повреждающие белки, такие как малондиальдегид или гидроксиноненал. В результате для поддержания мембранного потенциала нужно вырабатывать больше энергии. Перекисное окисление липидов является важной причиной снижения возбудимости и проводимости клеток с возрастом, особенно при стрессе.
3. Окислительные модификации белков. АФК могут разрушать пептидные цепи в белках и вызывать различные окислительные модификации боковых цепей аминокислот, в частности окисление сульфгидрильных групп (в цистеине и метонине) до дисульфидов и сульфоксидов, а также образование карбонильных производных лизина, аргинина, треонина и пролина. Результатом является (частичное) разворачивание белков и увеличение степени гидрофобности поверхности. За исключением образования дисульфидов и сульфоксидов окислительные изменения белков нельзя устранить напрямую, модифицированные белки расщепляются в протеасомах и лизосомах.
С возрастом доля окисленных белков в клетке повышается, а перегрузка расщепляющих их систем является одной из причин старения клеток.
4. Повреждение ДНК. Окислительный стресс может приводить к появлению одноцепочечных или двухцепочечных разрывов ДНК, а также вызывать самые различные модификации азотистых оснований, что в свою очередь может привести к блоку репликации и трансляции или к появлению несоответствующих пар оснований и закреплению мутаций. В одной клетке в день происходит от 104 до 105 повреждений, из которых примерно половина связана с окислительным стрессом, остальные являются спонтанными. Большинство повреждений обратимо.
Несмотря на это, с возрастом происходит накопление соматических мутаций, которые могут привести к нарушению клеточных функций.
5. Неокислительные повреждения. Окисление является не единственной формой повреждения биомакромолекул:
- ДНК спонтанно (термически) депуринируется и депиримидизуется. Вызванные термически одноцепочечные разрывы встречаются почти так же часто, как и вызванные окислителями;
- гуанин метилируется неферментативным путем;
- нарушение биосинтеза является важной причиной появления патологических белков;
- важнейшей формой посттрансляционного неокислительного повреждения белков является неферментативное гликозилирование, т. е. присоединение сахара к белкам (реакция Майяра). Сначала образуются аддукты фруктозамин-белка (продукты Амадори), а затем после нескольких промежуточных стадий конечные продукты гликирования (advanced glycation end products, AGE). AGE стимулируют образование поперечных сшивок в коллагена, могут связываться рецепторами различных типов клеток и запускать там стрессовые реакции. С клинической точки зрения лучше всего описана роль конечных продуктов гликирования для микрососудистой патологии при диабете и нефропатии.
б) Клеточные механизмы защиты и восстановления. Защитные и восстановительные процессы играют важную роль в определении скорости старения.
1. Антиоксидантная защита. Клетки и ткани располагают сложной системой защиты, которая состоит из ферментативных и неферментативных антиоксидантов и акцепторов радикалов. Качество антиоксидантной защиты в основном определяет скорость старения.
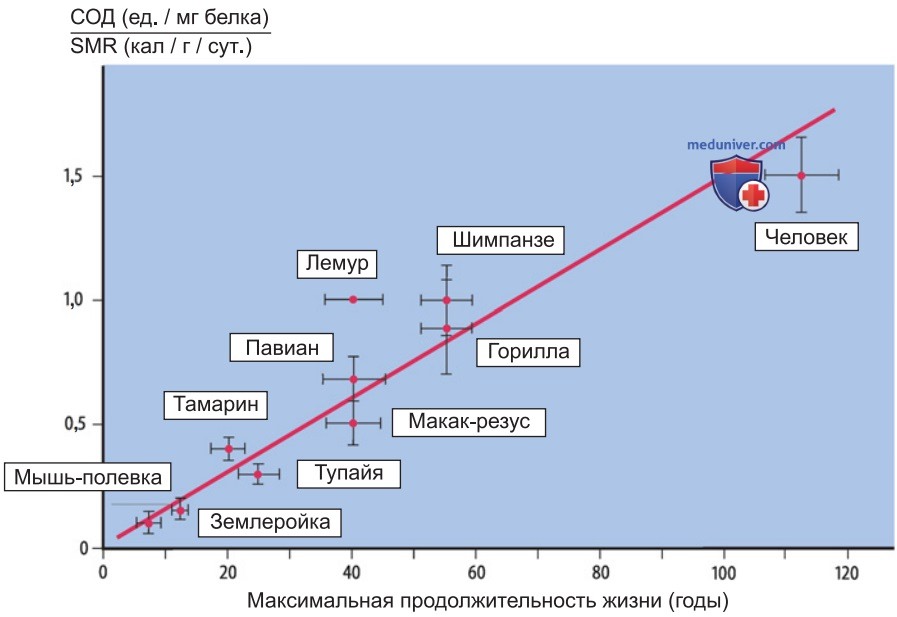
P.S. Исследования, проведенные на различных млекопитающих методом поперечного среза, показывают, что клеточное содержание СОД (рис. ниже), способность к репарации ДНК и общая стрессоустойчивость хорошо коррелируют с продолжительностью жизни. Трансфекция дополнительного гена СОД и соответствующее увеличение уровня его экспрессии могут увеличить продолжительность жизни дрозофил примерно на треть. Продолжительность жизни круглых червей значительно увеличивается, если их кормить каталитически активным миметиком СОД. У мышей с мутантным вариантом гена p66Sh в тканях вырабатывается меньше радикалов кислорода, и они живут примерно на 30% дольше, чем их немодифицированные собратья.
2. Вторичная защита. Обновление мембран и белков и репарация ДНК представляют вторую линию защиты клеток.
- Оборот белков и липофусцин: по окончании времени жизни, которая составляет от нескольких минут до нескольких дней, белки расщепляются в лизосомах или протеасомах, причем затрагивает это в основном поврежденные белки. Однако наряду с обезвреживанием поврежденных белков расщепление белков также необходимо для реализации множества других физиологических функций, например презентации антигенов или реализации процессов клеточного цикла. В процессе старения окисление белков превышает скорость их обновления, доля поврежденных белков в цитоплазме увеличивается и происходит накопление липофусцина.
Липофусцин, прототипический пигмент старения, представляет собой нерастворимый, с большим количеством поперечных сшивок флуоресцентный конечный продукт реакций перекисного окисления и гликозилирования, который накапливается внутри клеток во вторичных лизосомах. Если липофусцин не перераспределяется в процессе деления клетки, он может составлять до 30% ее объема, как это, например, имеет место в старых мышечных клетках или нейронах. Накопление липофусцина не является маркером старения клетки, но само по себе угнетает ее способность к обороту белка и тем самым активно способствует старению.
Это относится и к другим типам агрегатов дефектных или недостаточно деградировавших белков, таких как, например, цероид или тела Леви, являющихся внутриклеточными образованиями, а также амилоида, присутствующего во внеклеточном пространстве.
- Репарация ДНК: различные повреждения ДНК (окислительные повреждения азотистых оснований, образование поперечных сшивок, ошибочные спаривания, одно- и двухцепочечные разрывы) репарируются с помощью различных механизмов. В целом сегодня известно около 100 различных ферментов, восстанавливающих структуру ДНК. У мышей с выключенной экспрессией определенного гена репарации ДНК наблюдались сильно ускоренные процессы старения. Определенную роль в процессах старения играет гетерогенность повреждений и репарации ДНК.
ДНК митохондрий (мт-ДНК) служит специфичной мишенью окислительных повреждений, поскольку из-за пространственной близости к компонентам дыхательной цепи она повреждается радикалами кислорода, располагая в то же время ограниченным набором эффективных механизмов репарации. Поэтому с возрастом происходит накопление мутаций в мт-ДНК, сопровождающееся крайне тяжелыми последствиями для энергетического обмена и продукции свободных радикалов. Накопление поврежденных митохондрий может, например, привести к полной потере сократительной способности мышечных волокон. Эффективность репарации окислительных повреждений ДНК в области теломер также ограниченна. Окислительный стресс, таким образом, определяет скорость укорочения теломер и тем самым регулирует вступление клеток в процесс старения.
в) Клеточные стрессовые реакции. Старение и апоптоз являются важнейшими клеточными реакциями адаптации организма к потенциально генотоксичному стрессу.
1. Контроль роста клеток. Накопление молекулярных повреждений в клетке может привести к ухудшению или выпадению клеточных функций (например, в мышечных волокнах). В то же время мутации могут приводить к появлению аберрантных функций, например неограниченному росту или способности к метастазированию и инвазии. Способность исключать потенциально опасные клетки из пролиферации необходима для многоклеточных организмов, обладающих большой продолжительностью жизни.
2. Апоптоз. Если количество повреждений ДНК значительно превышает способность клетки к их репарации, запускается программированная смерть клетки (апоптоз). Онкосупрессорный ген р53, подавляющий развитие опухоли, принимает участие в распознавании повреждений ДНК. Ферменты семейства bcl2 определяют, выделяется ли из митохондрий комплекс цитохрома С, который впоследствии активирует каскад специфических протеаз (каспаз), что в итоге приводит к разрушению клетки. В отличие от некротической смерти клетки апоптоз происходит за счет эндогенных, «собственных» механизмов, не вызывая в ткани воспалительную реакцию.
Апоптоз также играет важную роль в процессах созревания и развития, например лимфоцитов, если они обусловлены внешними сигналами (цитокинами).
Апоптоз, вызванный повреждениями ДНК, с одной стороны, является защитным механизмом, препятствующим развитию опухолей, с другой стороны, эксперименты на трансгенных животных показали, что потеря клеток вследствие интенсивного апоптоза ускоряет старение.
3. Старение. По сравнению с апоптозом старение является умеренной формой ответа клеток на различные формы стресса. Стареющие клетки по-прежнему жизнеспособны, но теряют способность к делению. Блокада пролиферации сопровождается специфичными для типа клетки изменениями паттерна экспрессии генов. Л. Хайфлик еще в 1963 г. отметил, что в стандартных условиях соматические клетки прекращают свой рост после определенного числа делений. Позже механизм ограничения числа делений клетки связали с теломерами. Теперь стало ясно, что старение, связанное с теломерами, тоже оказывается реакцией на кумулятивный стресс во время роста.
Как и апоптоз, старение является фактором, подавляющим развитие опухолей. И в то же время прекращение способности клетки к делению способствует старению клеток и тканей. Например, репликативное старение может ослабить пролиферацию лимфоцитов, и служит возможной причиной старения иммунной системы. Паттерн экспрессии генов стареющих клеток очень сильно отличается от такового для клеток, способных к пролиферации. Возрастающая доля стареющих клеток в ткани изменяет свойства органа.
4. Теломеры — биологические часы? Теломеры представляют собой ДНК-белковые комплексы, находящиеся на концах всех хромосом. С каждым делением клетки они уменьшаются в размерах, поскольку дистальные концы линейных молекул ДНК не могут полностью реплицироваться «нормальными» полимеразами ДНК. Укороченные теломеры индуцируют старение путем активации экспрессии онкосупрессорных генов, таких как р53. Бессмертные клетки, например клетки микроорганизмов или многие опухоли, располагают ферментом теломеразой, который может наращивать новые теломерные последовательности на концах хромосом и тем самым препятствовать их укорочению.
Если в соматических клетках происходит индукция экспрессии теломеразы, то длина теломер стабилизируется, а клетки становятся бессмертными в отсутствие нарушения функции генов-онкосупрессоров. Таким образом, теломеры работают как «биологические часы» клеток. Тем не менее эти «часы» не являются автономными, а зависят от стресса. Клетки, способные образовывать радикалы в больших количествах или обладающие плохой антиоксидантной защитой (например, сниженная активность СОД), быстрее теряют свои теломеры и начинают стареть. Старение, индуцированное теломерами, также является клеточной реакцией на стресс.
г) Системная регуляция старения. Системная регуляция метаболической активности и эффективности, в частности через ось инсу-лин/ИФР, является центральным процессом адаптации, который может активировать молекулярные и клеточные защитные механизмы и определяет скорость старения.
1. Инсулин и ИФР-1. Исследования, проведенные на нематоде C. elegans, в первую очередь выявили роль оси инсулин/ ИФР для старения. Внутриклеточный путь передачи сигнала высококонсервативен: связывание лиганда с отдельным рецептором Daf-2 (нематода) или с гомо- или гетеродимерным рецептором из IRa, IRb и/или IGF1R (человек) активирует фосфатидилинозитол-3-киназу АGЕ-1/Рi3K и Akt-киназу. Фактор транскрипции Daf-16/FOXO дезактивируется. Ослабление сигнала инсулина/ ИФР1 приводит к транскрипции генов-мишеней FOXO, включая антиоксиданты, например, супероксиддисмутазу и каталазу. Инсулин также может участвовать в образовании АФК путем активации связанной с мембраной НАДФН-оксидазы, а АФК в зависимости от концентрации могут ингибировать или стимулировать передачу сигнала инсулина.
У млекопитающих полное ингибирование сигнального пути инсулин/ИФР может привести к серьезным дефектам развития, резистентности к инсулину и диабету. Однако частичное ингибирование (например, в результате гетерозиготного нокаута или только в определенных тканях, например в жировой) увеличивает продолжительность жизни трансгенных мышей. «Успешно» состарившиеся люди-долгожители характеризуются низким уровнем инсулина и высокой чувствительностью к нему.
2. Сиртуины. Важнейший для процессов старения представитель сиртуинов Sirtl (у дрожжей sir2) является NAD-зависимой гистондеацетилазой, удаляющей ацетильную группу в многочисленных белках, в том числе р53, FOXO, PPAR-γ, PGC-1α или NF-кВ. В зависимости от питания и метаболизма, Sirtl способен контролировать многочисленные процессы, такие как пролиферация клетки и ее рост, биогенез митохондрий или воспаление. Активация Sirt1 улучшает гомеостаз глюкозы и повышает чувствительность к инсулину. Активация sir2 замедляет старение в дрожжах. Предполагают, что Sirt1 снижает продукцию АФК путем активации биогенеза митохондрий, замедляя таким образом старение и у млекопитающих. Ресвератрол, растительный полифенол, считается активатором Sirtl, возможно обладающим свойствами замедления старения.
3. Мишень рапамицина. Мишень рапамицина (target of rapamigcin, TOR) является высококонсервированной серин/треонин-киназой, которая активирует клеточный рост, метаболизм и реакцию на стресс в зависимости от наличия питательных веществ (аминокислот) и факторов роста (в частности, инсулина). Снижение активности TOR в эксперименте продлевает жизнь у самых разных организмов, таких как дрожжи, нематоды и мухи. Эту функцию нельзя объяснить результатом действия одного гена-мишени TOR, она включает по меньшей мере четыре процесса, которые координированно регулируются TOR: трансляцию мРНК, аутофагию, реакцию на стресс и метаболизм в митохондриях. Некоторые данные указывают на роль TOR-зависимых сигналов в продолжительности жизни млекопитающих.
Недавно было продемонстрировано, что рапамицин подавляет клеточное старение, и его пероральный прием продлевает жизнь старых мышей.
4. Клото. Клото — экспрессируемый в почечных канальцах корецептор фактора роста FGF-23, который стимулирует экскрецию фосфата с мочой. У мышей с угнетенной функцией клото или FGF-23 помимо нарушения фосфатного обмена наблюдалось ускоренное старение, в то время как повышенная экспрессия клото увеличивает продолжительность жизни мыши. Внеклеточный домен клото может секретироваться и, действуя как гуморальный фактор, регулировать активность многочисленных гликопротеинов на поверхности клетки. К ним относятся различные ионные каналы и рецепторы факторов роста, включая рецепторы инсулина и ИФР1. Предполагается, что это определяет функцию «антистарения» клото.
5. Р66shc. P66shc, один из трех белков, кодируемых Shc-локусом, имеет несколько функций: он активируется окислительным стрессом, транслоцируется в митохондрии и там катализирует продукцию пероксида водорода (Н2О2), который увеличивает проницаемость митохондриальной мембраны, стимулирует выделение цитохрома С митохондриями и инициирует апоптоз. Хотя это защищает организм от неконтролируемой пролиферации клеток с потенциально мутантной ДНК, данный механизм одновременно усугубляет окислительный стресс. P66shc является также ингибитором FOXO и стимулируется инсулином, по крайней мере в адипоцитах. Мыши с нокаутным геном p66shc не только живут дольше, но и более устойчивы к стрессу и защищены от ожирения, вызванного питанием.
д) Гены и продолжительность жизни. Продолжительность человеческой жизни на 20-33% определяется наследственностью; популяционно- и молекулярно-генетические исследования выявили целый ряд генов, претендующих на определяющую роль в обеспечении высокой продолжительности жизни.
1. Наследование продолжительности жизни. Давно известно, что высокая продолжительность жизни часто является наследственным признаком. От одной пятой до трети вероятность высокой продолжительности жизни обусловлена генетически. Однако большая часть вариабельности опосредована двумя факторами: окружающей средой и случайностью. Поскольку старение в отличие от процессов развития не регулируется генетической программой, следует полагать, что случай играет важную роль: нельзя предсказать, где и когда возникает какое повреждение, но это может иметь значительные последствия для дальнейшего процесса старения. Относительный вклад условий окружающей среды и фактора случайности неизвестен.
2. Гены, определяющие высокую продолжительность жизни. Поиск полиморфизмов, связанных с долгожительством человека, долгое время был возможен только для отдельных генов-кандидатов. Аполипопротеин Е, например, имеет три распространенных аллеля. У столетних людей аллель е4 встречается реже, а аллель е2 чаще по сравнению с группой молодых испытуемых. Это связано с повышенным риском развития атеросклероза и болезни Альцгеймера у носителей аллеля е4. Однако подобный скрининг генов-кандидатов очень часто подвержен случайным ошибкам. Геномные исследования стали возможны технически и финансово только несколько лет назад.
В этих исследованиях фиксируют до миллиона одиночных нуклеотидных полиморфизмов (SNP) на геном у тысяч участников. Уже выявлено примерно 300 полиморфизмов, связанных с гериатрическими заболеваниями и с долгожительством. К ним относятся полиморфизм в сигнальном пути инсулин/ИФР, в локусе участвующего в регуляции клеточного цикла онкосупрессорного гена р16/ARF в локусе аполипопротеина В или в гене HLA. Во многих случаях были продемонстрированы связи с промоторными SNP или гаплотипами для про- или противовоспалительных цитокинов, например IL-6, IL10, ФНО-α, TGF-β1 и IFN-γ. Это согласуется с тем, что старость сопровождается хроническим воспалением в разных тканях.
Как и ожидалось, пенетрантность всех на сегодняшний день известных полиморфизмов очень слаба. Как правило, значимость связи между частотой аллелей и продолжительностью жизни зависит от исследуемой популяции и часто не воспроизводится при даже немного отличных генетических или экологических условиях. Это подтверждает идею, что старение определяется взаимодействием большого числа генов друг с другом и с воздействиями окружающей среды. Включает ли это десятки, сотни или тысячи генов, является до сих пор спорным вопросом.
е) Прогерия. Целый ряд редких наследственных заболеваний выражается в ускоренном старении, или прогерии:
• Они могут протекать чрезвычайно быстро, как в случае синдрома Видемана-Раутенштрауха (неонатальная прогерия), при котором еще в матке у плода возникают торможение роста, дефицит подкожной жировой ткани, потеря волос и остеопороз, а средняя продолжительность жизни достигает всего 7 месяцев.
• Прогерия Хатчинсона-Гилфорда характеризуется замедлением роста с 1 года жизни, и у пациентов развиваются остеопороз, артрит, атеросклероз и инфаркт миокарда еще в подростковом возрасте.
• Синдром Вернера является наиболее распространенной прогерией (примерно 10 случаев на 1 млн рожденных). Первые заметные симптомы возникают в пубертатном периоде, в дополнение к упомянутым симптомам часто возникает билатеральная катаракта, диабет II типа и опухоли, особенно саркома; и пациенты обычно умирают, не достигая возраста 50 лет.
• При других синдромах (Ротмунда-Томпсона, Кокейна, пигментная ксеродерма) на первый план выходят риски развития опухолей до достижения зрелого возраста или ускоренное старение кожи.
Все виды прогерии являются сегментными, т. е. одновременно ускоряются не все аспекты нормального старения. Лежащие в их основе генетические дефекты известны за несколькими исключениями (синдром Видемана-Раутенштрауха). Интересно, что не все виды прогерии обусловлены действием одного гена, во многих случаях идет речь о генах, связанных с репарацией или репликацией ДНК, а также поддержанием структуры хроматина.
ж) Резюме. Клеточные и молекулярные причины старения. К клеточным и молекулярным механизмам, которые определяют скорость старения, относятся:
• антиоксидантные защитные механизмы;
• клеточное старение, индуцированное теломерами;
• накопление неправильно свернутых или поврежденных белков;
• накопление мутаций, особенно в мтДНК;
• изменение гормональной регуляции метаболизма, особенно в оси инсулин/ИФР и связанных с ней сигнальных путях.
Комплексность старения в основном определяется многочисленными взаимодействиями между этими механизмами.
- Рекомендуем ознакомиться далее "Изменения органов в старости - с точки зрения физиологии человека"
Редактор: Искандер Милевски. Дата публикации: 21.7.2026